Кембрийский период продолжался от 538,8 до 486,85 миллиона лет назад. Он открыл палеозойскую эру и весь фанерозойский эон, то есть ту часть истории Земли, в породах которой особенно обильно представлены заметные следы сложной жизни. Именно в раннем кембрии резко увеличилось разнообразие животных, способов движения, питания и защиты, появились многочисленные минерализованные скелеты и сложные пищевые сети.
Жизнь не возникла в кембрии из ничего. Микроорганизмы существовали миллиарды лет, а крупные многоклеточные организмы известны из эдиакарских отложений. «Кембрийский взрыв» обозначает геологически быстрое, но растянутое на миллионы лет увеличение разнообразия и экологической сложности. Его нельзя понимать как одновременное появление всех современных типов животных в одном слое.
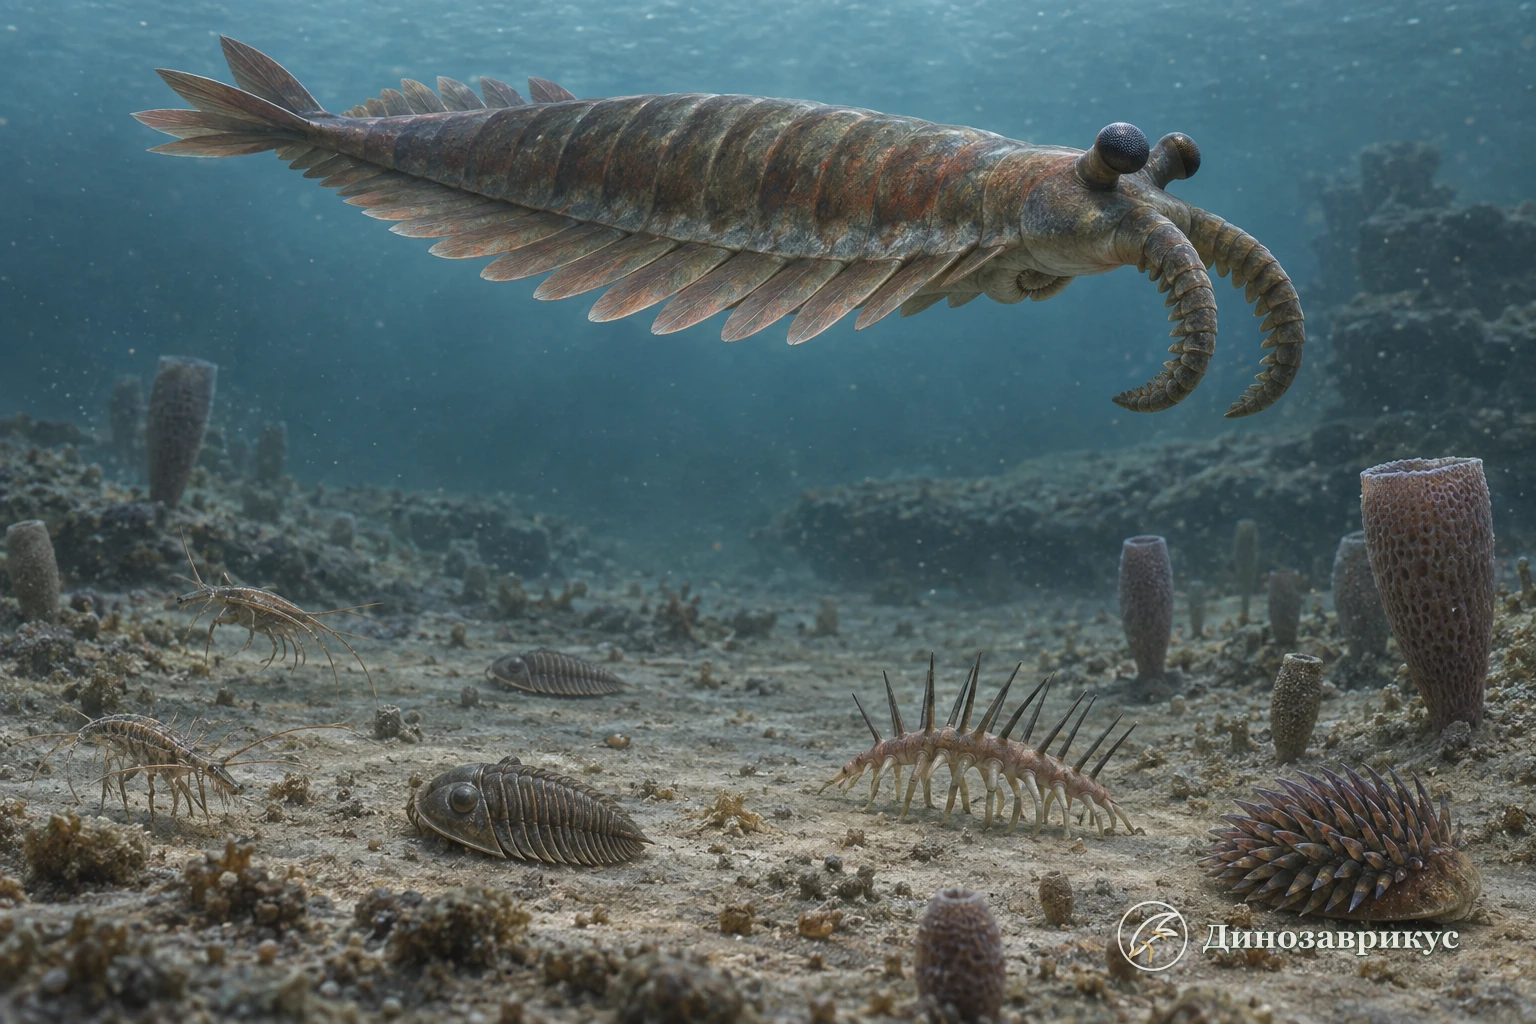
Главная особенность кембрия не список причудливых существ, а перестройка всей экосистемы. Животные начали глубоко рыть грунт, активно преследовать добычу, строить скелеты, видеть сложными глазами и занимать пространство от осадка до толщи воды.
Кембрийский период в цифрах
| Параметр | Сведения |
|---|---|
| Положение в шкале | первый период палеозойской эры и фанерозойского эона |
| Начало | 538,8 ± 0,6 миллиона лет назад |
| Конец | 486,85 ± 1,5 миллиона лет назад |
| Продолжительность | около 51,95 миллиона лет |
| Предыдущий период | эдиакарский, последний период неопротерозоя |
| Следующий период | ордовикский |
| Официальные эпохи | терренувская, пока не названная вторая серия, мяолинская и фуронгская |
| Международные ярусы | десять, из которых четыре пока имеют только номера |
| Крупные изменения | радиация животных, распространение скелетов и глаз, хищничество, биотурбация, первые животные рифы и сложные морские сообщества |
Даты и деление приведены по Международной хроностратиграфической шкале версии 2026/06. Числа могут уточняться после новых датировок, тогда как формальные границы закреплены в эталонных разрезах. Разобраться в соотношении эона, эры, периода и века помогает обзор геологических эр, а все периоды этой части истории собраны в каталоге палеозойской эры.
Откуда взялось название кембрия
Английский геолог Адам Седжвик ввёл кембрийскую систему в 1835 году после изучения древних пород Уэльса. Название происходит от Cambria, латинизированной формы валлийского Cymru. Первоначальные границы системы сильно отличались от современных и пересекались с силуром Родерика Мурчисона.
Спор о последовательности пород продолжался десятилетиями. Позднее Чарльз Лапворт выделил ордовик между кембрием и силуром, а международная стратиграфия закрепила границы через глобальные эталонные разрезы. Современный кембрий поэтому не равен всему объёму пород, который Седжвик называл кембрийским в XIX веке.
Где начинается кембрийский период
Начало кембрия одновременно является началом фанерозоя, палеозоя, терренувской эпохи и фортунского века. Глобальный эталон находится у Форчун-Хед на полуострове Бьюрин в Ньюфаундленде, Канада. Граница проходит в 2,4 метра выше основания второго члена формации Чапел-Айленд.
Основной маркер – первое появление сложной следовой системы Trichophycus pedum, традиционно известной также под названием Treptichnus pedum. Это не кость и не раковина, а повторяющийся ход в осадке. Его создатель неизвестен, однако след показывает управляемое движение двусторонне-симметричного животного в грунте.
Маркер не означает, что первое животное родилось именно в этой точке. Следы зависят от поведения, типа осадка, насыщения кислородом и сохранности. Граница выбрана потому, что событие можно сопоставлять в разрезах, а не потому, что ниже неё жизнь отсутствовала.
Четыре эпохи и десять ярусов
Кембрий остаётся менее полно именованным, чем более молодые периоды. Международная комиссия признаёт четыре серии, соответствующие эпохам, и десять ярусов. Вторая серия и четыре яруса пока обозначены номерами.
| Эпоха | Ярусы и возраст их начала, млн лет назад | Что особенно заметно |
|---|---|---|
| Терренувская | фортунский 538,8; ярус 2 около 529 | сложные следы, малая раковинная фауна, ранняя биоминерализация |
| Серия 2 | ярус 3 около 521; ярус 4 около 514,5 | Чэнцзян и Цинцзян, первые трилобиты, археоциатовые рифы, разнообразие членистоногих и хордовых |
| Мяолинская | вулиунский около 506,5; друмский около 504,5; гужангский около 500,5 | сланцы Бёрджесс, развитые донные и пелагические сообщества, крупные радиодонты |
| Фуронгская | пайбийский около 497; цзяншаньский около 494,2; ярус 10 около 491 | кризис SPICE, чередование трилобитовых фаун, переход к ордовикским сообществам |
Верхняя граница проходит на отметке 486,85 ± 1,5 миллиона лет назад и совпадает с началом ордовикского периода. Региональные названия вроде томмотского, атдабанского или ботомского полезны в конкретных разрезах, но не заменяют действующее международное деление.
Что на самом деле «взорвалось»
Наиболее резкая часть кембрийской радиации заметна примерно между 540 и 520 миллионами лет назад. В летописи быстро увеличивается число форм животных, их следов и минерализованных частей. Появляются узнаваемые представители стволовых и кроновых групп членистоногих, моллюсков, иглокожих, кольчатых червей, хордовых и других крупных линий.
Однако слова «тип животных появился» требуют осторожности. Ранний ископаемый представитель может находиться на стволе эволюционного дерева, сочетая признаки будущей группы с более древними особенностями. Он не обязательно похож на общего предка и тем более не обязан быть прямым предком современных видов.
Подробный разбор длительности и причин даёт статья о кембрийском взрыве, а галерея организмов кембрийской радиации показывает, почему многие ранние ветви не помещаются в привычные современные категории.
Почему ископаемых стало больше
Биологические изменения совпали с изменением условий сохранения. Животные начали чаще строить раковины, трубки, шипы и панцирные элементы из карбоната кальция, фосфата и кремнезёма. Минерализованная часть переживает разложение лучше мягкого тела, поэтому возникновение скелетов резко повысило видимость организмов в породах.
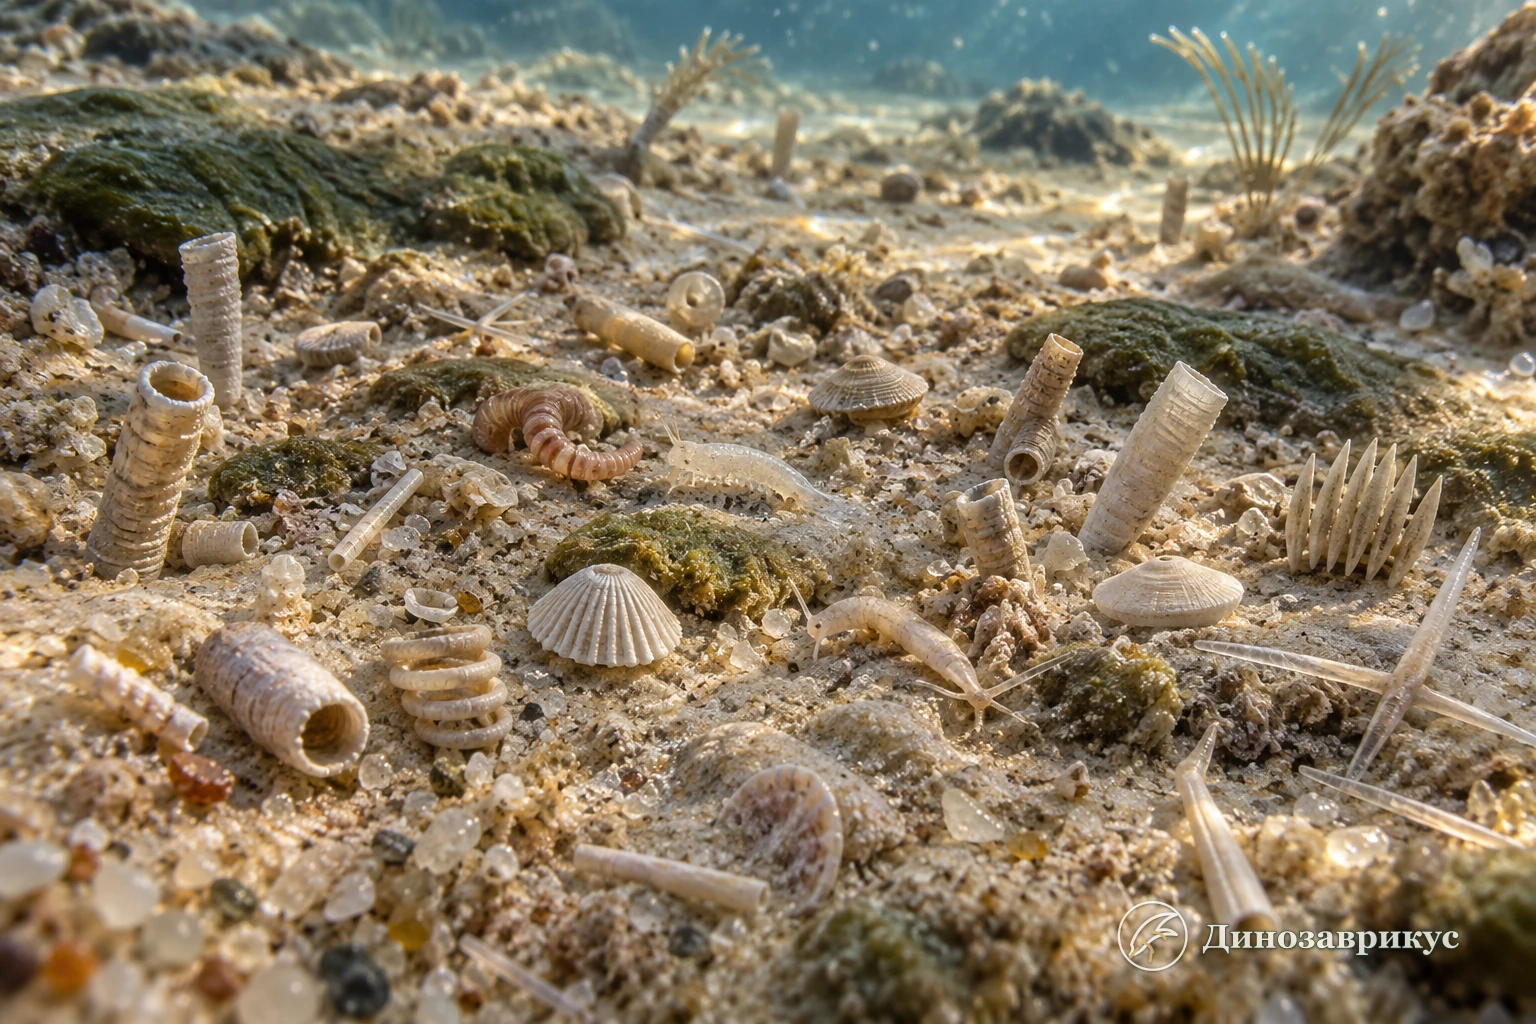
Малая раковинная фауна представляет не одну группу, а набор крошечных изолированных элементов. Часть принадлежала небольшим животным, часть была деталями составного покрова более крупных тел. Ранние находки включают трубки, колпачки, спикулы и склериты. Их массовое появление отражает и биоминерализацию, и особенности фосфатного сохранения.
Минерализация могла давать опору, защищать от хищников, укреплять пищедобывающие структуры и служить запасом веществ. Разные материалы и конструкции возникали независимо, поэтому одну универсальную причину назначить нельзя.
Не одна причина, а система обратных связей
Кембрийскую радиацию связывают с кислородом, питательными веществами, генами развития, хищничеством, скелетами, изменением грунта и расширением пригодных местообитаний. Ни один фактор не объясняет все этапы и все группы.
Кислород был необходим крупным активным животным, но кембрийский океан не стал сразу полностью насыщенным. Геохимические данные показывают пространственно и временно переменные кислородные условия. Пульсации могли открывать новые местообитания, а последующая деоксигенация – вызывать кризисы.
Генетические системы построения тела появились не в одно мгновение на границе кембрия. Многие регуляторные механизмы должны были существовать раньше. Экологические взаимодействия превратили наследуемые различия в новый отбор: лучшее зрение помогало обнаруживать добычу, защита повышала выживаемость, а рытьё открывало пищу и укрытия.
Революция морского грунта
В позднем эдиакарии значительная часть мелководного дна была покрыта устойчивыми микробными матами. Раннекембрийские животные начали активнее ползать по поверхности, проникать внутрь осадка, строить норы и перерабатывать органическое вещество. Так называемая кембрийская субстратная революция превратила многие матовые поверхности в перемешанный грунт.
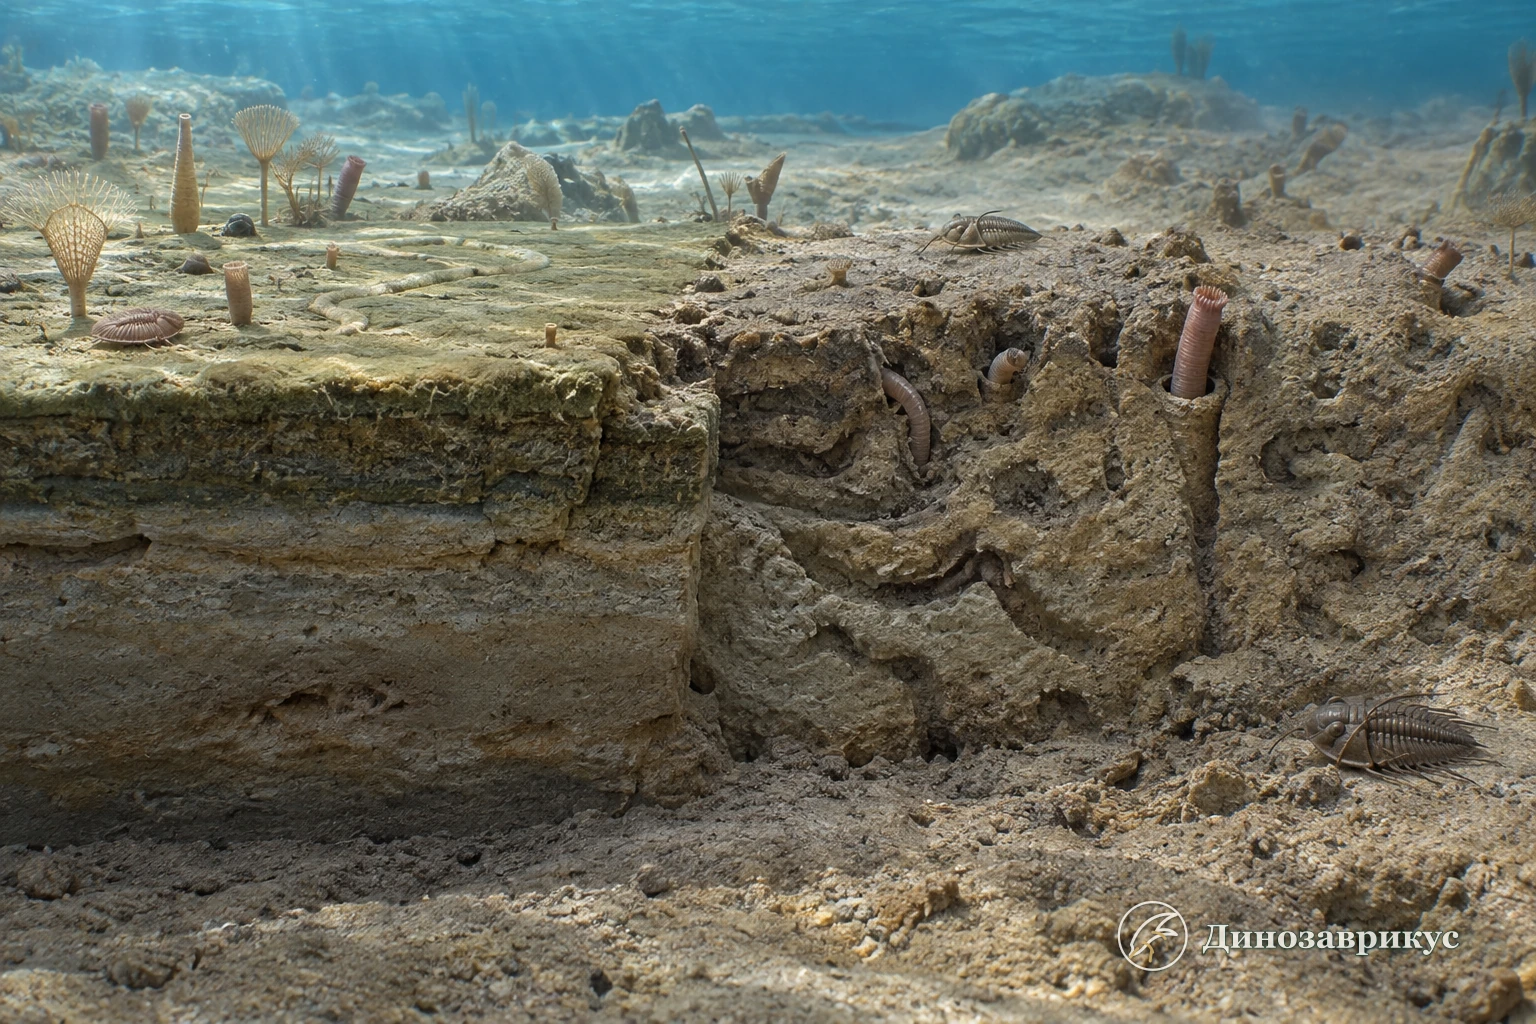
Изменение шло постепенно и неодинаково в разных средах. Глубина отдельных ходов не равна общей интенсивности перемешивания, поэтому по одной норе нельзя оценить весь морской бассейн. Но глобальная смена следовых комплексов показывает появление новых способов движения и питания.
Рытьё снабжало осадок кислородом, меняло микробные процессы и разрушало сплошные маты. Одни эдиакарские стратегии теряли пространство, другие животные получали укрытие. Организм становился инженером экосистемы, изменявшим среду для соседей и потомков.
Материки и климат
Суперконтинент Паннотия распался ещё до или в начале кембрия. Крупная Гондвана занимала главным образом южные широты. Лаврентия, Балтика и Сибирь были отдельными блоками, значительная часть их окраин находилась в тёплых широтах. Высокий уровень моря заливал широкие шельфы.
Климат в целом был тепличным, без подтверждённых устойчивых полярных ледников масштаба позднего ордовика. Однако температура, уровень моря и химия воды менялись. Карбонатные платформы соседствовали с глубокими бассейнами, где придонная вода могла быть бедна кислородом.
Суша выглядела почти голой. На влажных поверхностях жили микробы, образовывались биологические плёнки и корки, но лесов, травы и сосудистых растений не существовало. Надёжная разнообразная наземная фауна также неизвестна.
Первые животные рифы
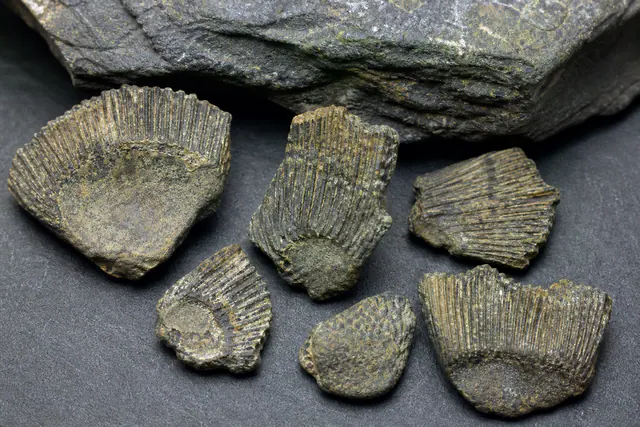
Раннекембрийские рифы строились совместно кальцифицированными микробами и археоциатами. Археоциаты обычно имели пористую чашу из внешней и внутренней стенок с промежутком между ними. Их часто сближают с губками, хотя детали положения внутри группы обсуждаются.
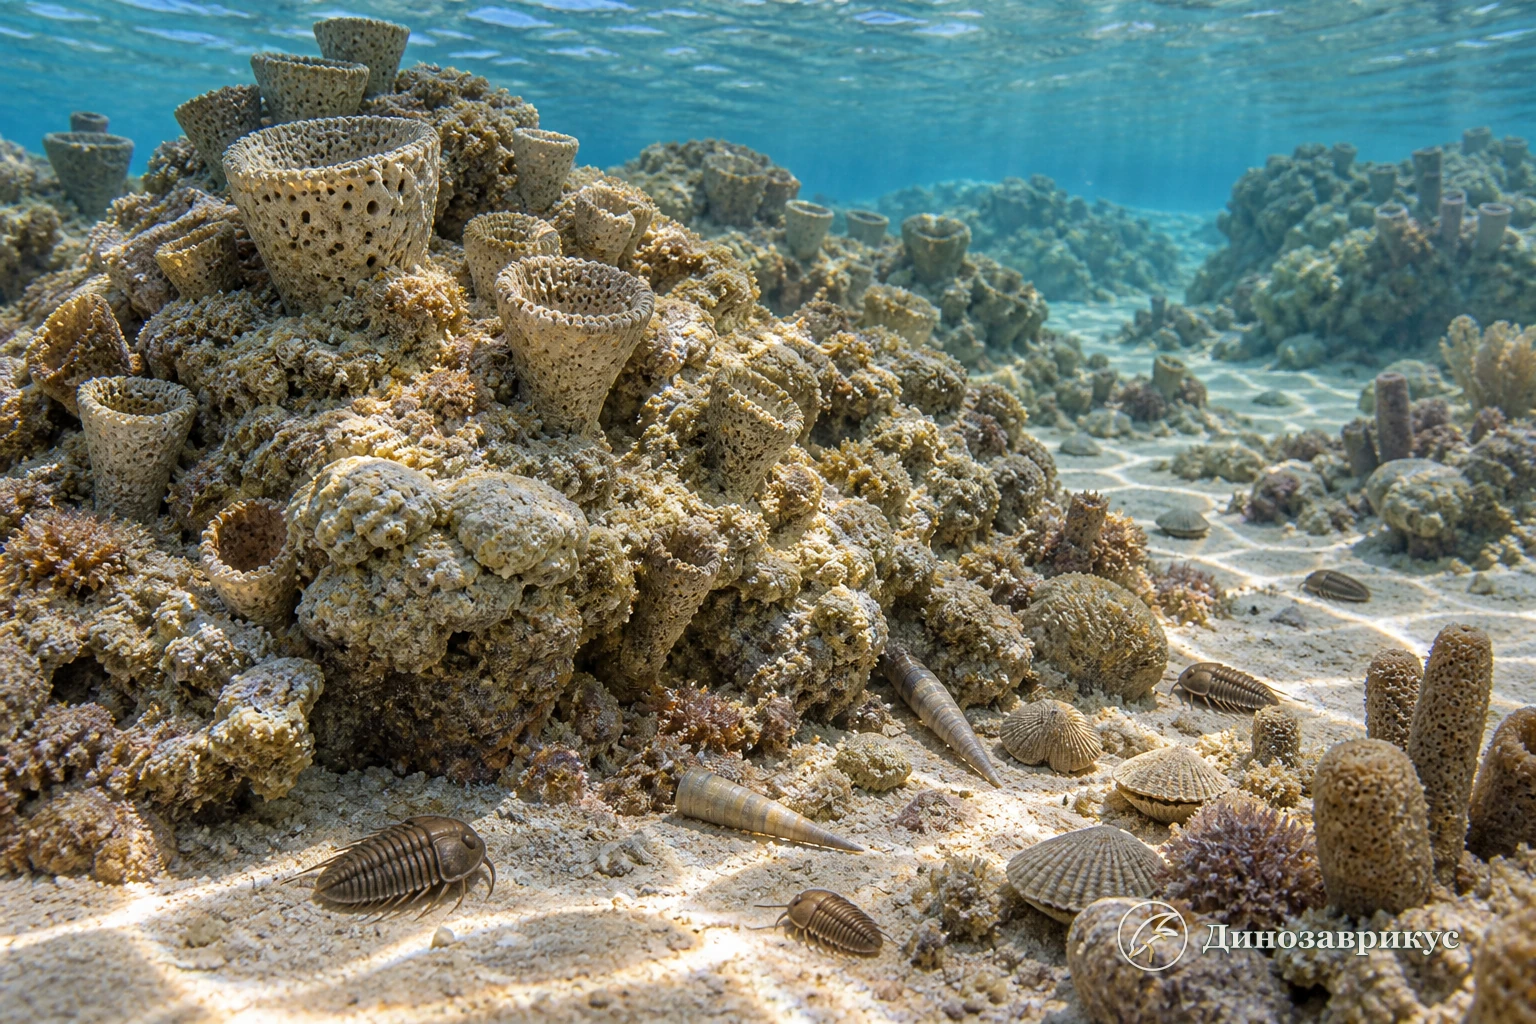
Археоциаты не были кораллами и не создавали точную копию современного тропического рифа. Многие жили поодиночке среди микробных построек, другие укрепляли или связывали каркас. Риф добавлял твёрдые поверхности, щели и различия течения, повышая локальное разнообразие.
К середине яруса 4 археоциатовые рифы резко сократились. В более позднем кембрии снова преобладали микробные постройки и некоторые губки. Строение отдельной чаши подробнее разобрано в обзоре археоциатуса.
Чэнцзян и Цинцзян: мягкие тела раннего кембрия
Чэнцзянская биота Южного Китая относится к ярусу 3 и имеет возраст около 518 миллионов лет. Тонкозернистые отложения сохраняют глаза, кишечники, конечности и иногда внутренние структуры, которые почти всегда исчезают после смерти. Новое исследование осадков показывает связь сообщества с дельтой, испытывавшей штормовые паводки, колебания солёности и быстрое поступление осадка.
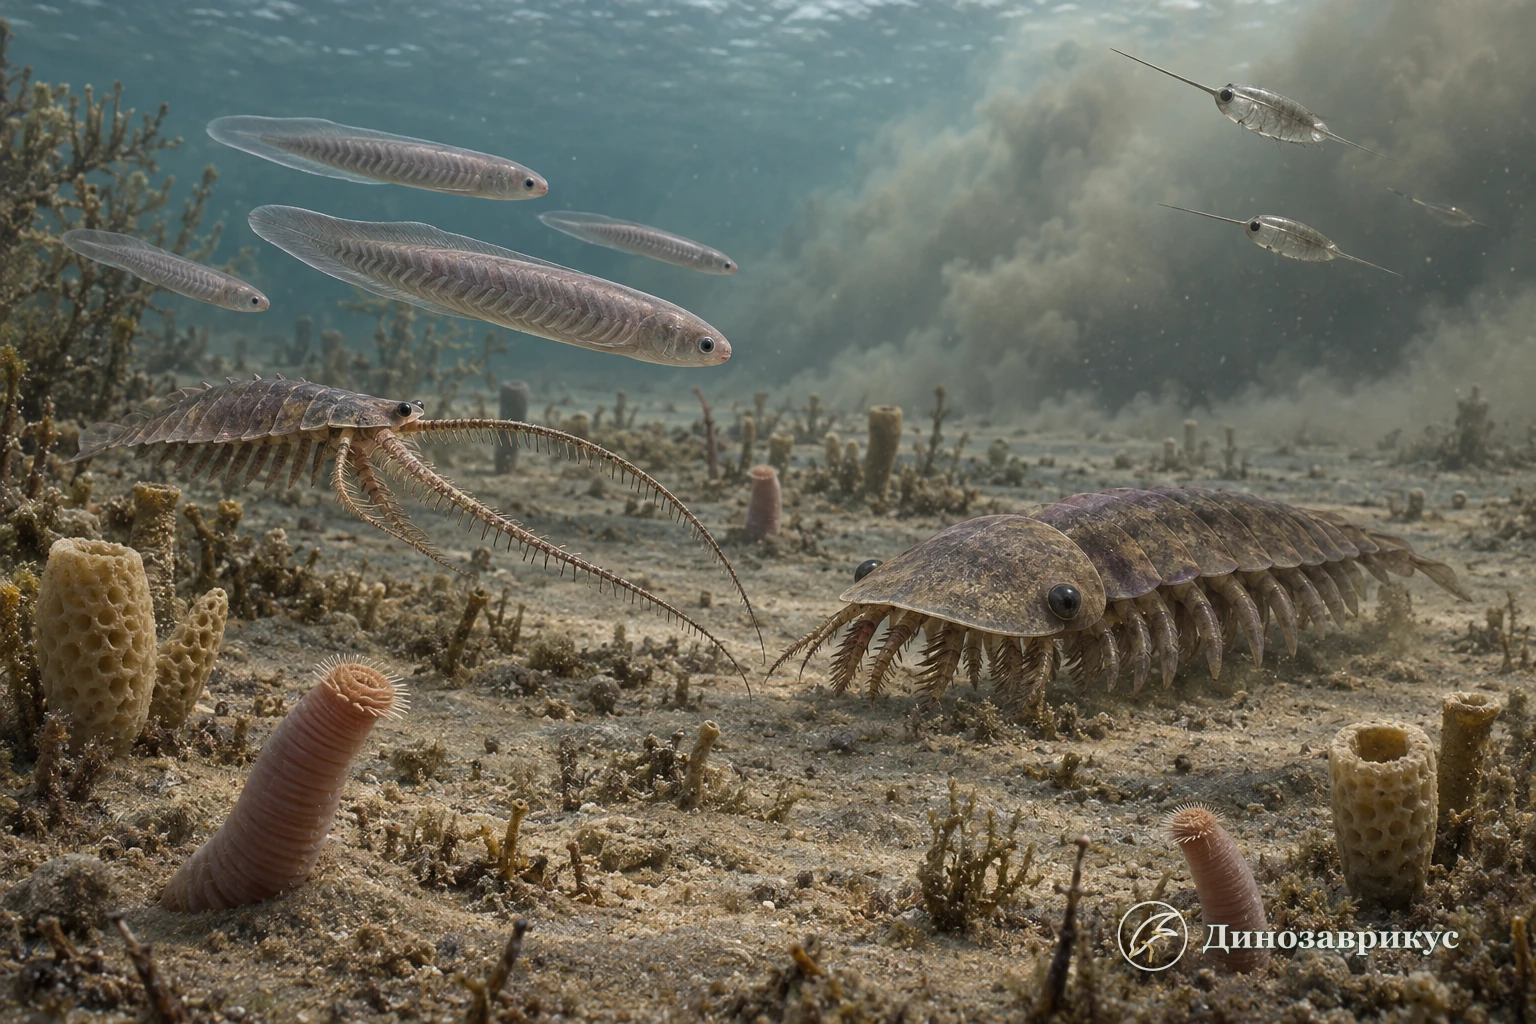
Здесь найдены разнообразные членистоногие, приапулиды, губки, гребневики, ранние хордовые и проблематичные формы. Haikouichthys и Myllokunmingia показывают ранний этап истории позвоночных, но их мягкие тела трудно интерпретировать: при разложении признаки исчезают неслучайно и могут делать организм внешне более примитивным.
Отдельная статья о хайкоуэлле показывает, почему принадлежность некоторых чэнцзянских животных к хордовым обсуждается. Сравнение с пикайей из более молодых сланцев Бёрджесс позволяет увидеть не прямую лестницу к позвоночным, а несколько сочетаний хордовых признаков.
Цинцзянская биота примерно того же возраста сохранилась в более удалённой от берега среде. В ней особенно много мягкотелых форм и книдарий, а значительная доля найденных таксонов при первом описании оказалась новой. Разница между Цинцзяном и Чэнцзяном показывает, что один лагерштетт не представляет весь раннекембрийский океан.
Сириус-Пассет и северные моря
Сириус-Пассет в Северной Гренландии относится к раннему кембрию и сформировался у края Лаврентии. Здесь сохранились крупные лопоподии, членистоногие, черви и другие мягкотелые животные. Сообщество отличалось от китайских местонахождений и существовало в ином бассейне.
Pambdelurion был крупным лопоподиеподобным животным с боковыми лопастями и передними придатками. Его нельзя изображать как современного бархатного червя увеличенного размера: он сочетал признаки лопоподий и линии, ведущей к радиодонтам и членистоногим. Подробная реконструкция памбделуриона отделяет найденные структуры от спорной внешности.
У Kerygmachela сохранились элементы нервной системы, помогающие обсуждать раннюю эволюцию мозга панартропод. Однако отпечаток не показывает цвет или поведение. Обзор керигмачелы объясняет, какие признаки действительно читаются в ископаемом материале.
Сланцы Бёрджесс
Самое известное кембрийское местонахождение находится в Канадских Скалистых горах и относится к вулиунскому веку, примерно 508 миллионов лет назад. Животные жили у подножия подводного карбонатного уступа. Быстрое погребение тонким осадком и особая химия раннего разложения помогли сохранить углеродистые плёнки мягких тканей.
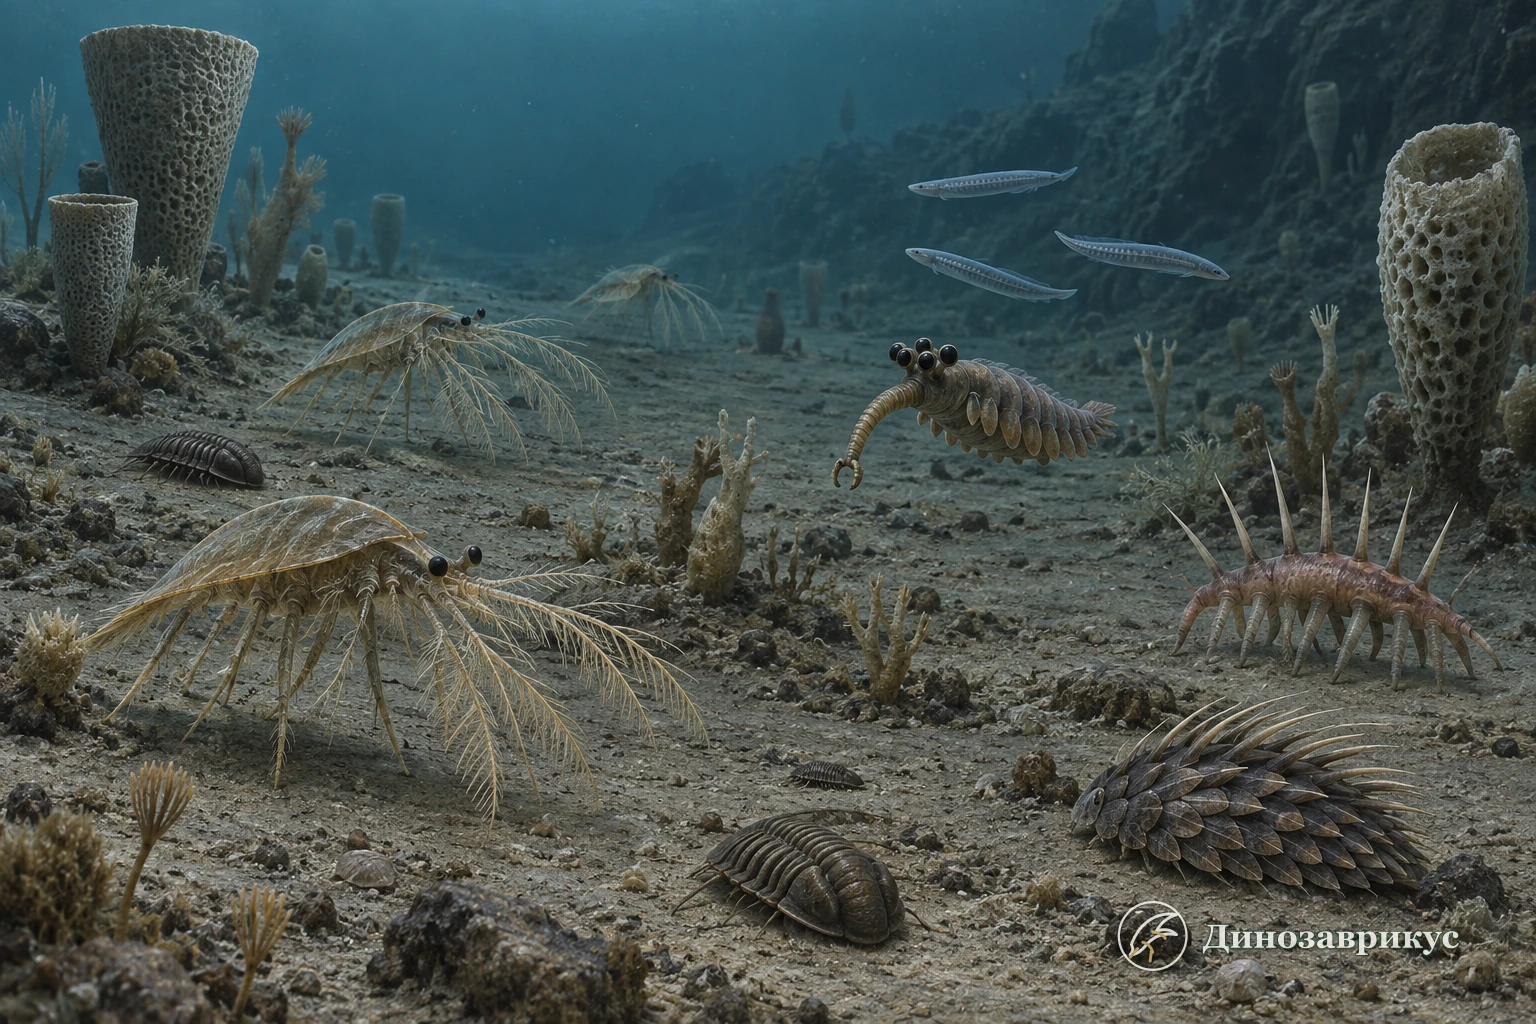
Здесь найдены Marrella, Opabinia, Hallucigenia, Wiwaxia, Pikaia, радиодонты, губки и многие другие организмы. Страница сланцев Бёрджесс посвящена истории открытия и механизму сохранения. Этот комплекс моложе Чэнцзяна примерно на десять миллионов лет, поэтому смешивать их всех в одной сцене как современников нельзя.
История реконструкций особенно показательна. Галлюцигению сначала поставили на спинные шипы и приняли парные ноги за щупальца. Опабиния действительно имела пять глаз и длинный хоботок, но была маленьким животным, а не чудовищем. Сравнение опабинии и аномалокариса показывает огромную разницу размеров и способов питания.
Трилобиты были не единственными хозяевами моря
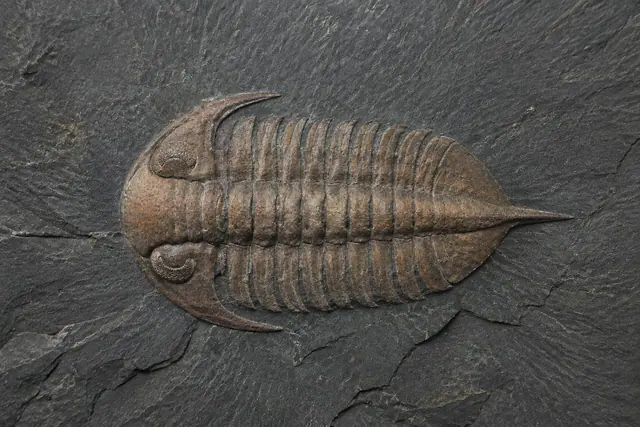
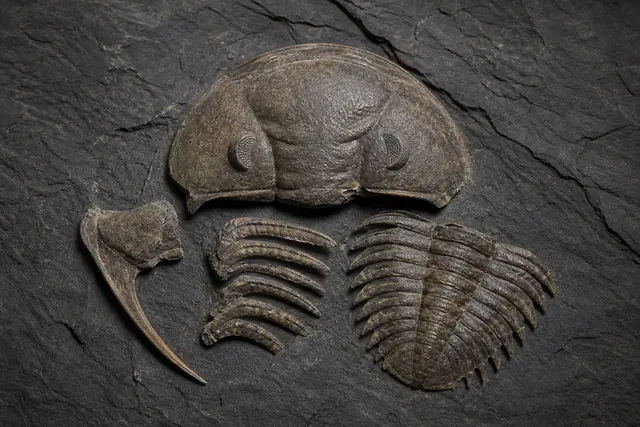
Трилобиты появились не у самого основания кембрия, а позже, примерно около 521 миллиона лет назад. Минерализованный спинной панцирь хорошо сохранялся, поэтому они кажутся повсеместными. Их глаза, конечности и развитие показывают уже сложную историю группы к моменту первого массового появления.
Разные трилобиты ползали по дну, зарывались, собирали органические частицы, могли хищничать или плавать. Общая схема тела разобрана в статье о трилобите. Обилие панцирей не означает, что мягкотелые животные были редкими: в обычной породе они просто исчезали без следа.
Каталог кембрийских животных показывает множество других линий, а отдельная подборка животных кембрийского периода помогает сравнивать известные группы без превращения всего периода в «эпоху трилобитов».
Радиодонты, хищничество и зрение
Радиодонты имели пару членистых передних придатков, крупные глаза, ротовой конус и ряд боковых плавательных лопастей. Они не были креветками и не имели зубастой пасти в передней части головы. Различия придатков показывают разные способы питания: захват крупной добычи, просеивание осадка или фильтрацию мелких частиц.
Аномалокарис был крупным зрячим пловцом, но старый образ универсального дробителя трилобитов слишком прост. Строение ротового конуса и придатков ограничивало тип доступной добычи. Обзор хищников древних морей показывает разнообразие радиодонтов и степень уверенности в их рационе.
Сложные фасеточные глаза существовали не только у трилобитов. Чэнцзянские членистоногие демонстрируют разные зрительные системы. Зрение усиливало взаимодействие хищника и добычи, но не было единственным «выключателем» радиации. Защита, скорость, маскировка, рытьё и органы чувств образовали сеть взаимного отбора.
Как возникли членистоногие и хордовые
Кембрийские местонахождения сохраняют стволовых представителей, которые помогают разобрать происхождение современных групп. Лопоподии имели мягкие нечленистые ноги. Радиодонты показывают ранние особенности головы и плавательных лопастей. Другие формы постепенно приближаются к членистоногим с жёстким экзоскелетом и членистыми конечностями.
Каталог древних членистоногих собирает эти ветви, но их нельзя выстроить в прямую линейку «червь – аномалокарис – трилобит». Это боковые ветви разветвлённого дерева. Та же осторожность нужна с хордовыми: Pikaia, Haikouichthys, Myllokunmingia и спорная Haikouella дают разные комбинации признаков, а не серию последовательных предков человека.
Кризисы внутри кембрия
Кембрий не был непрерывным ростом разнообразия. Сокращение археоциатовых рифов, синское событие раннего кембрия и более молодые перестройки сопровождались исчезновением отдельных сообществ. Причины включали деоксигенацию, изменения уровня моря, поступления питательных веществ и углеродного цикла, но последовательность различалась по бассейнам.
В начале фуронга произошёл крупный положительный сдвиг изотопного состава углерода, известный как SPICE. Он совпал с изменениями морской химии, распространением бедных кислородом вод и заметной сменой трилобитовых фаун.
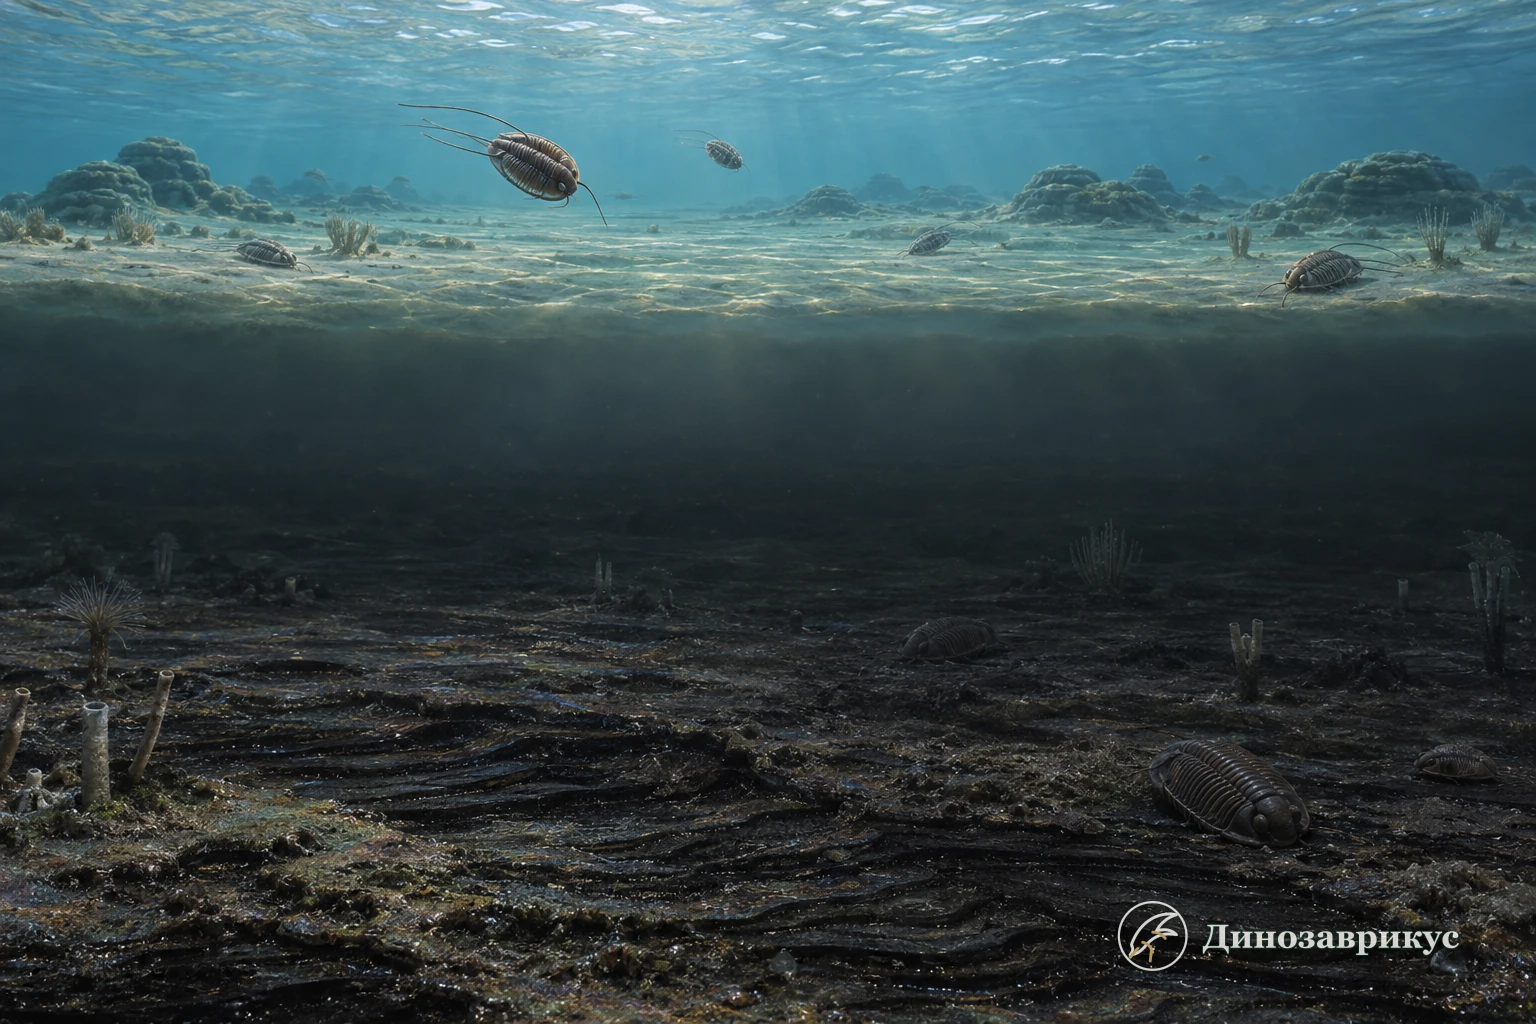
В Северной Америке выделяют «биомеры» – интервалы резкой смены доминирующих трилобитов. Их удобно отслеживать регионально, но нельзя автоматически считать каждую смену одновременным глобальным массовым вымиранием. Морские кризисы были реальны, а их масштаб и синхронность требуют проверки в разных разрезах.
Чем закончился кембрий
На границе кембрия и ордовика не зафиксирована единая катастрофа масштаба конца ордовика или перми. Формальная граница проводится по биостратиграфическому маркеру в Грин-Пойнте на Ньюфаундленде. Многие линии трилобитов, брахиопод, иглокожих, моллюсков, губок и членистоногих продолжили существование.
Ордовик унаследовал кембрийские способы движения, питания и построения сообществ. Затем разнообразие морских животных снова резко выросло во время великой ордовикской биодиверсификации. Поэтому кембрийский взрыв не создал завершённый современный океан, а заложил экологическую и анатомическую основу для последующих радиаций.
Что окаменелости доказывают, а что приходится восстанавливать
| Наблюдение | Насколько уверенно его можно трактовать |
|---|---|
| Панцири, раковины, спикулы и склериты | прямые находки, хотя изолированный элемент не всегда позволяет восстановить владельца целиком |
| Следовые ходы | прямое свидетельство поведения, но вид животного-следообразователя обычно неизвестен |
| Мягкие ткани лагерштеттов | редкие прямые отпечатки анатомии, изменённые разложением и сжатием осадка |
| Содержимое кишечника и повреждения панциря | локальные данные о питании или нападении, которые нельзя переносить на каждый вид |
| Окраска и рисунок покровов | обычно художественная гипотеза, если пигментные структуры не сохранились |
| Стая, погоня и точная скорость | поведенческая реконструкция на основе формы тела и сравнения, а не фотография события |
Даже исключительная сохранность остаётся выборочной. Труп мог быть перенесён, сжат, частично разложен и погребён вдали от места жизни. Поэтому научная реконструкция должна сообщать не только красивый результат, но и границы доказательств.
Чего в кембрии не было
В кембрии не существовало динозавров, птерозавров, морских рептилий, аммонитов, челюстных рыб, лесов и цветковых растений. Первые динозавры появились примерно через 250 миллионов лет после окончания периода. Ранние хордовые не были уменьшенными современными рыбами.
Не было и единого «кембрийского океана», одинакового повсюду. Чэнцзянская дельта, склон сланцев Бёрджесс, археоциатовый риф и глубокий бескислородный бассейн сохраняли разные сообщества. Реконструкция, собирающая животных разных веков и континентов в одном аквариуме, удобна как символ, но не является снимком реальной экосистемы.
Частые вопросы
Когда начался и закончился кембрийский период?
По Международной хроностратиграфической шкале версии 2026/06 кембрий начался 538,8 ± 0,6 миллиона лет назад и закончился 486,85 ± 1,5 миллиона лет назад. Его продолжительность составляла около 51,95 миллиона лет.
Что такое кембрийский взрыв?
Это геологически быстрое увеличение разнообразия животных, их строения и экологических ролей, особенно заметное примерно между 540 и 520 миллионами лет назад. Оно состояло из нескольких переходов и продолжало более древнюю эдиакарскую историю животных, а не означало мгновенное возникновение жизни.
Какие животные жили в кембрийском периоде?
В морях жили трилобиты, радиодонты, лопоподии, ранние моллюски, брахиоподы, губки, археоциаты, приапулиды, иглокожие и ранние хордовые. Известные роды включают аномалокариса, опабинию, галлюцигению, марреллу, виваксию, пикайю и хайкоуихтиса.
Была ли жизнь на суше в кембрии?
На влажных поверхностях существовали микробные плёнки и другие микроорганизмы, но развитых наземных экосистем с сосудистыми растениями и разнообразными животными не было. Почти все хорошо изученные кембрийские макроорганизмы происходят из морских отложений.
Комментарии 16