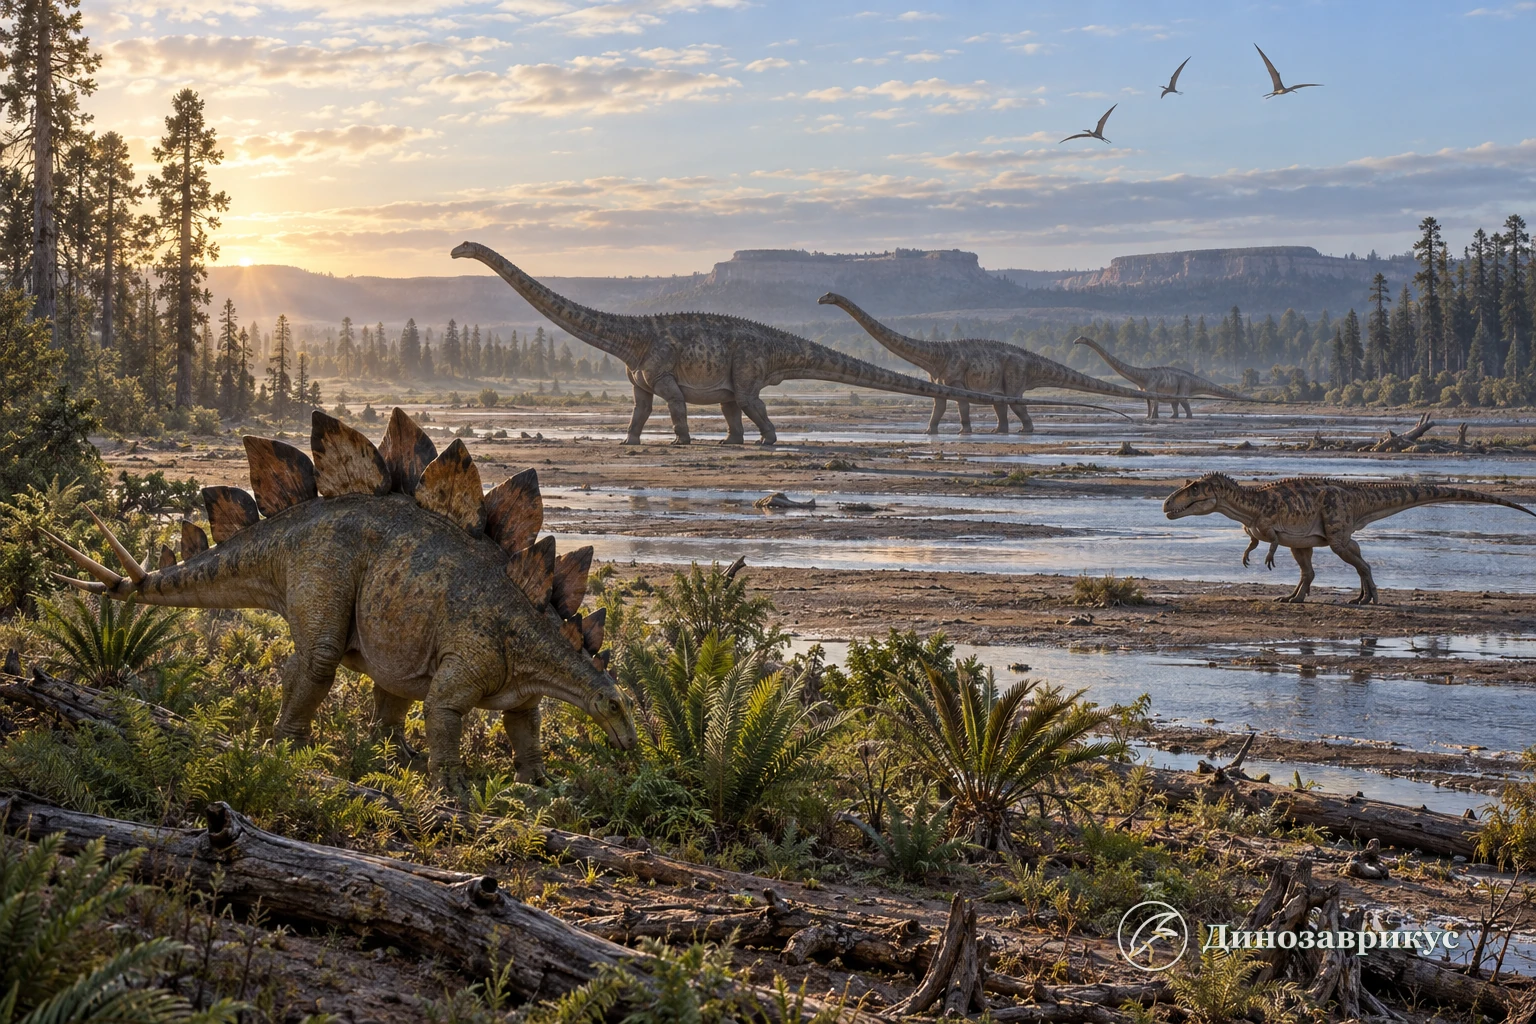
Юрский период был средней частью мезозойской эры и продолжался примерно от 201,4 до 143,1 миллиона лет назад. За почти 58 миллионов лет Земля сильно изменилась: единая Пангея начала распадаться, между расходившимися массивами суши раскрывались новые морские бассейны, климат переживал резкие потепления и более прохладные интервалы, а наземные экосистемы стали гораздо разнообразнее, чем в конце триаса.
Юру часто представляют как время гигантских динозавров. Это верно лишь отчасти. Именно тогда зауроподы заняли множество растительноядных ниш и достигли огромных размеров, стегозавры приобрели характерные пластины и хвостовые шипы, а крупные тероподы стали главными наземными хищниками. Но юрский мир не исчерпывался динозаврами. В морях жили ихтиозавры, плезиозавры и морские крокодиломорфы, в воздухе летали разнообразные птерозавры, а среди лесной подстилки существовали мелкие млекопитающие и их ближайшие родственники. К концу периода появились птицы в широком эволюционном смысле.
Юрский период не был одной неизменной «эпохой гигантов». Раннюю юру отделяли от поздней десятки миллионов лет, и животные из этих интервалов не встречались друг с другом. Дилофозавр жил намного раньше аллозавра, а тираннозавр и трицератопс появились уже в следующем, меловом периоде.
Юрский период в цифрах
| Параметр | Сведения |
|---|---|
| Положение в шкале | второй период мезозойской эры |
| Начало | 201,4 ± 0,2 миллиона лет назад |
| Конец | 143,1 ± 0,6 миллиона лет назад |
| Продолжительность | около 58,3 миллиона лет |
| Предыдущий период | триасовый |
| Следующий период | меловой |
| Официальные эпохи | ранняя, средняя и поздняя юра |
| Число ярусов | 11 |
| Главные изменения суши | начало широкого распада Пангеи, развитие рифтов и новых морских проливов |
| Характерные наземные животные | зауроподы, тероподы, стегозавры, ранние птицы, мелкие млекопитающие |
| Характерные морские ископаемые | аммониты, белемниты, ихтиозавры, плезиозавры, талаттозухии |
Даты приведены по Международной хроностратиграфической шкале версии 2026/06. Числа возле границ являются современными оценками и могут уточняться. Сам период определяется не календарём, а последовательностью пород и международными стратиграфическими эталонами. Общий принцип устройства такой шкалы подробно разобран в статье о геологических эрах.
Почему период называется юрским
Название связано не с динозаврами и не с романом или фильмом, а с горами Юра на границе Франции и Швейцарии. В конце XVIII века Александр фон Гумбольдт выделил распространённые там известняки как особую толщу. В 1829 году Александр Броньяр использовал выражение terrains jurassiques, сопоставляя породы Юры с одновозрастными европейскими отложениями. Так географическое название превратилось в термин геологической шкалы.
Ранние исследователи делили толщу в основном по типу камня. Позднее решающую роль получили ископаемые, особенно быстро менявшиеся аммониты. Последовательные комплексы их раковин позволили сопоставлять морские разрезы, удалённые друг от друга на сотни и тысячи километров. Радиометрические даты вулканического пепла и магнитостратиграфия добавили к биологической шкале числовые оценки.
Поэтому «юра» имеет два связанных значения. Юрский период обозначает время, а юрская система – породы, возникшие в течение этого времени. В повседневном тексте разницу часто опускают, но для геолога слой известняка не является самим временем: он лишь хранит часть событий, происходивших в определённом интервале.
Где проходят границы юры
Начало юры совпадает с основанием геттангского яруса. Его международный эталон находится в разрезе Кухйох в австрийском Тироле. Граница проведена в конкретной точке последовательности пород и связана прежде всего с появлением аммонита Psiloceras spelae tirolicum. Возраст точки оценивают примерно в 201,4 миллиона лет.
Эта граница расположена сразу после одного из пяти крупнейших массовых вымираний фанерозоя. В конце триасового периода исчезли многие морские организмы и несколько важных групп наземных позвоночных. Извержения Центрально-Атлантической магматической провинции выбрасывали огромные объёмы углекислого газа и других веществ. Геохронология, ртутные аномалии и изменения изотопного состава углерода связывают импульсы магматизма с быстрыми нарушениями климата и углеродного цикла. Это не означает, что вся жизнь исчезла в один день: кризис состоял из последовательности экологических ударов и последующего восстановления.
Конец юры численно помещён около 143,1 миллиона лет назад. Здесь есть важная тонкость. Международный эталон основания меловой системы до сих пор не утверждён, поэтому граница юры и мела остаётся единственной границей между системами фанерозоя без ратифицированного GSSP. Исследователи сопоставляют кандидатов по микрофоссилиям, аммонитам и магнитным инверсиям, но универсальный сигнал для разных морских областей найти трудно. Следовательно, цифра удобна для современной шкалы, однако она не заменяет ещё не завершённую работу по выбору эталонного разреза.
Ранняя, средняя и поздняя юра
Юрский период делится на три эпохи и одиннадцать ярусов. Эпохи помогают увидеть крупный ход событий, а ярусы нужны для более точного сопоставления пород и находок.
| Эпоха | Ярусы от древних к молодым | Приблизительные границы |
|---|---|---|
| Ранняя юра | геттанг, синемюр, плинсбах, тоар | 201,4–174,7 млн лет назад |
| Средняя юра | аален, байос, бат, келловей | 174,7–161,5 млн лет назад |
| Поздняя юра | оксфорд, киммеридж, титон | 161,5–143,1 млн лет назад |
Числа внутри таблицы не нужно превращать в точные даты жизни каждого рода. Ископаемая кость обычно относится к слою или формации, которые сами имеют диапазон возраста. Если формация накапливалась несколько миллионов лет, нельзя без отдельного датирования утверждать, что конкретное животное жило ровно 155 миллионов лет назад.
Ранняя юра: восстановление после кризиса
В начале периода суша всё ещё в основном составляла Пангею. Связь между регионами позволяла некоторым линиям животных широко расселяться, но климатические барьеры, горы, пустыни и большие речные системы всё равно разделяли фауны. После триасового вымирания динозавры стали заметно важнее в наземных сообществах. Это было не внезапное «завоевание планеты», а расширение уже существовавших линий в освободившиеся экологические пространства.
Среди крупных растительноядных сохранялись разные завроподоморфы. Рядом с ними появлялись более специализированные ранние зауроподы с массивными конечностями и обязательной четвероногой походкой. Хищные тероподы включали лёгких целофизоидов и более крупных форм. Дилофозавр из Северной Америки известен именно из ранней юры. Его двойной костный гребень реален, а раскрывающийся шейный воротник и плевок ядом являются вымыслом кино.
Небольшие птицетазовые динозавры занимали растительноядные и, возможно, более всеядные ниши. Ранние бронированные формы показывают, что линия тиреофор уже экспериментировала с кожными костными пластинами, хотя знаменитые стегозавры поздней юры ещё не возникли в привычном виде.
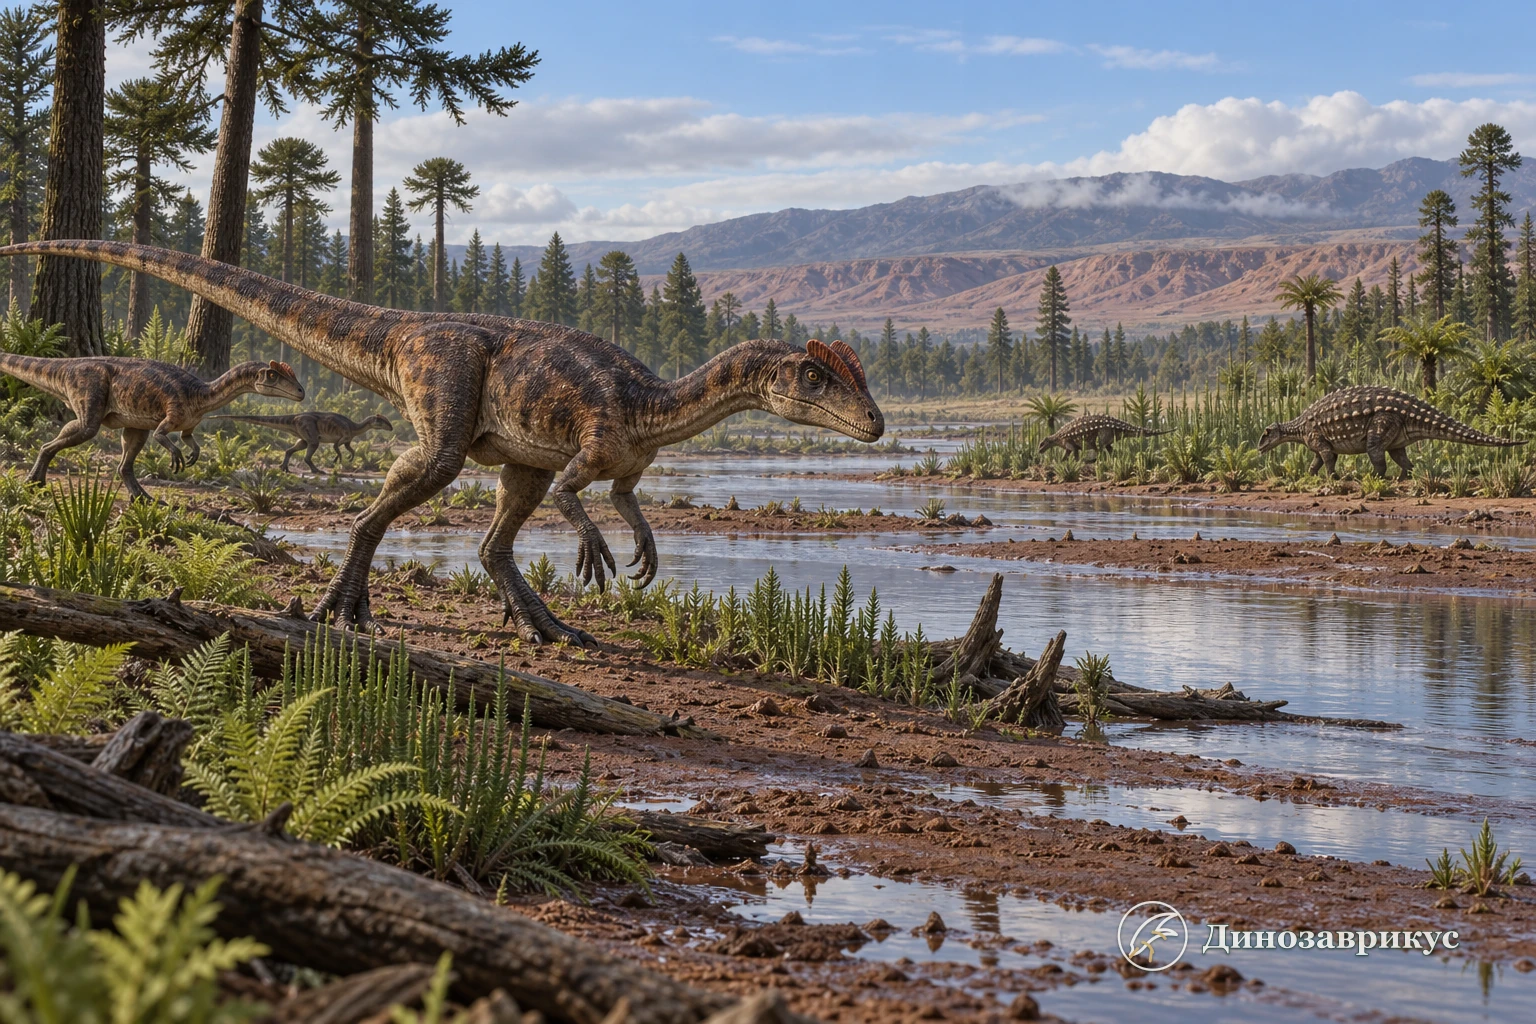
Сцена объединяет характерные типы животных и растений ранней юры, но не изображает конкретное совместное захоронение. Их положение, окраска и поведение являются осторожной художественной реконструкцией.
Средняя юра: время больших эволюционных перестроек
Среднеюрская летопись суши неравномерна. В некоторых регионах породы этого возраста плохо обнажаются, разрушены эрозией или скрыты под более молодыми толщами. Поэтому впечатление о резком появлении групп иногда отражает пробелы в находках, а не реальный одномоментный скачок.
Несмотря на неполноту, средняя юра была важнейшим этапом эволюции динозавров. К этому времени появились ранние представители многих линий неозавропод, а находки из Китая показывают, что разделение крупных ветвей зауроподов началось раньше, чем долго считалось. Зауроподы увеличивали размеры, изменяли строение позвонков, конечностей и плечевого пояса, а их дыхательная система с воздушными мешками облегчала огромный скелет и помогала снабжать организм кислородом.
Птицетазовые становились разнообразнее: развивались стегозавры, ранние анкилозавры и орнитоподы. Среди тероподов существовали мегалозавроиды, цератозавры, ранние аллозавроиды и небольшие целурозавры. Именно в средней и поздней юре у ряда мелких теропод появляются сочетания признаков, приближающие их к птицам.
Формация Шишугоу в Джунгарском бассейне Китая показывает не единый момент времени, а последовательность средне- и позднеюрских сообществ. Здесь найдены зауроподы, тероподы, небольшие птицетазовые, крокодиломорфы, черепахи и млекопитающие. Вулканический пепел помог датировать отдельные уровни, а многочисленные скелеты позволяют изучать не только список животных, но и условия их захоронения.
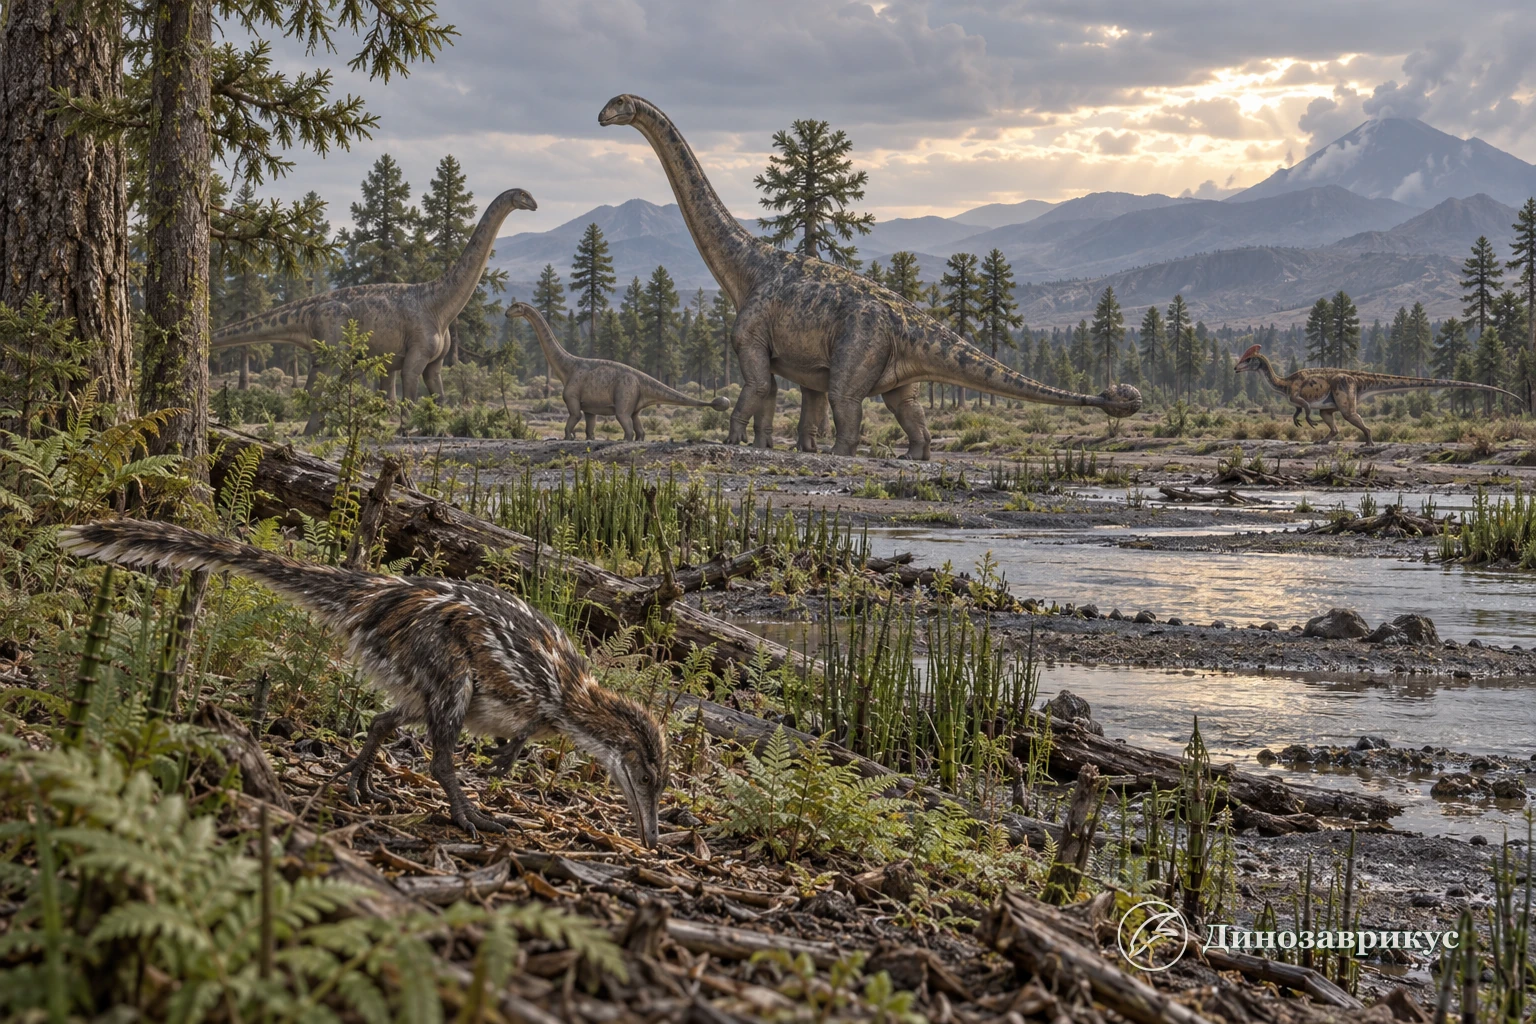
Это собирательная реконструкция среды Джунгарского бассейна. Она показывает вероятный облик поймы, а не утверждает, что все изображённые животные находились рядом в один момент.
Поздняя юра: знакомые гиганты и первые птицы
Поздняя юра оставила несколько особенно богатых наземных и морских комплексов. Формация Моррисон в западной части Северной Америки известна зауроподами, стегозаврами и крупными тероподами. Тендагуру в Танзании, Лоуриньян в Португалии и многочисленные азиатские формации показывают иные сочетания родов. Сходство общих групп не делает эти сообщества одинаковыми: между ними лежали моря, климатические пояса и разные интервалы времени.
Диплодоциды, брахиозавриды, камаразавроподобные и другие зауроподы использовали разные высоты кормления и способы захвата растений. Диплодоки обладали вытянутым телом, длинным хвостом и сравнительно лёгким черепом с зубами в передней части челюстей. Их нельзя считать просто уменьшенной или вытянутой версией любого другого зауропода.
Стегозавры несли пластины вдоль спины и крупные шипы на хвосте. Пластины, вероятно, участвовали в демонстрации и могли влиять на теплообмен, но их функция не сводится к одной доказанной задаче. Хвостовые шипы были настоящим оружием: повреждения на костях хищников и механика хвоста делают защитное применение правдоподобным.
Среди хищников особенно известны аллозавры. Их многочисленные находки дают гораздо более надёжное представление об анатомии, чем отдельные эффектные скелеты редких родов. При этом скопление нескольких особей возле костей растительноядного не доказывает согласованную стайную охоту. Хищники могли независимо подходить к туше, а тела затем накапливались в одном месте.
Как распадалась Пангея
В начале юры Атлантического океана в современном виде не существовало. Между Северной Америкой, Африкой и Европой развивалась система рифтов. Земная кора растягивалась, блоки опускались, долины заполнялись озёрами и речными отложениями, а магма проникала по разломам. Не каждый рифт превращался в океан, но успешные ветви постепенно образовали новые морские бассейны.
Раскол материка не был трещиной, разом разделившей сушу. Он длился миллионы лет. Сначала возникали протяжённые впадины, затем узкие моря, и лишь позднее устанавливалась полноценная океаническая кора. Центральная Атлантика расширялась, а Тетис соединял тропические морские области. На юге Гондвана тоже начала распадаться, хотя окончательное отделение её частей продолжалось в меловом периоде.
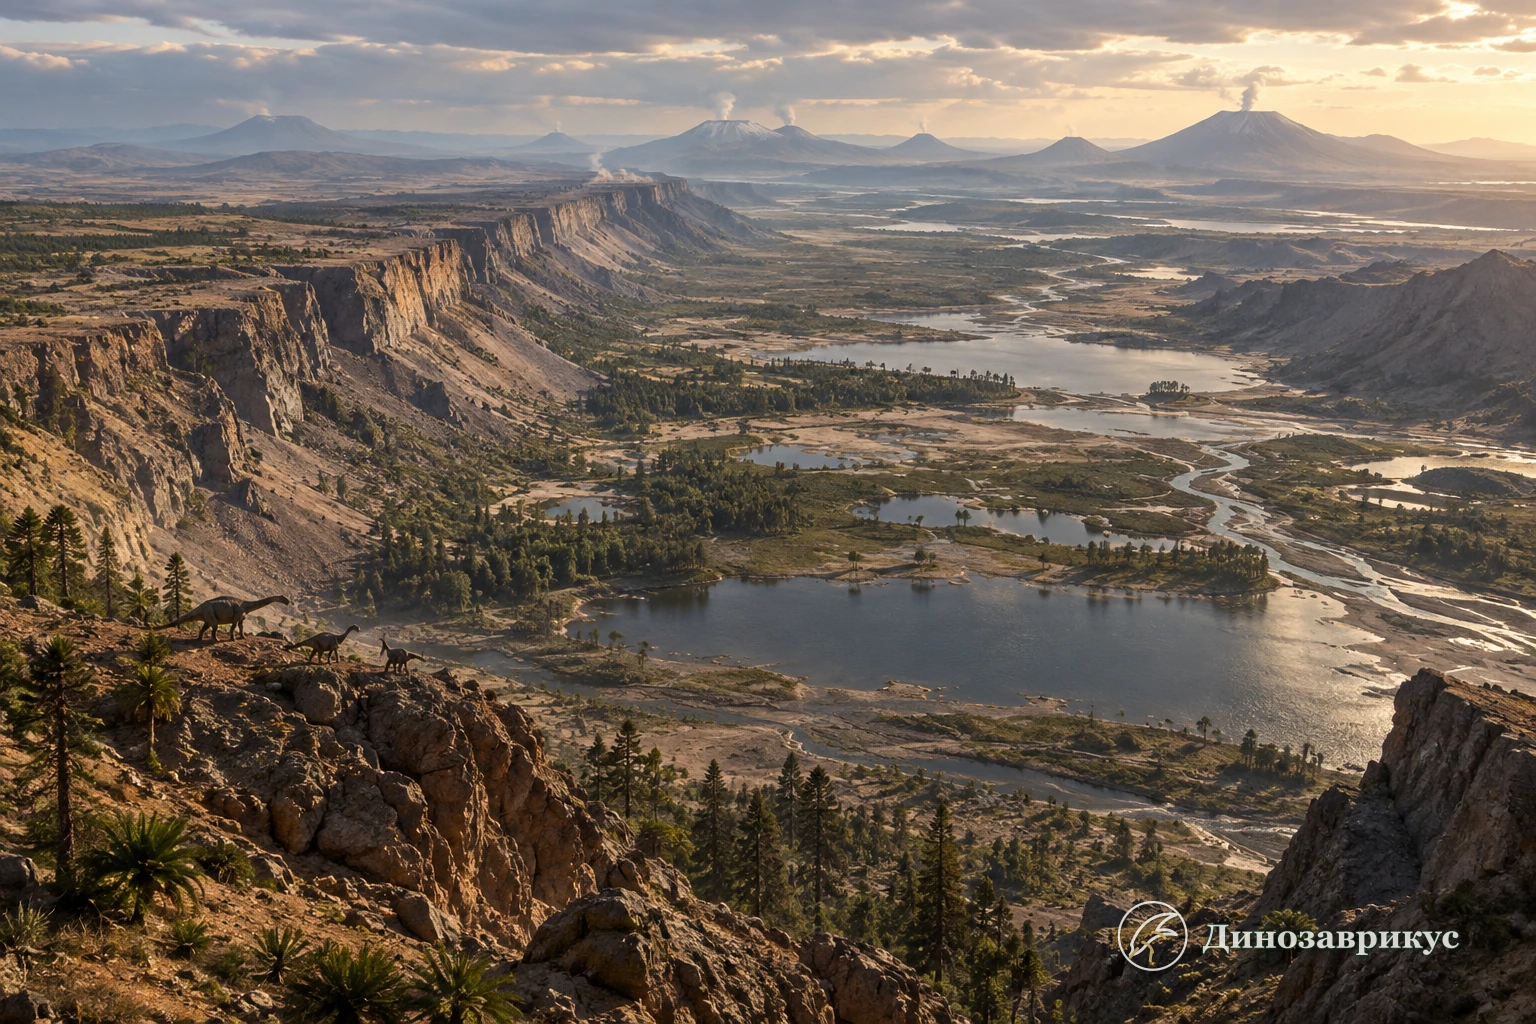
Рифтовый ландшафт показывает геологический процесс, а не точную карту конкретного места. Реальные разломы, вулканические области и водоёмы возникали в разное время и имели разные масштабы.
Палеогеография влияла на живые организмы двумя противоположными способами. Сохранявшиеся сухопутные связи позволяли расселение, а новые моря и рифтовые зоны разделяли популяции. Изоляция способствовала различиям между региональными фаунами. Одновременно мелководные моря создавали огромные площади шельфа для аммонитов, двустворчатых моллюсков, рыб и морских рептилий.
Распад Пангеи менял и циркуляцию атмосферы. Огромный континент усиливал сезонность во внутренних областях, тогда как новые береговые линии приносили морскую влагу в некоторые районы. Поэтому неверно описывать всю юру одним словом «влажная» или «сухая». На планете одновременно существовали засушливые внутренние бассейны, сезонные поймы, влажные прибрежные леса и морские архипелаги.
Климат юрского периода
В среднем юрский мир был теплее современного и не имел постоянных полярных ледяных щитов, сравнимых с нынешними. Однако это не означает неизменную тропическую жару от полюса до полюса. Геологические данные фиксируют колебания температуры, углекислого газа, осадков и уровня моря. Высокие широты переживали выраженную сезонность света, а отдельные индикаторы указывают на прохладные зимы и локальное образование льда.
Углекислый газ был важным климатическим фактором, но его концентрация не оставалась постоянной. Вулканизм добавлял углерод в атмосферу, выветривание силикатных пород и захоронение органического вещества постепенно его удаляли. Положение материков, морские течения, растительность и облачность меняли региональный ответ. Поэтому одна цифра содержания CO₂ не описывает все 58 миллионов лет.
Тоарское океаническое аноксическое событие
Около 183 миллионов лет назад, в раннем тоаре, углеродный цикл испытал сильное возмущение. Геохимические разрезы на разных континентах фиксируют отрицательный сдвиг изотопного состава углерода, потепление и распространение бедных кислородом морских вод. Урановые и молибденовые изотопы подтверждают, что аноксия расширилась далеко за пределы одного европейского бассейна, хотя её интенсивность различалась по регионам.
Наиболее убедительная причинная цепочка начинается с магматизма Кару–Феррар. Извержения и внедрение магмы в богатые органикой породы высвобождали углекислый газ и термогенный метан. Потепление усиливало круговорот воды и выветривание, принос питательных веществ в море поддерживал высокую продуктивность, а разложение органики расходовало растворённый кислород. Застой воды в отдельных бассейнах усугублял ситуацию.
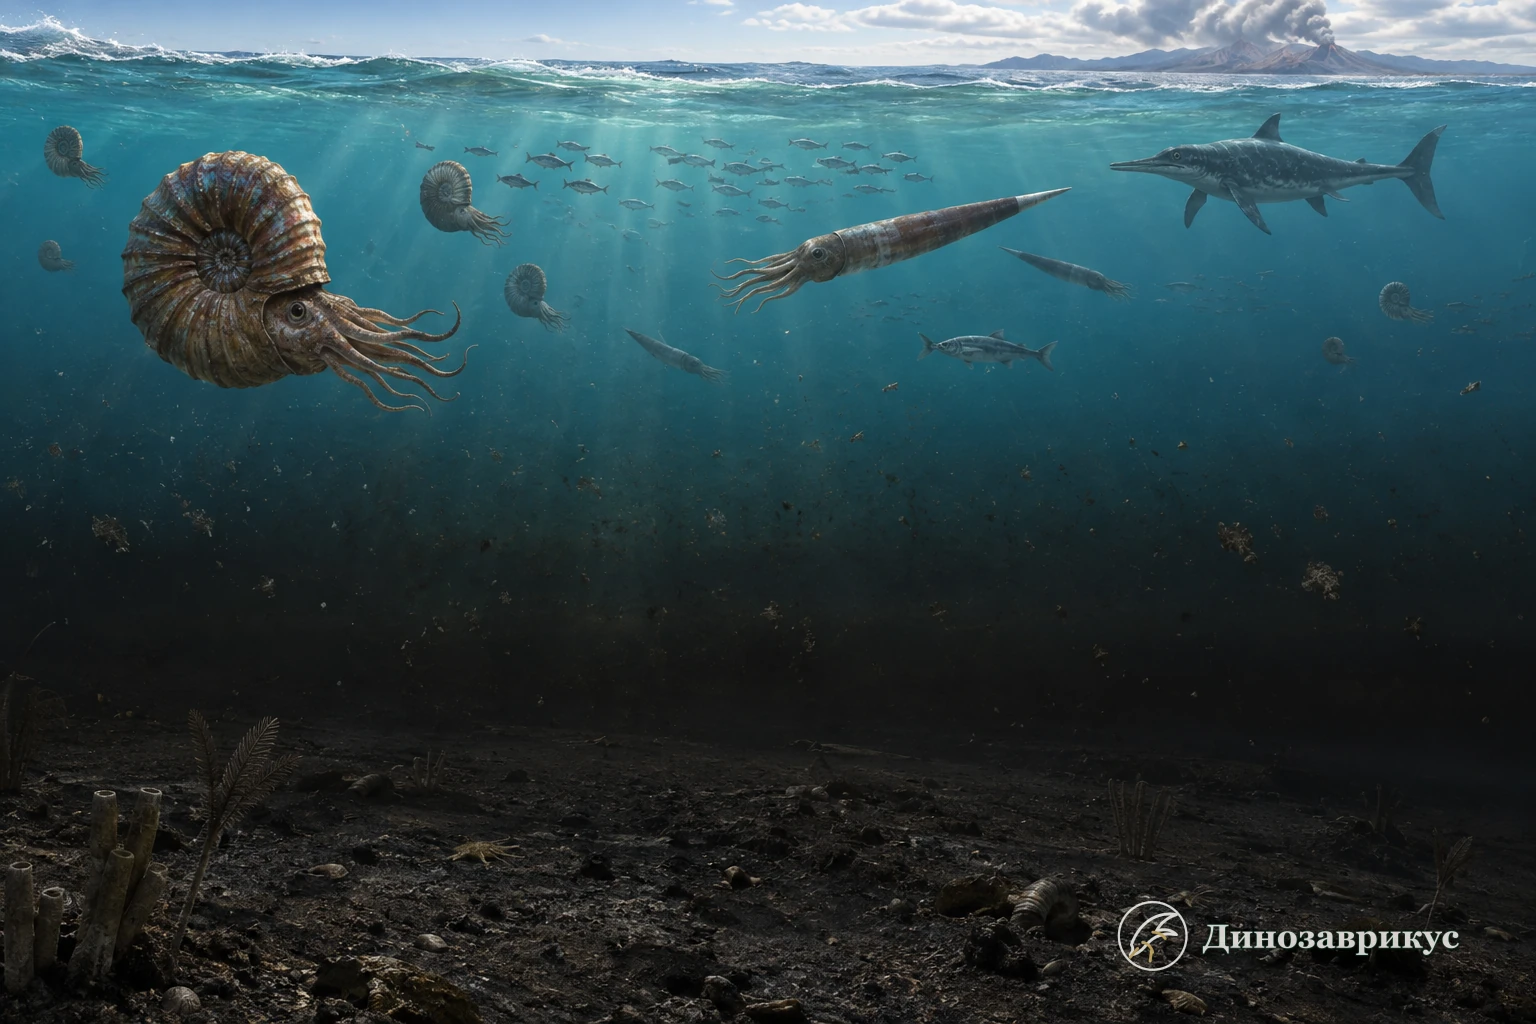
Цветовой переход показывает принцип стратификации воды. Он не означает, что граница кислорода в каждом тоарском море была одинаково резкой или находилась на одной глубине.
Событие сопровождалось кризисом морских экосистем и изменениями распространения организмов на суше. Его нельзя называть концом юрской жизни: многие линии пережили кризис, а экосистемы восстановились. Но тоарская аноксия доказывает, что «тёплый юрский климат» включал опасные быстрые перестройки, а не только благоприятные условия для гигантов.
Растения: леса без цветущих лугов
Юрские наземные экосистемы существовали до великого распространения покрытосеменных. Основу растительности составляли голосеменные и споровые растения. Хвойные формировали верхний ярус многих лесов. Рядом росли гинкговые, саговниковые и внешне похожие на них, но отдельные по строению репродуктивных органов беннеттитовые. Во влажных местах были обычны папоротники и хвощи.
Фраза «эра саговников» удобна, но может вводить в заблуждение. Значительная часть ископаемых листьев с саговниковым обликом принадлежит беннеттитовым. По одним листьям эти группы различить трудно, а репродуктивные органы показывают, что это разные эволюционные ветви. Так же нельзя считать любой высокий юрский ствол араукарией современного вида: ископаемые хвойные включали множество исчезнувших линий.
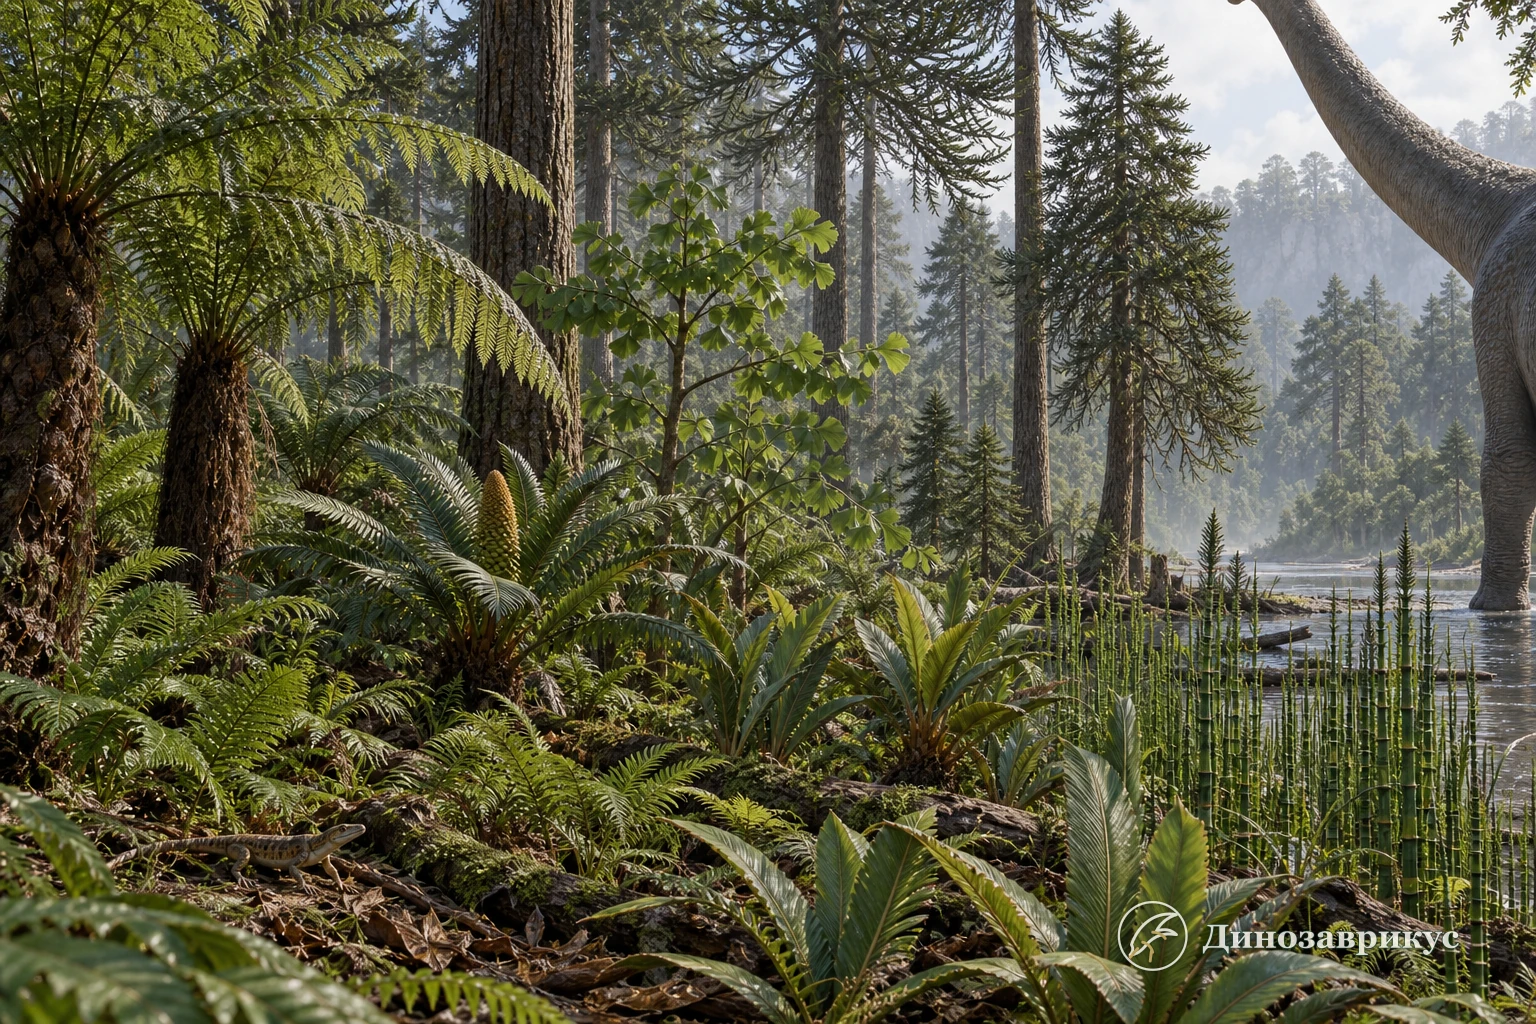
Растения показаны как собирательное сообщество. В реальности состав леса зависел от широты, почвы, влажности и конкретного этапа юры.
Травянистого покрова современного типа не было. Открытое пространство могло быть покрыто низкими папоротниками, плаунами, хвощами, мхами, опадом или оставаться почти голым. Цветковые растения не играли заметной роли в надёжно известной юрской растительности. Отдельные спорные находки и молекулярные оценки допускают более раннее происхождение их линии, но уверенное широкое распространение покрытосеменных фиксируется в мелу.
Растительноядные динозавры меняли растительность, объедая ветви, ломая молодые побеги и перенося семена и споры вместе с грунтом и пищеварительными остатками. Однако прямых свидетельств конкретного семени, распространённого конкретным юрским динозавром, обычно нет. Следы зубов, копролиты и содержимое кишечника встречаются редко, поэтому рацион реконструируют также по форме черепа, высоте кормления и износу зубов.
Динозавры юрского периода
Динозавры возникли в триасе, но именно в юре многие их крупные ветви получили широкое распространение. Все три главных направления уже существовали: длинношеие завроподоморфы, хищные и всеядные тероподы, а также разнообразные птицетазовые. Состав сообществ непрерывно менялся, поэтому список «юрских динозавров» всегда объединяет животных, разделённых временем и географией.
Почему зауроподы стали гигантами
Зауроподы сочетали несколько особенностей, позволявших поддерживать огромный размер. Колоннообразные конечности располагались под телом и работали как опоры. Длинная шея расширяла область кормления без необходимости переносить всё туловище к каждому растению. Маленькая голова не несла тяжёлого жевательного аппарата, а пища перерабатывалась главным образом в пищеварительном тракте. Воздушные полости в позвонках уменьшали массу шеи и туловища, а система воздушных мешков обеспечивала эффективную вентиляцию лёгких.
Гигантизм не возник из одной «волшебной» черты. Эволюционная история включала переход от двуногих и факультативно четвероногих завроподоморфов к обязательной четвероногой походке, изменения в конечностях и позвоночнике, быстрый рост и яйцекладение. Крупная взрослая самка не должна была вынашивать детёныша до огромной доли своей массы: зауроподы начинали жизнь в яйцах и проходили длительный рост после вылупления.
Не все зауроподы были одинаково огромными. Островной Europasaurus известен по костям особей разного возраста, а гистология показала, что небольшие экземпляры могли быть взрослыми. Это один из лучших примеров островной карликовости у динозавров и напоминание, что размер зависел от среды и эволюционной истории.
Хищники и их реальные возможности
Юрские тероподы различались от небольших лёгких охотников до многотонных хищников. Аллозавроиды, мегалозавроиды и цератозавры имели разные пропорции черепа, шеи и передних конечностей. Они не были ранними копиями тираннозавра: тираннозавриды развили свой характерный комплекс признаков значительно позже.
Следы укусов на костях, сломанные и зажившие кости, форма зубов и биомеханические модели помогают оценивать кормление. Они показывают, что крупные тероподы кусали живых животных и питались тушами, но редко позволяют восстановить одну точную сцену охоты. Заживший укус доказывает, что жертва пережила травму; незажившие следы на кости могут быть оставлены уже после смерти.
Идея организованных стай остаётся спорной для большинства крупных юрских хищников. Совместные следовые дорожки или скопления костей требуют тафономической проверки: вода способна собрать в одном слое животных, которые никогда не ходили вместе. Групповое присутствие возможно, но сложную кооперацию нельзя выводить только из числа скелетов.
Птицетазовые: броня, пластины и быстрые бегуны
Стегозавры стали одними из самых узнаваемых позднеюрских динозавров, но птицетазовые были разнообразнее. Небольшие орнитоподы передвигались на задних ногах и быстро срезали низкую растительность клювом. Ранние анкилозавры усиливали кожную броню. Другие формы сочетали небольшое тело, длинные задние конечности и зубы, подходившие для растительного или смешанного рациона.
Противопоставление «умных хищников» и «глупых травоядных» не имеет научного смысла. Размер мозга оценивают по полости черепа, но поведение не сводится к одному отношению объёма мозга к массе тела. Защита, выбор пищи, сезонные перемещения и размножение требовали сенсорных и двигательных решений, которые плохо сохраняются в ископаемой летописи.
Жизнь в юрских морях
Морские рептилии юры не были динозаврами. Ихтиозавры происходили из отдельной линии рептилий и имели обтекаемое тело с конечностями, превращёнными в ласты. Плезиозавры делились на формы с относительно длинной шеей и небольшой головой и более короткошеих хищников с крупным черепом, хотя реальные пропорции образуют широкий спектр. Талаттозухии были морскими родственниками крокодилов; некоторые приобрели ластообразные конечности и хвостовой плавник.
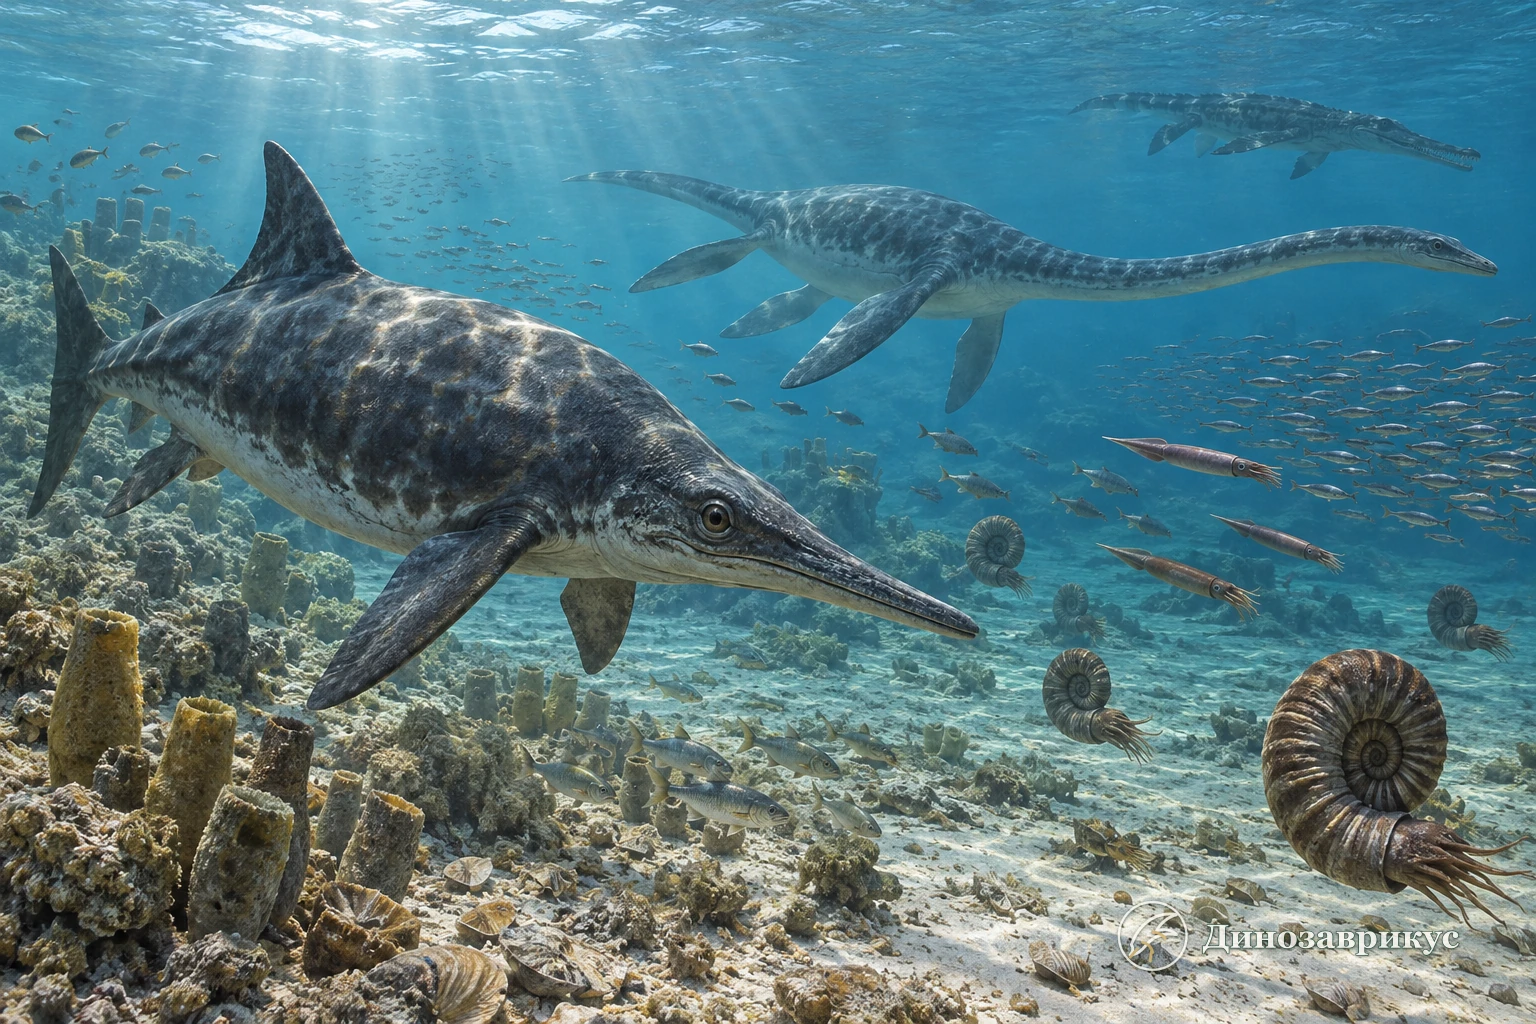
Реконструкция показывает несколько крупных морских линий в общей среде. Конкретные виды могли жить в разных бассейнах и не обязательно встречались вместе.
Аммониты были особенно важны и как участники экосистем, и как инструменты геологов. Их раковины хорошо сохранялись, а виды сравнительно быстро сменяли друг друга. Это позволяет делить юрские толщи на множество аммонитовых зон. Белемниты оставили пулевидные внутренние ростры, а мягкие части известны гораздо хуже. Двустворчатые моллюски, морские ежи, губки, ракообразные и планктон составляли основу сложных пищевых сетей.
Нельзя говорить, что морские рептилии «правили океаном» как единая армия. Они занимали разные ниши: одни преследовали рыбу и головоногих в открытой воде, другие охотились у берегов или на глубине. Форма зубов, содержимое желудка и повреждения костей дают прямые подсказки, но скорость, глубина погружения и стратегия охоты часто оцениваются по моделям и сравнению с современными животными.
Птерозавры и происхождение птиц
Птерозавры появились ещё в триасе и оставались единственными позвоночными с активным полётом до возникновения птиц. Их крыло поддерживал сильно удлинённый четвёртый палец, а перепонка включала мышечные и волокнистые структуры. В ранней и средней юре были обычны длиннохвостые формы, а к поздней юре разнообразились птеродактилоиды с укороченным хвостом и изменёнными пропорциями черепа и конечностей.
Птерозавры не были ни динозаврами, ни предками птиц. Обе группы относятся к орнитодирам и имеют общего более древнего предка, но крыло возникло у них независимо. Птичье крыло построено на передней конечности с перьями, птерозавровое – на кожной перепонке, натянутой прежде всего к удлинённому пальцу.
Происхождение птиц связано с небольшими пернатыми тероподами. Позднеюрский археоптерикс сочетал маховые перья и крылья с зубами, длинным костным хвостом и когтистыми пальцами. Хорошо сохранившееся оперение показывает асимметричные маховые перья и перья на задних конечностях. При этом археоптерикс не обязан быть прямым предком всех современных птиц: это близкий к основанию ранний представитель птичьей ветви.
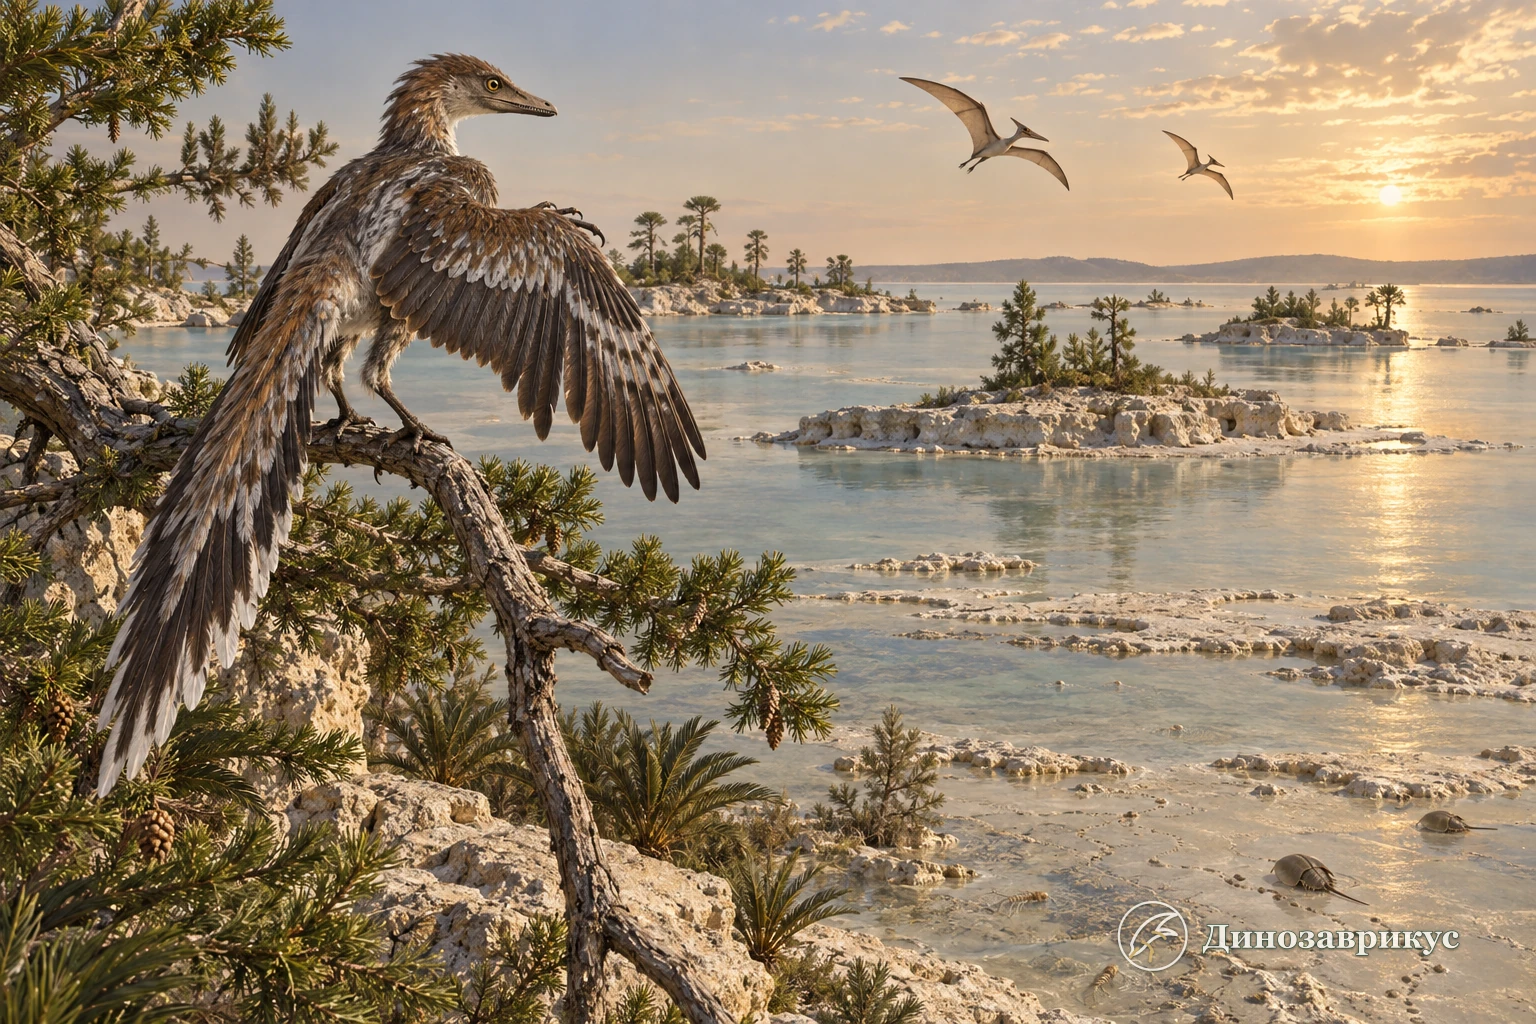
Положение перьев основано на отпечатках археоптерикса, но окраска неизвестна для изображённой особи. Лагунный пейзаж реконструирован по карбонатным отложениям района Зольнхофена.
Способность археоптерикса к полёту обсуждается. Анатомия крыла и асимметрия перьев поддерживают аэродинамическую функцию, но его взлёт, продолжительность полёта и манёвренность не были тождественны возможностям любой современной птицы. Осторожнее говорить, что он был способен к некоторой форме машущего полёта или сочетал её с планированием, чем рисовать его как современного сокола.
Млекопитающие и другие небольшие позвоночные
Юрские млекопитающие и маммалиаформы часто описываются как однообразные ночные насекомоядные размером с мышь. Новые находки разрушили эту схему. Большинство действительно было небольшим, но существовали древесные, роющие, полуводные и планирующие формы, а зубы указывают на насекомоядность, хищничество, всеядность и растительноядность.
Megaconus из средней юры имел мех и специализированные многобугорчатые зубы, пригодные для переработки растительной пищи. Эухарамийиды из Китая показывают разнообразные древесные приспособления. Докодонты демонстрируют, что близкие к млекопитающим линии занимали разные экологические ниши задолго до конца мела.
Переход от костей челюсти к элементам среднего уха шёл мозаично. У разных ранних форм сохранялись разные состояния сочленений и слухового аппарата. Поэтому нельзя провести одну простую линию от «рептилии» к современному млекопитающему. Юрская летопись хранит ветвящееся множество экспериментов, часть которых закончилась вымиранием.
В тех же экосистемах жили черепахи, ранние ящерицы и их родственники, земноводные, наземные и пресноводные крокодиломорфы. Многие были малы и имели тонкие кости, поэтому сохранялись хуже крупных динозавров. Исключительные мелкозернистые местонахождения помогают исправить этот перекос, но глобальная картина всё равно сильно зависит от того, где обнажаются подходящие породы.
Главные юрские местонахождения
Ни одно местонахождение не является фотографией всего периода. Каждое сохраняет определённый регион, среду и отрезок времени. Сопоставление разных формаций позволяет увидеть разнообразие юрского мира.
| Местонахождение или формация | Возраст и регион | Что особенно важно |
|---|---|---|
| Нижняя формация Кайента | ранняя юра, запад Северной Америки | тероподы, ранние птицетазовые, следы сезонных речных и дюнных ландшафтов |
| Лайм-Реджис и юрское побережье Британии | ранняя юра, морские отложения | ихтиозавры, плезиозавры, аммониты и история ранней палеонтологии |
| Стоунсфилд и другие среднеюрские разрезы Англии | средняя юра | одни из ранних исторических находок динозавров и млекопитающих |
| Шишугоу | средняя–поздняя юра, Китай | богатая наземная фауна, вулканический пепел и необычные тафономические ловушки |
| Тяоцзишань и Яньляо | средняя–поздняя юра, Китай | мелкие пернатые динозавры, ранние птицы, птерозавры и млекопитающие с сохранением тонких деталей |
| Оксфордская глина | средняя юра, Британия | морские рептилии, рыбы, головоногие и беспозвоночные |
| Моррисон | поздняя юра, запад Северной Америки | разнообразные зауроподы, стегозавры, тероподы и речные поймы сезонно сухого внутреннего бассейна |
| Тендагуру | поздняя юра, Танзания | африканские зауроподы, стегозавры и тероподы в прибрежной равнинной системе |
| Лоуриньян | поздняя юра, Португалия | динозавры, яйца и гнездовые материалы на атлантической окраине Европы |
| Зольнхофенские известняки | поздняя юра, Германия | археоптерикс, птерозавры, рыбы и беспозвоночные в тонкозернистых лагунных отложениях |
Моррисон часто изображают как пышный непрерывный лес, но геология и модели климата указывают на сезонно сухой внутренний бассейн. Реки, озёра и локальные заболоченные участки соседствовали с более засушливыми пространствами. Тендагуру тоже включает разные обстановки и этапы накопления. Сходство отдельных групп между Африкой, Европой и Северной Америкой отражает общую историю линий и сохранявшиеся пути расселения, но не доказывает существование одной глобальной фауны.
Все тематические материалы и обзоры животных собраны отдельно в каталоге статей о юрском периоде. Он дополняет эту страницу: здесь объясняется сам период, а там можно переходить к конкретным находкам, видам и вопросам.
Что находки говорят точно, а что остаётся реконструкцией
Прямыми свидетельствами являются сами кости, зубы, раковины, следовые дорожки, отпечатки кожи и перьев, копролиты, пыльца, споры, химический состав породы и положение находки в слое. Они позволяют описать анатомию, относительный возраст, среду захоронения и некоторые действия животных.
Исследовательские выводы требуют метода. Массу динозавра оценивают по объёмной модели или окружности опорных костей. Скорость движения рассчитывают по длине шага и высоте бедра. Климат восстанавливают по изотопам, почвам, растительным остаткам и моделям. Эти результаты научны, но содержат диапазон неопределённости и могут меняться при новых данных.
Художественная реконструкция заполняет то, чего окаменелость не сообщает. Цвет большинства животных, точный рисунок кожи, выражение глаз, момент взаимодействия и погода конкретного дня обычно неизвестны. Даже правдоподобная иллюстрация не является снимком юры. Её ценность в том, что она согласует известные элементы и ясно показывает границы догадки.
Чем юра отличалась от триаса и мела
В триасе Пангея была более цельной, внутренние районы отличались сильной сезонностью, а динозавры делили сушу с разнообразными другими архозаврами. Конец триаса сопровождался массовым вымиранием, после которого динозавры расширили экологическое присутствие. Юра унаследовала многие триасовые линии, но её наземные сообщества уже заметно ближе к привычному образу «мира динозавров».
В мезозойской эре юра занимает середину и связывает два крупных этапа. В течение периода усложнялись океанические связи, становились разнообразнее зауроподы и птицетазовые, развивались пернатые тероподы и ранние птицы. При этом покрытосеменные ещё не перестроили наземную растительность.
В меловом периоде материки сильнее приблизились к современному расположению, цветковые растения широко распространились, а фауны включали множество групп, которых не было в поздней юре. Тираннозавриды, гадрозавры и цератопсы стали заметными компонентами многих позднемеловых сообществ. Мел закончился глобальным массовым вымиранием 66 миллионов лет назад; конец юры не имеет сопоставимого единственного катастрофического маркера.
Почему юрский период важен
Юра показывает, как жизнь реагирует не только на один удар, но и на долгую перестройку планеты. В начале периода экосистемы восстанавливались после массового вымирания. Затем распад суперконтинента создавал новые берега и барьеры, а климат менялся под действием вулканизма, углеродного цикла и океанической циркуляции. На этом фоне динозавры достигли новых размеров, морские рептилии разделили охотничьи ниши, млекопитающие освоили разные способы жизни, а перья и крылья теропод привели к появлению птиц.
Юрская летопись также учит осторожности. Богатые формации создают ощущение, будто мы знаем целый мир, но между ними остаются географические и временные пробелы. Один скелет раскрывает анатомию, следовая дорожка – движение, слой чёрного сланца – состояние моря, однако полная экосистема возникает только при соединении множества независимых линий данных.
Частые вопросы
Когда начался и закончился юрский период?
По шкале ICS 2026/06 юрский период начался около 201,4 миллиона лет назад и закончился примерно 143,1 миллиона лет назад. Числовые оценки уточняются, а официальные границы определяются по эталонным разрезам; для границы юры и мела GSSP пока не ратифицирован.
Какие самые известные динозавры жили в юрском периоде?
К юре относятся диплодок, апатозавр, брахиозавр, камаразавр, стегозавр, аллозавр, цератозавр, мегалозавр и дилофозавр. Они жили в разные эпохи и регионы, поэтому не составляли одно общее сообщество.
Был ли тираннозавр животным юрского периода?
Нет. Тираннозавр жил в самом конце мелового периода, примерно 68–66 миллионов лет назад, более чем через 75 миллионов лет после завершения юры. Крупными хищниками поздней юры были другие тероподы, в том числе аллозавриды.
Почему юрский период связывают с динозаврами сильнее других периодов?
Юра дала хорошо сохранившиеся и впечатляющие скелеты гигантских зауроподов, стегозавров и крупных хищников, а её название закрепилось в массовой культуре. При этом динозавры появились ещё в триасе и существовали до конца мела, так что их история охватывает весь поздний мезозой, а не только юру.


Комментарии 11