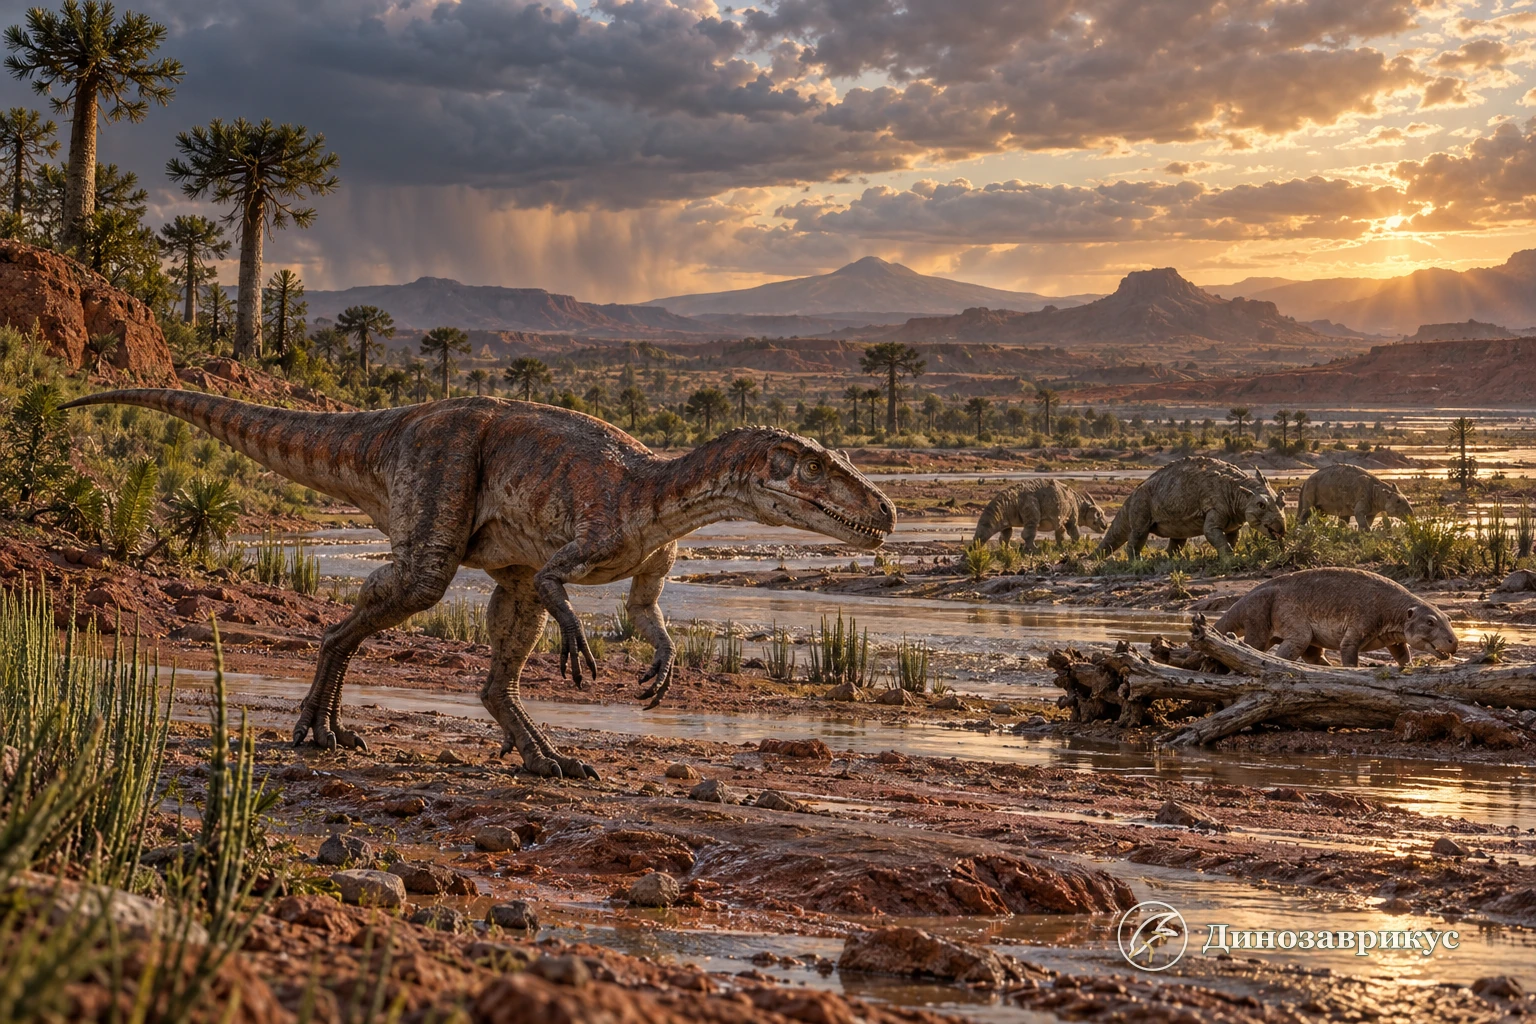
Триасовый период продолжался от 251,902 до 201,4 миллиона лет назад и был первым периодом мезозойской эры. Он начался в мире, опустошённом крупнейшим массовым вымиранием, а закончился новым глобальным кризисом. Между этими двумя границами экосистемы восстановились, моря заселили новые линии рептилий, появились птерозавры, ранние динозавры и ближайшие к настоящим млекопитающим формы.
Триас часто представляют как начало безраздельного «века динозавров». На самом деле большую часть периода динозавры оставались одной из нескольких ветвей архозавров. Рядом с ними процветали ринхозавры, дицинодонты, цинодонты, темноспондильные амфибии и многочисленные родственники крокодилов. Лишь после перестройки позднетриасовых сообществ и вымирания на границе с юрой динозавры получили возможность занять многие освободившиеся ниши.
Триас был не готовой декорацией для динозавров, а временем длительного восстановления и эволюционных экспериментов. Его первые и последние ландшафты отличались друг от друга сильнее, чем кажется по слову «период».
Триасовый период в цифрах
| Параметр | Сведения |
|---|---|
| Положение в шкале | первый период мезозойской эры |
| Начало | 251,902 ± 0,024 миллиона лет назад |
| Конец | 201,4 ± 0,2 миллиона лет назад |
| Продолжительность | около 50,5 миллиона лет |
| Предыдущий период | пермский |
| Следующий период | юрский |
| Официальные эпохи | ранняя, средняя и поздняя |
| Число ярусов | 7 |
| Главные события | восстановление после пермского вымирания, обновление морских и наземных экосистем, появление динозавров, птерозавров и ранних маммалиаформ, конец периода у нового массового вымирания |
Даты приведены по Международной хроностратиграфической шкале версии 2026/06. Значения с тремя знаками после запятой относятся к расчётному возрасту официальной границы, а не означают, что любое событие на планете можно датировать с точностью до тысячи лет. Почему эра, период, эпоха и век обозначают разные уровни шкалы, объясняет обзор геологических эр.
Почему название означает «тройственный»
Термин связан не с тремя эпохами и не с тремя группами животных. В 1834 году немецкий геолог Фридрих Август фон Альберти объединил три характерные толщи Центральной Европы: пёстрый песчаник, раковинный известняк и кейпер. Их немецкие названия – Buntsandstein, Muschelkalk и Keuper. Альберти назвал объединённую последовательность Trias, то есть тройственной.
Эта схема хорошо работала в Германии, где чередуются преимущественно континентальные, морские и снова континентальные отложения. Однако её нельзя механически переносить на весь мир. В Южной Америке, Африке, Китае или западной части Северной Америки триасовые породы формировались в других бассейнах и выглядят иначе. Современная международная система опирается не на германскую тройку пород, а на глобально сопоставимые границы и ископаемые маркеры.
Короткая историческая страница «Триас» показывает, как этот период описывали в старой популярной традиции. Новый обзор использует её как дополнительный маршрут, но не смешивает прежнюю схему с современной шкалой.
Где в породах начинается и заканчивается триас
Нижняя граница триаса одновременно является началом мезозойской эры. Её международный эталон находится в разрезе Мэйшань D в китайской провинции Чжэцзян. «Золотой гвоздь» установлен у основания слоя 27c, где впервые появляется конодонт Hindeodus parvus в прослеживаемой эволюционной последовательности. Эта точка имеет расчётный возраст 251,902 ± 0,024 миллиона лет.
Формальная граница проходит немного выше главного импульса морского вымирания. Поэтому нельзя представлять конец пермского периода как одну секунду, когда одновременно исчезли все виды. В разных средах кризис выражен по-разному, а отдельные линии пережили основной удар и исчезли позднее. Граница нужна для единого сопоставления пород, но сама биологическая катастрофа состояла из связанных событий.
Верхняя граница триаса закреплена в разрезе Кухйох в Северных Известняковых Альпах Австрии. Основание юрской системы определено по первому появлению аммонита Psiloceras spelae tirolicum. Рядом фиксируются изменения спор и пыльцы, состава микрофауны и изотопов углерода. Численный возраст границы в текущей шкале составляет 201,4 ± 0,2 миллиона лет.
Такой выбор показывает важный принцип: период начинается и заканчивается не изображением континентов на карте и не появлением самого известного животного. Его пределы проводят в конкретных разрезах по согласованным маркерам, а затем сопоставляют с другими морскими и континентальными последовательностями.
Три эпохи и семь ярусов
| Эпоха | Ярус | Возраст, млн лет назад |
|---|---|---|
| Ранний триас | индский | 251,902–250,8 |
| Ранний триас | оленёкский | 250,8–247,0 |
| Средний триас | анизийский | 247,0–241,464 |
| Средний триас | ладинский | 241,464–около 237 |
| Поздний триас | карнийский | около 237–около 227,3 |
| Поздний триас | норийский | около 227,3–около 205,7 |
| Поздний триас | рэтский | около 205,7–201,4 |
Часть чисел сопровождается словом «около», потому что возраст некоторых границ ещё уточняется. Формальный ярус определяется своим эталоном и положением в последовательности пород, а не одной навсегда неизменной цифрой. Новая датировка слоя может скорректировать численный возраст, не отменяя саму единицу.
У трёх эпох разный общий характер. Ранний триас отмечен последствиями пермской катастрофы и повторными экологическими нарушениями. В среднем триасе морские пищевые сети стали сложнее, а архозавры и их родственники заметно разнообразились на суше. Поздний триас дал надёжные находки динозавров, птерозавров и маммалиаформ, но одновременно пережил климатические перестройки и завершился массовым вымиранием.
Один период, четыре разных мира
| Интервал | Что происходило | Что было бы ошибкой |
|---|---|---|
| Самое начало триаса | жаркий нестабильный мир после пермского вымирания, упрощённые сообщества, повторные кризисы | считать, что жизнь полностью восстановилась сразу после границы |
| Средний триас | усложнение морских пищевых сетей, расцвет разных морских рептилий, разнообразие архозавроморфов | помещать сюда привычные позднеюрские сообщества динозавров |
| Карнийский век | влажные импульсы, крупная перестройка растительности и фаун, раннее расширение динозавров | называть любое похолодание или дождливый слой единым глобальным событием |
| Конец триаса | рифты в Пангее, магматизм CAMP, кризис морских и наземных экосистем | объяснять вымирание одним мгновенным извержением |
Эта таблица полезнее единой картинки «триасовой природы». Животные индского века не встречали позднетриасового целофиза, а морская фауна среднего триаса формировалась за миллионы лет после начального кризиса.
Пангея: почти единая суша и два огромных океанических пространства
В триасе большая часть континентальной коры была собрана в Пангею. Северную часть обычно называют Лавразией, южную – Гондваной. С запада суперконтинент омывала Панталасса, занимавшая большую часть поверхности планеты. С востока в сушу глубоко вдавался океан Тетис, окружённый островами, мелководными шельфами и отдельными континентальными блоками.
Слово «единый» не означает, что Пангея была идеально цельной и неподвижной. Вдоль окраин происходили столкновения и субдукция, Киммерийские блоки перемещались через Тетис, а внутри материка возникали растяжения и осадочные бассейны. Подробная история континентов в движении помогает увидеть процесс, а не одну застывшую карту.
К концу периода рифтовые зоны будущей Центральной Атлантики разделяли области, которые позднее станут Северной Америкой, Африкой, Южной Америкой и Европой. Океан ещё не был похож на современную Атлантику, но растяжение коры уже создавало длинные цепочки впадин. Общий материал о Пангее показывает дальнейшую судьбу суперконтинента в юре и мелу.
Климат: не сплошная пустыня
Огромная суша усиливала континентальность. Внутренние области находились далеко от океана, поэтому там были распространены сухие сезонные ландшафты, солончаки, дюны и красноцветные речные равнины. Геологические модели и осадочные породы указывают на сильную муссонную циркуляцию: летний нагрев материка втягивал влажный воздух, а сезонная смена ветров резко перераспределяла осадки.
Но климат менялся и во времени, и в пространстве. Высокоширотные районы могли быть влажнее и прохладнее тропических внутренних областей. У побережий Тетиса существовали морские климатические зоны, на речных равнинах зелёные коридоры чередовались с сухими водоразделами, а Восточная Азия состояла из блоков со своей океанической историей. Ледяных щитов масштаба позднего палеозоя не было, однако «без льда» не значит «одинаково жарко повсюду».
Особенно тяжёлыми были первые миллионы лет. Высокие температуры, дефицит кислорода в морях и нарушения круговорота питательных веществ могли повторно тормозить восстановление. Средняя температура всей планеты не сообщает, сколько воды было в конкретной пойме или насколько сильным был сезонный перепад. Именно поэтому климат триаса восстанавливают по совокупности ископаемых почв, минералов, изотопов, древесины, пыльцы и моделей циркуляции.
Ранний триас: жизнь после крупнейшей катастрофы
Пермско-триасовое вымирание уничтожило большую часть прежних морских сообществ и резко изменило наземные экосистемы. В раннем триасе появились сравнительно простые пищевые сети, а некоторые выносливые линии стали необычно многочисленными. Это иногда называют временем «таксонов катастрофы», но термин не означает, что на всей планете жило всего несколько видов.
На суше знаменит листозавр – коренастый дицинодонт с клювом и двумя бивнями. Он был широко распространён в южной Пангее и действительно часто встречается в раннетриасовых отложениях Южной Африки и Антарктиды. Однако популярное утверждение, будто листозавры составляли 95 процентов всех наземных позвоночных Земли, нельзя переносить с отдельных выборок на всю планету.
Рядом жили небольшие цинодонты, включая тринаксодона, темноспондильные амфибии, проколофоны и ранние архозавриформы. Протерозух выглядел крокодилоподобно, но не был крокодилом. Его находки показывают, что крокодиловая внешность сама по себе не определяет родство.
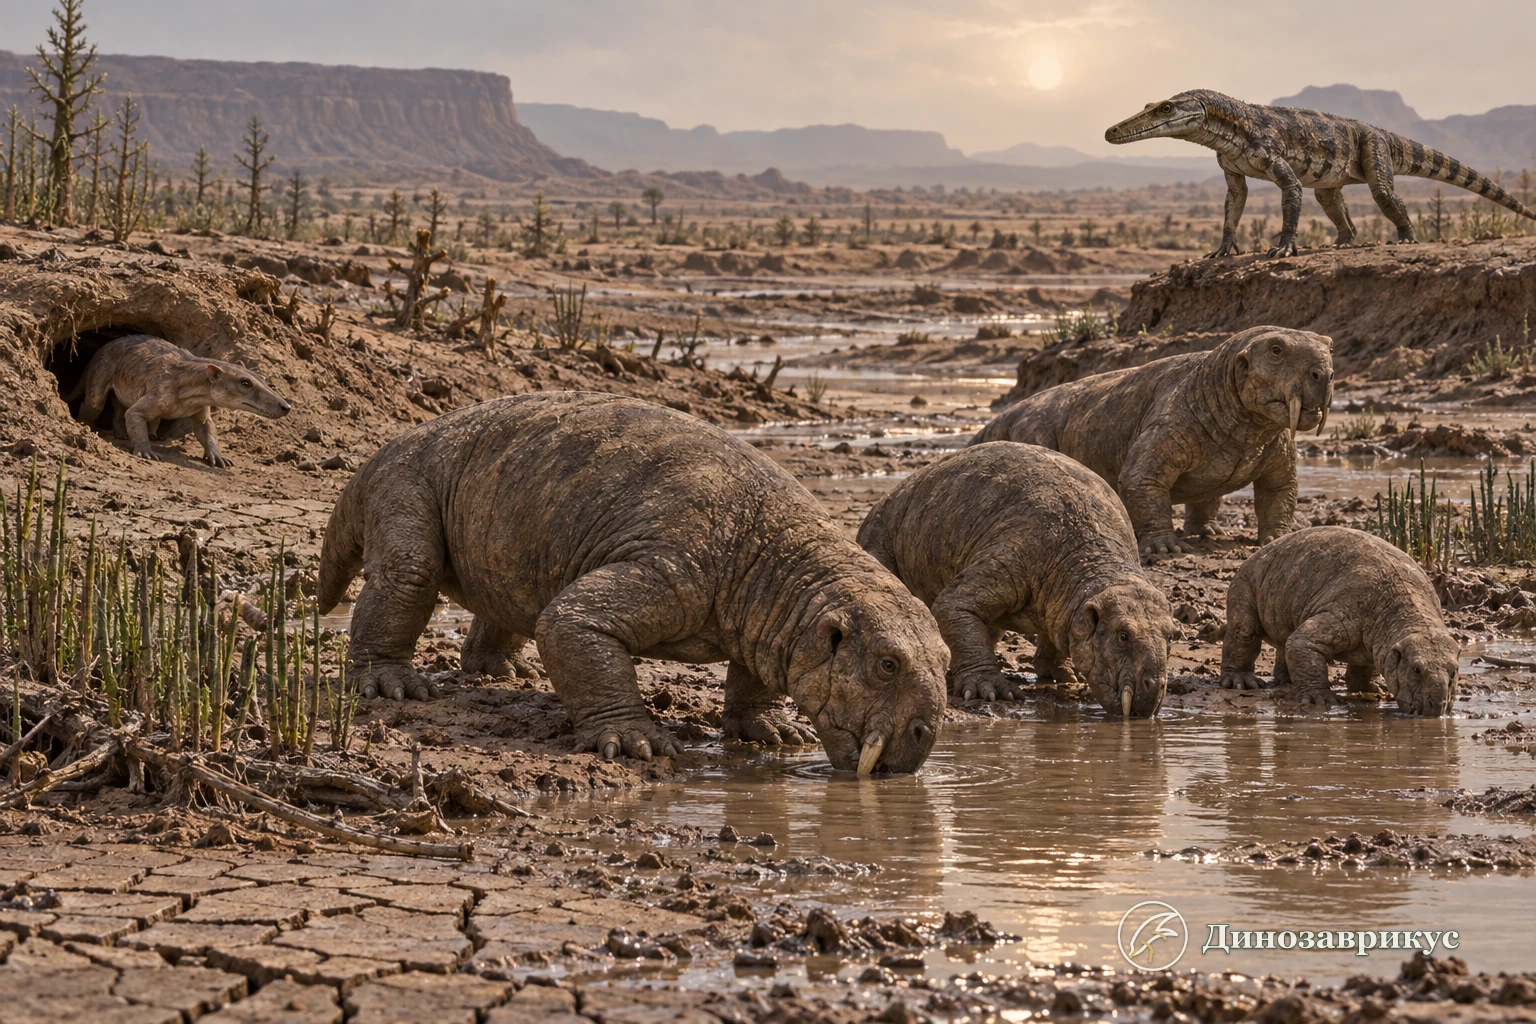
Это научно-художественная реконструкция сезонной поймы, а не буквальная фотография одного ископаемого скопления. Сосуществование показанных линий подтверждают находки в раннетриасовых комплексах южной Пангеи; точное число животных, окраска и момент встречи восстановлены художником.
Морское восстановление тоже не было линейным. Локальные сообщества с хищниками и сложными связями возникали сравнительно рано, но стабильные многоуровневые экосистемы широко распространились лишь к началу среднего триаса, примерно через 8–9 миллионов лет после кризиса. Разные группы и бассейны восстанавливались с разной скоростью.
Растения и ландшафты
Крупное вымирание затронуло растительность, но не оставило сушу без растений на весь ранний триас. В разных регионах исчезали или сокращались одни сообщества, а папоротники, плауны и семенные растения занимали нарушенные территории. Споровые пики в породах могут отражать быстрое расселение папоротников после кризиса, но один такой сигнал нельзя автоматически считать картиной всего мира.
В течение триаса распространены хвойные, саговниковые, беннеттитовые, гинкговые, семенные папоротники, хвощи и настоящие папоротники. Их сочетание зависело от широты, влажности и типа почвы. В сухих районах преобладали устойчивые к сезонности сообщества, а вдоль рек возникали более густые заросли. Цветковых растений и травяных степей современного типа ещё не было.
Растительность управляла наземными пищевыми сетями. Ринхозавры с мощными челюстями перерабатывали жёсткую пищу, дицинодонты срезали растительный материал клювами, а крупные завроподоморфы позднего триаса получили доступ к более высокой растительности. При этом конкретный рацион редко удаётся восстановить по одной форме зубов: нужны следы износа, содержимое кишечника, копролиты и контекст находки.
Кто господствовал на суше до динозавров
Триасовые наземные сообщества нельзя делить только на «динозавров» и «тех, кого они вытеснили». Ринхозавры были коренастыми растительноядными архозавроморфами с клювом и зубными пластинами. Дицинодонты продолжали историю терапсид. Цинодонты включали как растительноядные, так и хищные линии. Огромные темноспондилы подстерегали добычу в реках и озёрах.
Среди архозавров особенно разнообразна крокодиловая ветвь. В неё входили бронированные этозавры, хищные лорикаты, фитозавры с длинными мордами, двуногие попозавроиды и первые крокодиломорфы. Многие ходили на выпрямленных конечностях. Поэтому признак «ноги под телом» не превращает животное в динозавра.
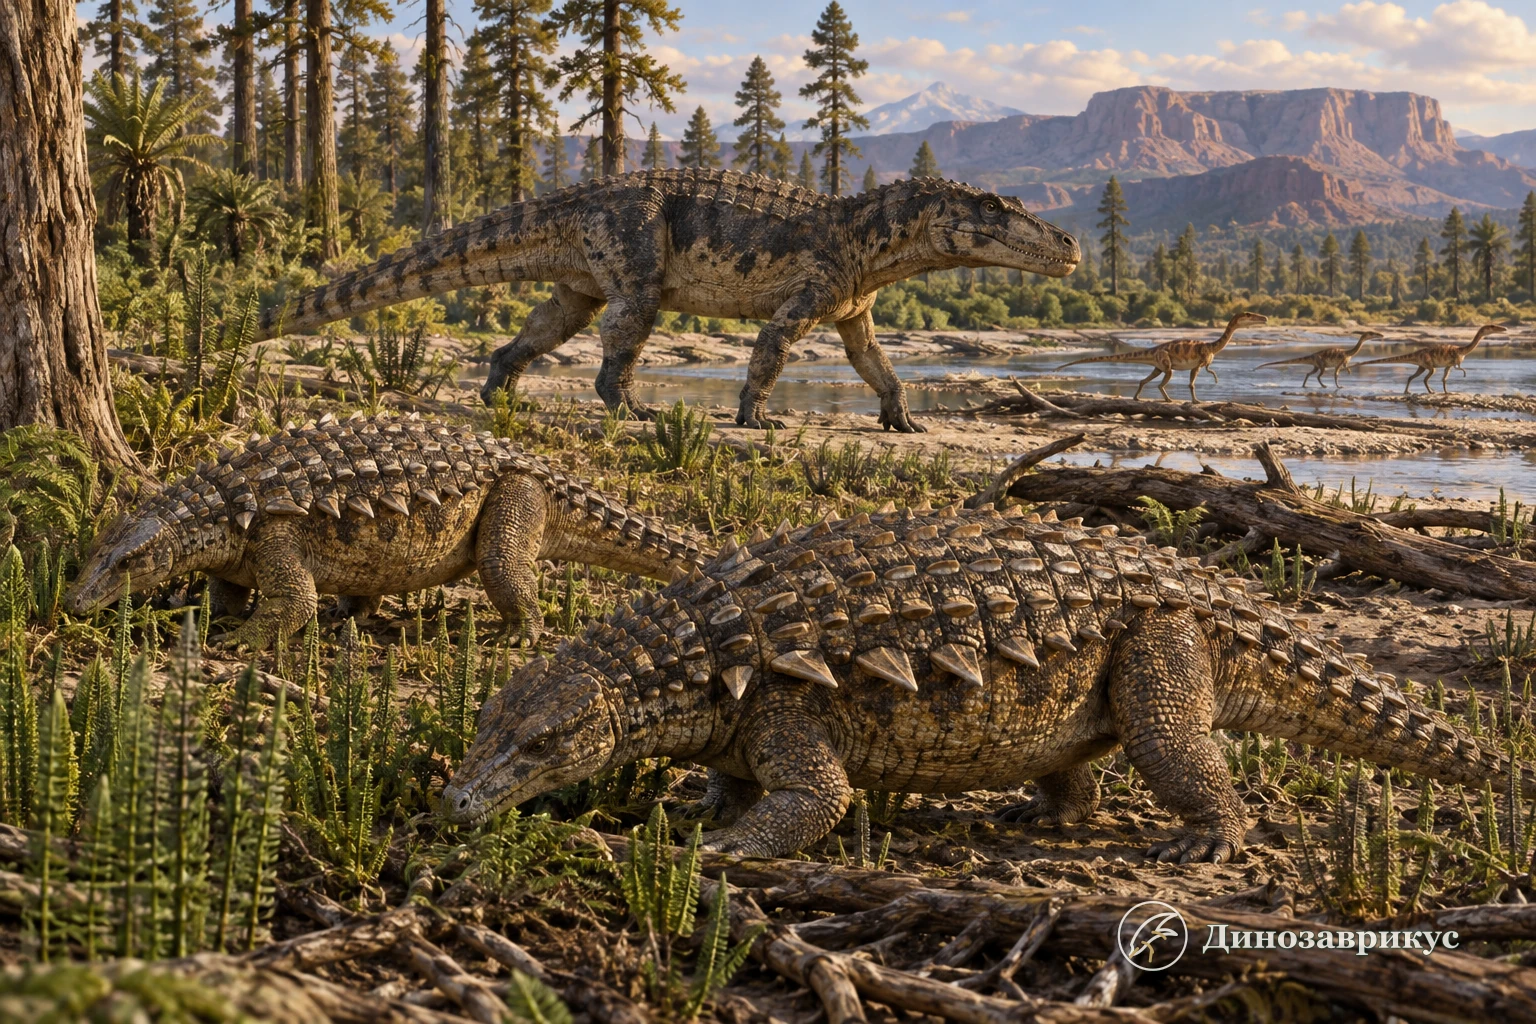
Сцена подчёркивает соотношение групп, а не документирует реальную встречу конкретных видов. До конца триаса крупные хищные и растительноядные ниши во многих регионах занимали представители крокодиловой линии, тогда как динозавры могли оставаться сравнительно редкими.
Триасовые моря: быстрый эволюционный эксперимент
После пермской катастрофы моря заполнялись новыми группами. Аммониты быстро разнообразились и стали важными стратиграфическими указателями. Возникали новые рифовые сообщества, двустворчатые моллюски расширяли экологические роли, костные рыбы становились разнообразнее. Восстановление сопровождалось не возвращением прежнего мира, а построением новой мезозойской морской системы.
Особенно заметны древние морские рептилии. Ихтиозавроморфы появились уже в раннем триасе, а к среднему и позднему триасу среди них возникли очень крупные и хорошо приспособленные к открытому морю формы. Внешнее сходство ихтиозавров с дельфинами возникло независимо и связано с движением в воде.
Завроптеригии включали плакодонтов, пахиплеврозавров, нотозавров и близкие линии. Некоторые плакодонты дробили раковины плоскими зубами, а более стройные хищники ловили рыбу и головоногих. Длинношеий танистрофей принадлежал к архозавроморфам, но не к динозаврам и не к завроптеригиям.
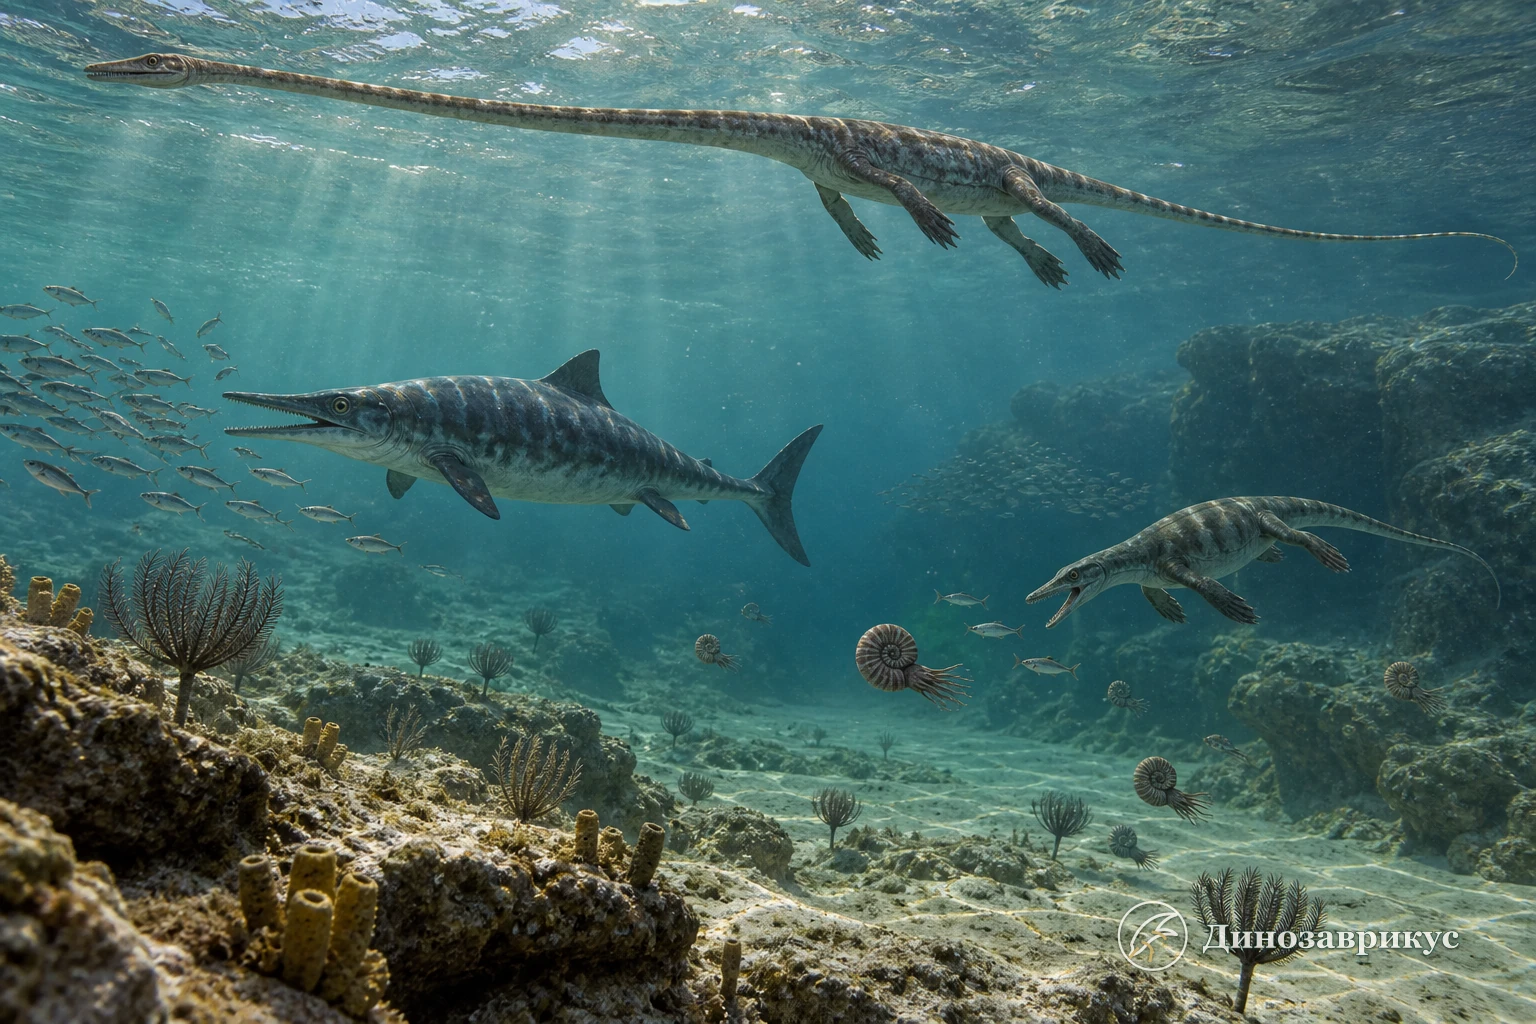
Форма тел и общий состав основаны на ископаемых из среднетриасовых морских отложений. Положение каждой особи, окраска и прозрачность воды остаются реконструкцией. Разные роды могли происходить не из одного точного слоя, поэтому изображение показывает тип экосистемы, а не застывший момент.
Карнийский плювиальный эпизод
Примерно 234–232 миллиона лет назад в разных районах фиксируется интервал усиленного круговорота воды, называемый карнийским плювиальным эпизодом. В породах появляются свидетельства более влажных условий, изменений выветривания, поступления осадка в моря, перестройки растительности, углеродного цикла и морской бескислородности. Слово «плювиальный» указывает на влажность, но событие не означало непрерывный всемирный дождь.
Одним из возможных двигателей считают вулканизм крупной магматической провинции Врангеллия. Выбросы углекислого газа могли вызвать потепление и усилить гидрологический цикл. Временная связь убедительна, однако точная цепочка причин, число импульсов и региональные различия продолжают изучаться.
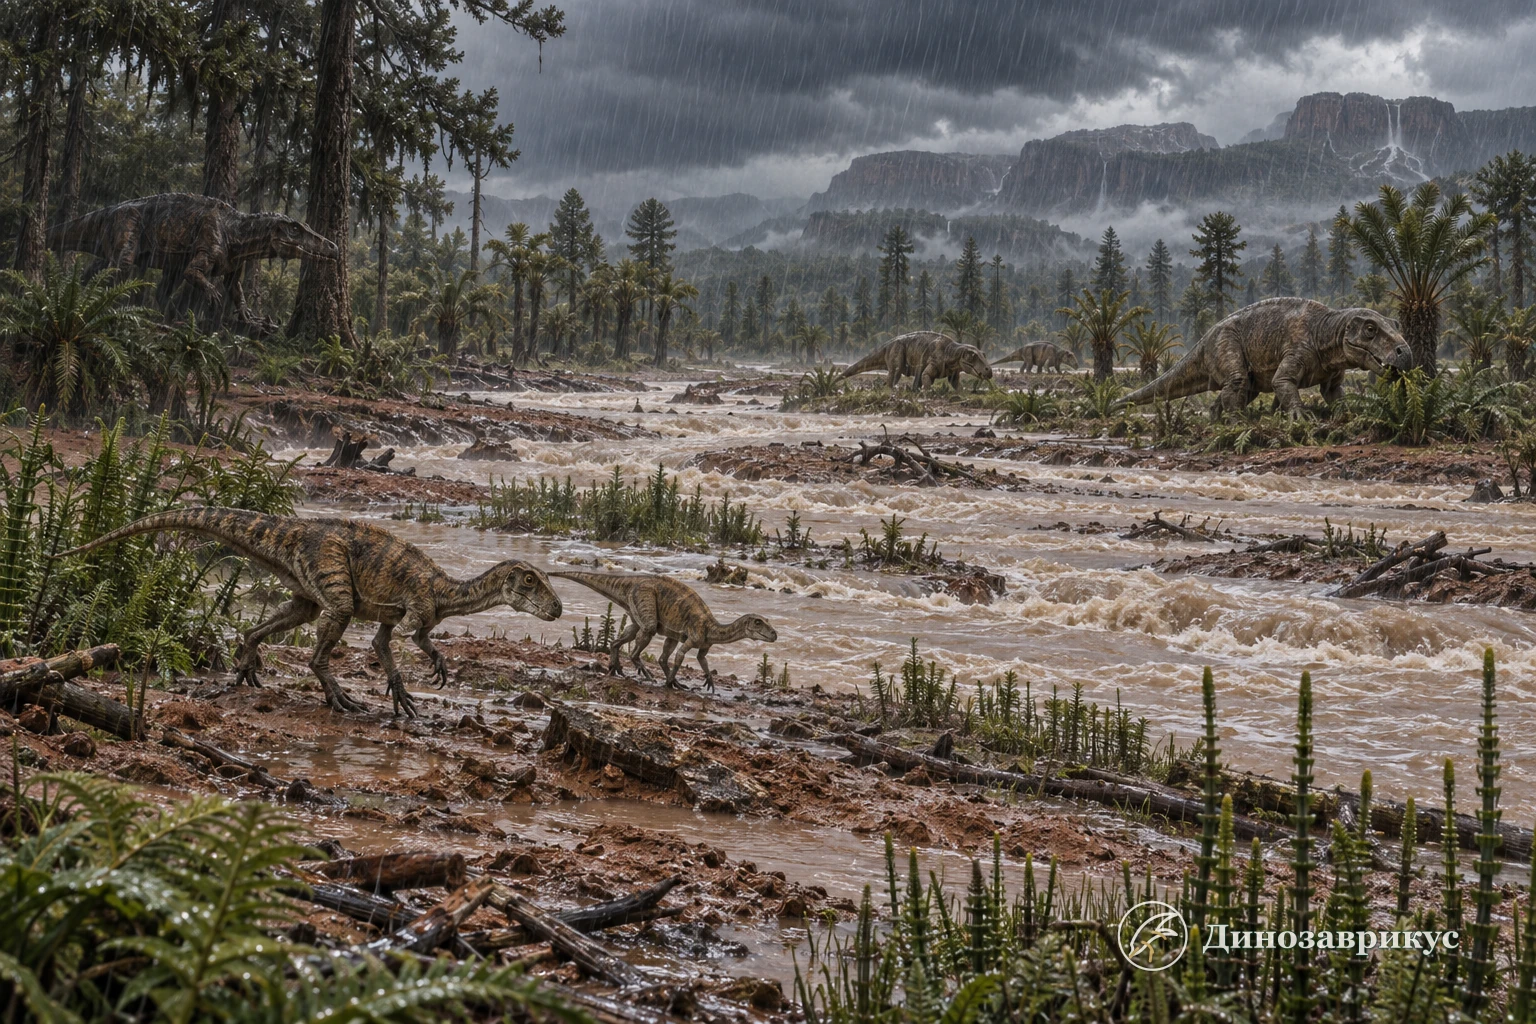
Иллюстрация передаёт усиление сезонных дождей, но не показывает единый ландшафт всей Земли. В разных широтах и бассейнах эпизод выражен неодинаково, а часть разрезов содержит перерывы, затрудняющие сопоставление.
Вблизи этого интервала происходила важная перестройка наземных сообществ. Динозавры стали разнообразнее и позднее распространились шире, но формулировка «дождь создал динозавров» неверна. Самые ранние представители линии могли возникнуть раньше, а расширение зависело также от исчезновения конкурентов, изменения растительности, географии и особенностей самих животных.
Когда появились первые динозавры
Надёжные скелеты динозавров известны из позднего триаса Южной Америки и датируются примерно 233 миллионами лет. Среди них герреразавр, эораптор и ставрикозавр. Они уже обладают сочетанием признаков динозавров, поэтому сама линия должна быть немного древнее первых бесспорных скелетов.
Более ранние находки обсуждаются. Ньясазавр из Танзании жил около границы среднего и позднего триаса и может быть ранним динозавром или очень близким динозавроморфом. Отпечатки следов из польских пород также интерпретируют как свидетельство динозавроморфов, но следы редко позволяют уверенно назвать род или точное положение в родословной. Поэтому дата около 245 миллионов лет относится к возможному происхождению линии, а не к богатой фауне бесспорных динозавров.
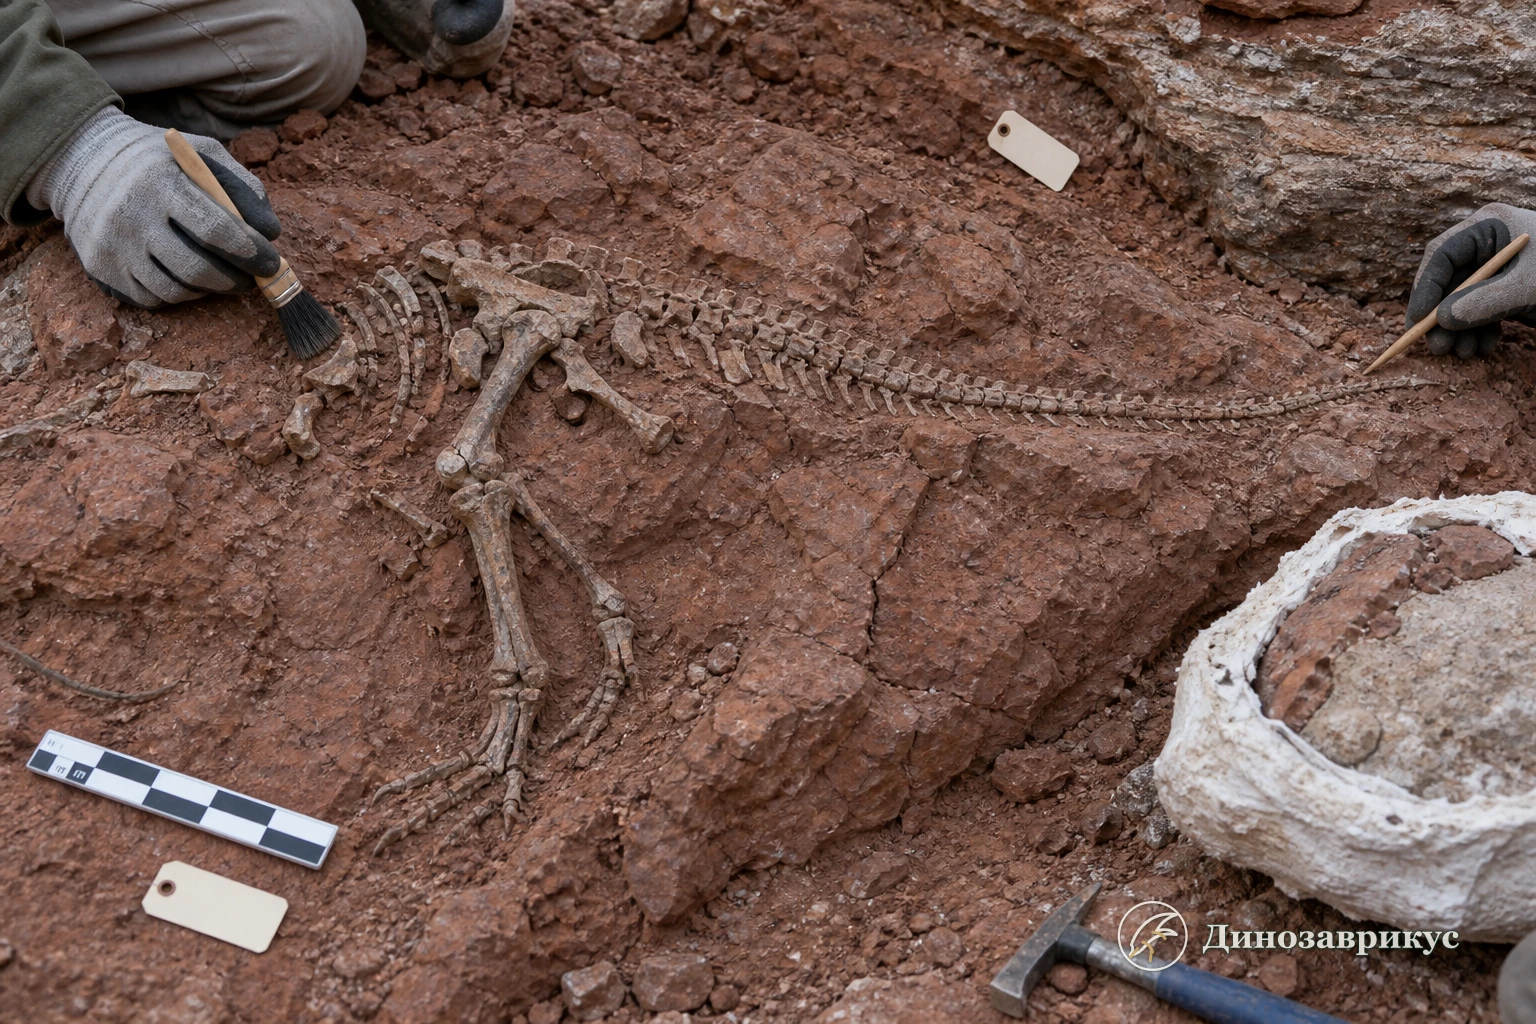
Полевая сцена показывает, почему выводы требуют осторожности. В реальности кость извлекают по частям, фиксируют положение, изучают слой и датируют соседний вулканический пепел. Идеально полный скелет без геологического контекста дал бы меньше сведений о времени и среде.
Первые динозавры не были гигантами. Большинство ранних форм ходило на двух ногах, имело длинный хвост и сравнительно лёгкий скелет. Одни были хищными, другие всеядными или растительноядными. К концу периода завроподоморфы стали крупнее: платеозавр достигал нескольких метров и занимал совершенно иную нишу, чем маленький эораптор.
Позднетриасовый целофиз известен по многочисленным скелетам из Гоуст-Ранч в Нью-Мехико. Отдельная историческая страница «Поздний триасовый период – Нью-Мехико» посвящена истории этих раскопок и сохраняется как самостоятельный материал.
Птерозавры и маммалиаформы
Первые надёжные птерозавры появляются в позднем триасе уже полностью способными к активному полёту. Их крыло поддерживал чрезвычайно удлинённый четвёртый палец, а перепонка тянулась вдоль тела и задних конечностей. Ранние формы обычно имели длинные хвосты и зубы. Почему птерозавры не были динозаврами, объясняется их положением на соседней ветви орнитодир.
Мелкие цинодонты тем временем приближались к маммальному плану строения. У них менялись зубы, челюстной сустав, слуховой аппарат и темпы роста. В позднем триасе известны маммалиаформы – группа, включающая коронных млекопитающих и ближайших вымерших родственников. Называть каждую такую форму «первым настоящим млекопитающим» рискованно, потому что граница коронной группы зависит от филогенетического анализа.
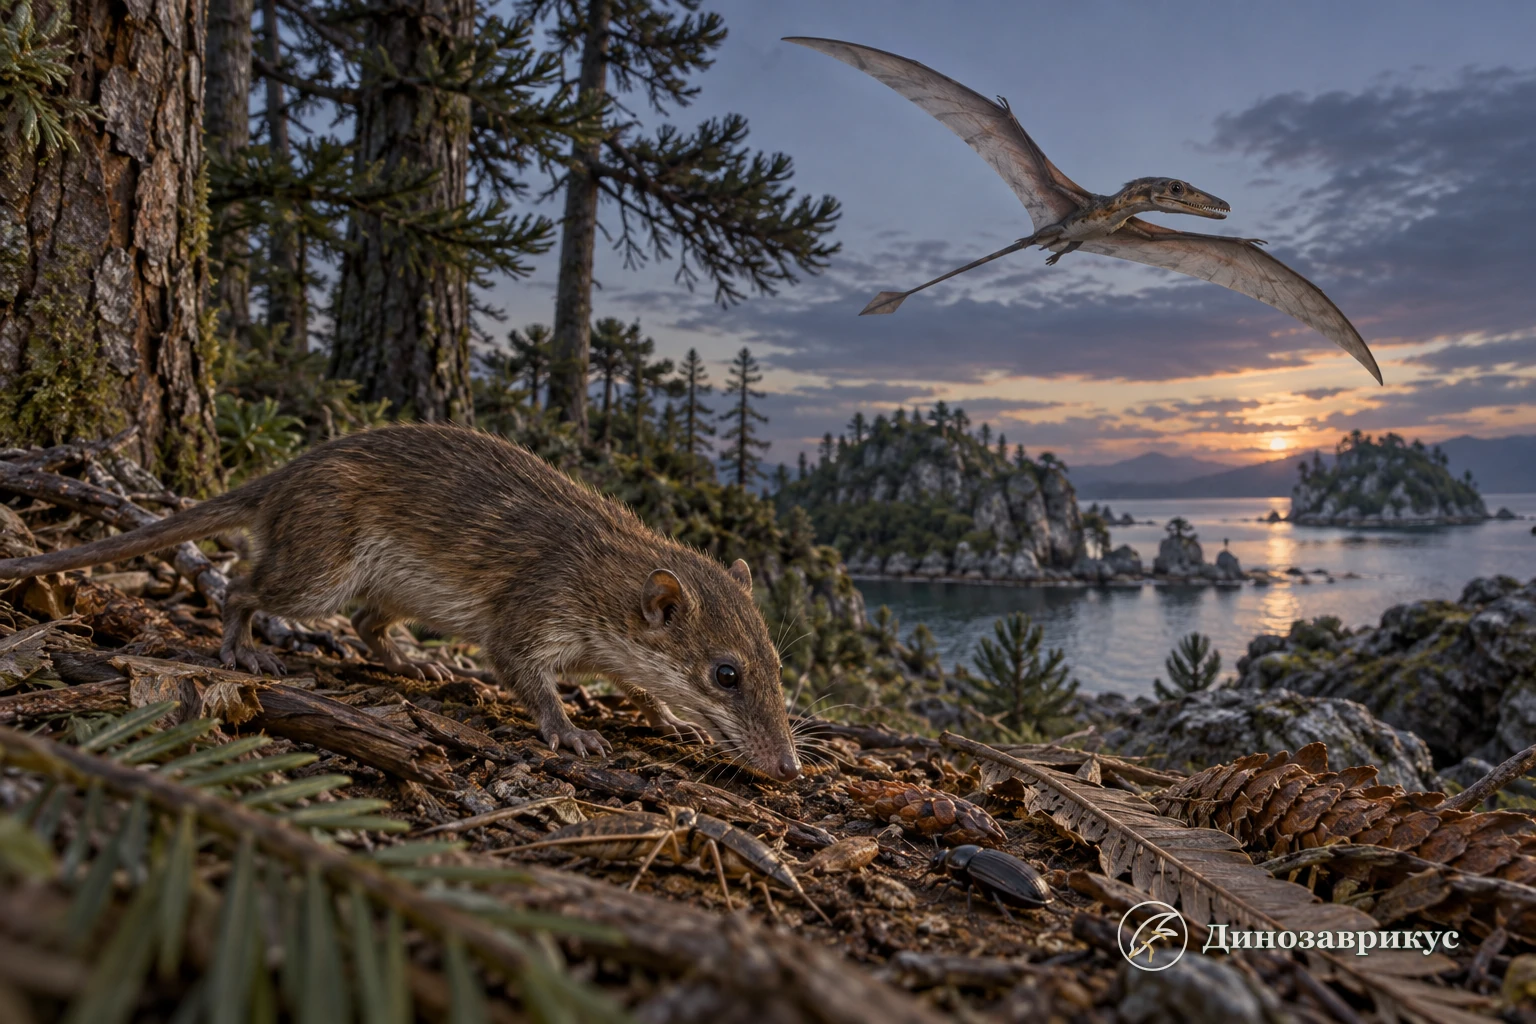
Мех у ранней маммалиаформы выводится из родства и физиологии, но его цвет не сохранился. Внешний контур перепонки раннего птерозавра восстанавливают по редким отпечаткам близких форм и анатомии крыла. Сцена вероятна по масштабу, но не является прямой находкой совместного поведения.
Пять окон в триасовый мир
Южная Африка и Антарктида
Бассейн Кару и формация Фремоу дают подробную запись перехода через пермско-триасовую границу. Листозавры, тринаксодоны, проколофоны, темноспондилы и ранние архозавриформы помогают сравнивать восстановление на разных широтах Гондваны. Совпадение родов на ныне разделённых материках стало одним из свидетельств их прежнего соединения.
Аргентина и Бразилия
Формации Чаньярес, Исчигуаласто, Лос-Колорадос и южнобразильские последовательности сохраняют ринхозавров, цинодонтов, псевдозухий и ранних динозавров. Прослои вулканического пепла позволяют получать уран-свинцовые даты. Но даже соседние выходы одной формации могут иметь разные возрастные интервалы, поэтому старые даты регулярно пересматриваются.
Центральная Европа и Альпы
Германская последовательность дала историческое название периоду. Морские известняки Альп, Италии и Швейцарии сохраняют рыбу, морских рептилий и беспозвоночных. Монте-Сан-Джорджо особенно известен связанными скелетами из лагунных и шельфовых отложений среднего триаса.
Китай
Южнокитайские морские разрезы фиксируют саму нижнюю границу триаса, раннее восстановление и несколько исключительных фаун. В них найдены разнообразные рыбы, ихтиозавроморфы, завроптеригии и другие морские рептилии. Новые Lagerstätten показывают, что сложные локальные сообщества могли возникать раньше, чем следует из усреднённой глобальной картины.
Запад Северной Америки
Формация Чинле и связанные последовательности сохраняют фитозавров, этозавров, темноспондилов, ранних крокодиломорфов и динозавров. Старый сводный материал о фауне триаса полезно читать вместе с современными обзорами конкретных таксонов, потому что систематика многих находок изменилась.
Конец триаса: почему снова произошло массовое вымирание
Около 201,5 миллиона лет назад началось одно из пяти крупнейших массовых вымираний фанерозоя. В морях сильно пострадали аммониты, двустворчатые моллюски, конодонты и рифовые сообщества; конодонты исчезли полностью. На суше закончилась история многих крупных псевдозухий, ринхозавров и других характерных линий. Масштаб и точная синхронность потерь различаются между регионами.
Главным объяснением служит магматизм Центрально-Атлантической магматической провинции, или CAMP. Когда Пангея начала растягиваться, огромные объёмы базальтов изливались и внедрялись в осадочные бассейны на территориях будущих Америки, Африки и Европы. Высокоточные датировки связывают ранние импульсы магматизма с основным вымиранием.
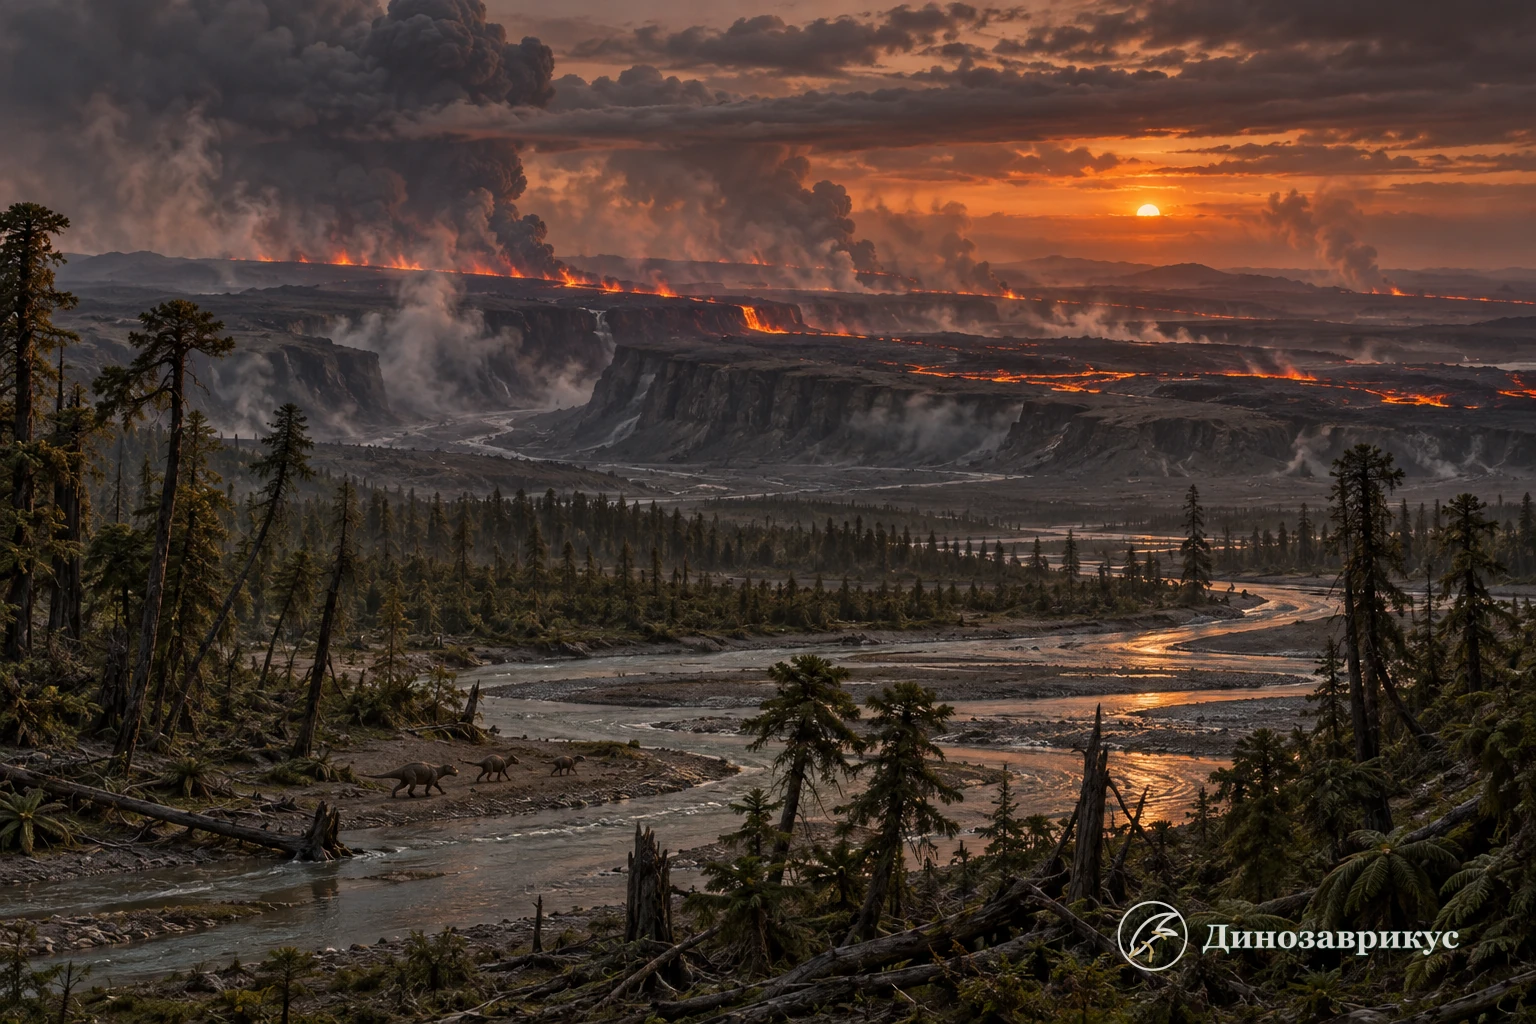
Это обобщённая геологическая реконструкция длительного магматизма. Извержения не образовали одну непрерывную огненную стену, одновременно видимую со всего материка. Важны суммарные выбросы и повторные импульсы, а не зрелищность отдельного потока.
Углекислый газ вызывал быстрое потепление и усиливал круговорот воды. Сернистые аэрозоли могли давать короткие эпизоды охлаждения. Закисление океана, дефицит кислорода, усиленное выветривание и нарушение пищевых сетей действовали совместно. Магма, внедрявшаяся в богатые органикой породы, могла дополнительно высвобождать парниковые газы. Детали последовательности и относительный вклад механизмов остаются предметом исследований.
Динозавры пережили кризис, но это не доказывает их абсолютное превосходство. Вымирание отфильтровало сообщества по географии, размеру, физиологии, рациону и случайности сохранения популяций. В ранней юре динозавры стали главными крупными наземными позвоночными во многих регионах, тогда как выжившие крокодиломорфы заняли более узкие ниши.
Как учёные восстанавливают триас
Возраст отдельных слоёв получают по нескольким независимым линиям данных. Цирконы из вулканического пепла датируют уран-свинцовым методом. Магнитостратиграфия сопоставляет смены полярности поля. Аммониты, конодонты, споры и пыльца связывают разрезы, где нет подходящего пепла. Изотопы углерода помогают прослеживать глобальные возмущения углеродного цикла.
Кости показывают анатомию, но экология требует дополнительных свидетельств. Следовые дорожки сообщают о походке и присутствии животных там, где тела не сохранились. Копролиты и содержимое кишечника дают прямые данные о пище. Гистология костей показывает рост, а компьютерная томография раскрывает внутреннее строение черепа. Ископаемые почвы и русловые отложения восстанавливают сезонность и движение воды.
Есть и ограничения. Континентальные отложения часто прерывисты, а реки размывают более старые слои. Морские маркеры трудно перенести в глубокую сушу. Название рода может измениться после нового анализа, а красивая реконструкция всегда содержит художественные решения. Надёжный обзор поэтому отделяет кость и слой от вероятного поведения и цвета кожи.
Что в реконструкции надёжно, а что предположительно
| Уровень уверенности | Пример |
|---|---|
| Прямое наблюдение | форма сохранившейся кости, отпечаток следа, положение слоя, химический состав минерала |
| Вывод исследования | родство по набору признаков, примерная масса по скелету, климат по нескольким независимым индикаторам |
| Рабочая гипотеза | конкретная причина расширения динозавров, характер охоты редкого хищника, физиологическая устойчивость группы |
| Художественная реконструкция | цвет кожи, выражение глаз, точное расположение животных в сцене, погода в выбранный день |
Сочетание этих уровней не делает реконструкцию недостоверной. Оно показывает, где заканчивается измерение и начинается интерпретация. Чем полнее автор отмечает границы знания, тем полезнее становится изображение или рассказ.
Почему триасовый период особенно важен
Триас связывает палеозой и привычный образ мезозоя. В начале периода мир ещё нёс последствия пермской катастрофы. К середине существовали новые сложные морские экосистемы. В позднем триасе возникли основные линии, которые определят дальнейшую историю наземных позвоночных: динозавры, птерозавры, крокодиломорфы и маммалиаформы.
При этом победитель не был заранее известен. Динозавры долго жили внутри разнообразных сообществ, а не над ними. Их крупное экологическое расширение стало результатом последовательности климатических и биотических перестроек. Триас показывает эволюцию как зависимый от обстоятельств процесс, в котором происхождение группы и её последующее господство разделены миллионами лет.
Материалы о животных, растениях и геологии всего интервала собраны в каталоге мезозойской эры. Триасовый обзор служит его хронологическим входом и отделяет ранний мезозой от значительно более поздних миров юры и мела.
Частые вопросы
Когда начался и закончился триасовый период?
По Международной хроностратиграфической шкале версии 2026/06 триас начался 251,902 ± 0,024 миллиона лет назад и закончился 201,4 ± 0,2 миллиона лет назад. Его продолжительность составляла около 50,5 миллиона лет.
Какие динозавры жили в триасовом периоде?
Среди надёжных позднетриасовых динозавров известны герреразавр, эораптор, ставрикозавр, целофиз, платеозавр и другие ранние тероподы и завроподоморфы. Они жили в разных регионах и не образовывали единого всемирного сообщества.
Были ли птерозавры и морские рептилии динозаврами?
Нет. Птерозавры были летающими родственниками динозавров внутри орнитодир, а ихтиозавры, нотозавры и другие морские рептилии принадлежали к отдельным ветвям. Морские динозавры в строгом научном смысле в триасе не существовали.
Почему закончился триасовый период?
Формально его конец определяется основанием юрской системы в разрезе Кухйох. Массовое вымирание рядом с этой границей главным образом связывают с импульсами магматизма CAMP, быстрым изменением климата, закислением и дефицитом кислорода в океане. Это была цепочка воздействий, а не одно мгновенное извержение.


Комментарии 1