Птерозавры первыми среди позвоночных освоили активный полёт. Они появились в позднем триасе около 220 миллионов лет назад и исчезли на границе мела и палеогена 66 миллионов лет назад. За это время группа прошла путь от небольших длиннохвостых охотников до морских планеристов, фильтраторов, наземных хищников и крупнейших летающих животных в истории.
Общий силуэт скрывает сложную конструкцию. Крыло было кожно-мышечной мембраной, опиравшейся на один чрезвычайно удлинённый палец. Воздушные мешки облегчали тело и участвовали в дыхании. Передние конечности одновременно создавали тягу в воздухе, поддерживали животное на земле и, вероятно, давали основной толчок при взлёте. Ни одна современная группа не повторяет это сочетание полностью.
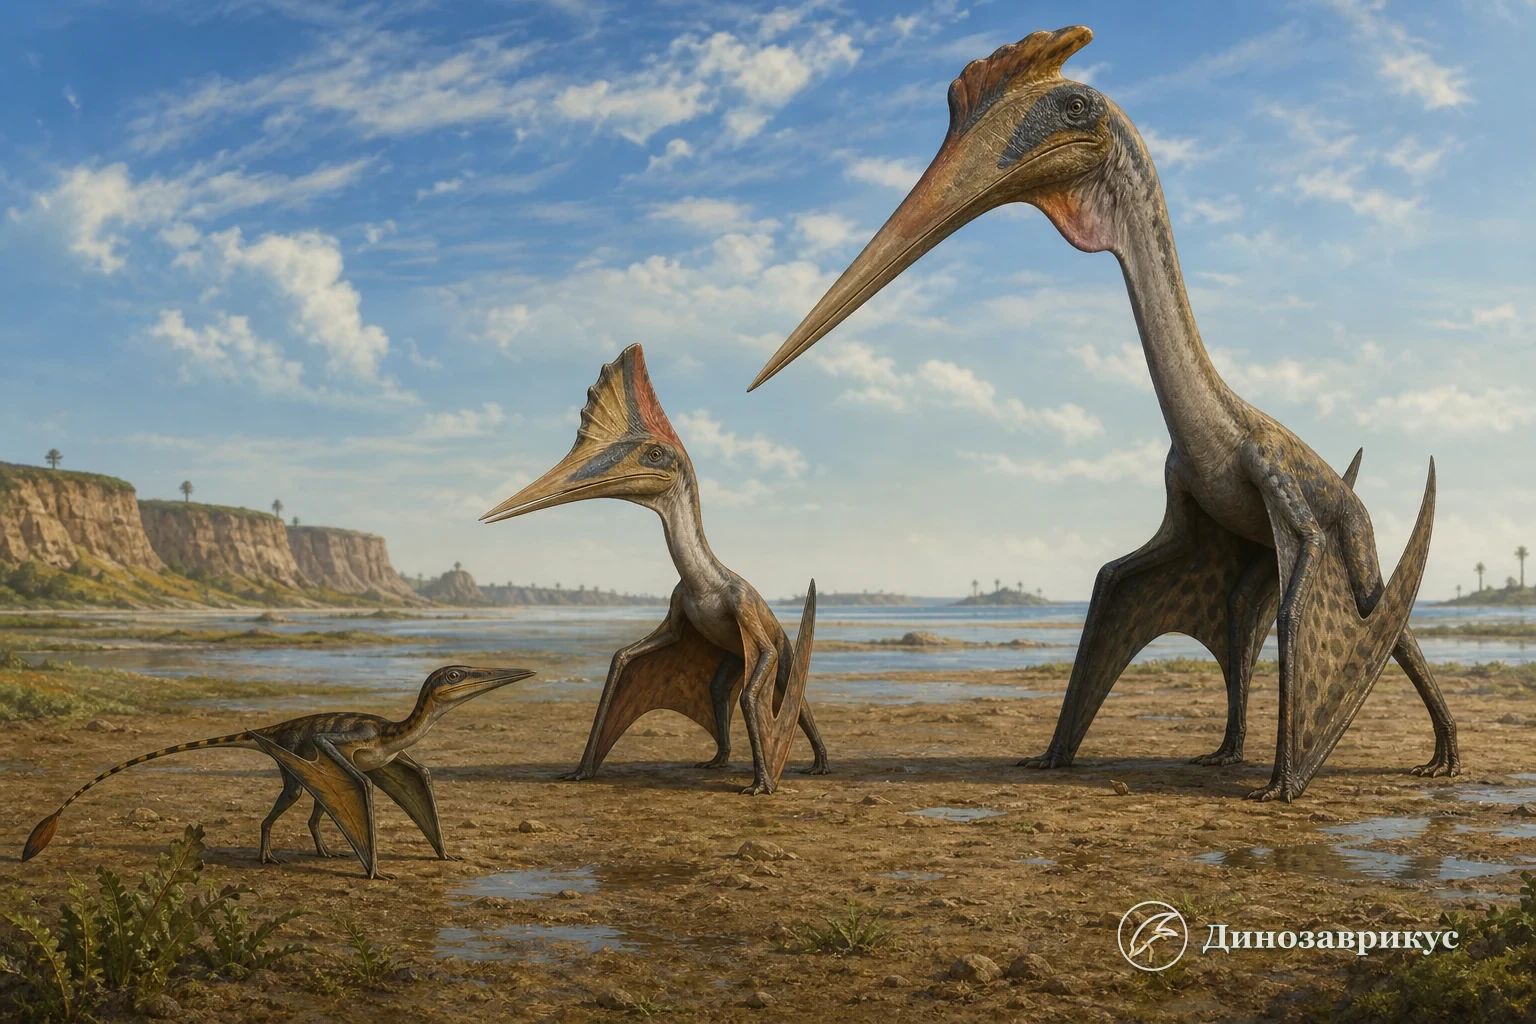
Обложка сопоставляет разные типы птерозавров и является художественной реконструкцией. Эти животные не образовывали реальное стадо в одном месте и времени.
Почему птерозавры не были динозаврами
Птерозавры и динозавры принадлежали к архозаврам, но расходились на разных ветвях эволюционного дерева. Птицы входят внутрь тероподовых динозавров, тогда как Pterosauria представляла самостоятельную линию. Поэтому разговорное выражение «летающий динозавр» удобно для поиска, но биологически неточно. Отдельная статья подробно объясняет, почему птерозавры не были динозаврами.
Различается и само крыло. У птицы несущую поверхность создают маховые перья, прикреплённые к укороченной и частично сросшейся кисти. У птерозавра главную кромку поддерживала рука с огромным четвёртым пальцем, а три коротких пальца оставались свободными. У летучей мыши перепонка натянута между несколькими удлинёнными пальцами. Это три независимых решения задачи активного полёта.
Происхождение, которое пока видно не полностью
Самые ранние бесспорные птерозавры уже имели полноценное крыло, крупные места прикрепления грудных мышц и изменённый скелет. Переходных форм, показывающих постепенное удлинение пальца и расширение перепонки, пока не найдено. Поэтому момент возникновения полёта восстанавливают по родству и функциональной анатомии, а не по непрерывной последовательности скелетов.
Филогенетические исследования сблизили птерозавров с лагерпетидами – небольшими наземными родственниками динозавров из триаса. Общими оказались детали черепа, внутреннего уха, позвоночника и конечностей. Лагерпетиды не имели крыльев, но их положение сокращает анатомический разрыв между обычным четвероногим архозавром и птерозавром. Время и среда первых этапов полёта остаются предметом гипотез.
Ранние находки известны главным образом из влажных прибрежных районов вокруг Тетиса. Это может отражать настоящую экологию, а может быть следствием того, где тонкостенные кости лучше захоранивались. В триасовом периоде существовали и другие планирующие рептилии, но их перепонки и способ движения отличались от активного полёта птерозавров.
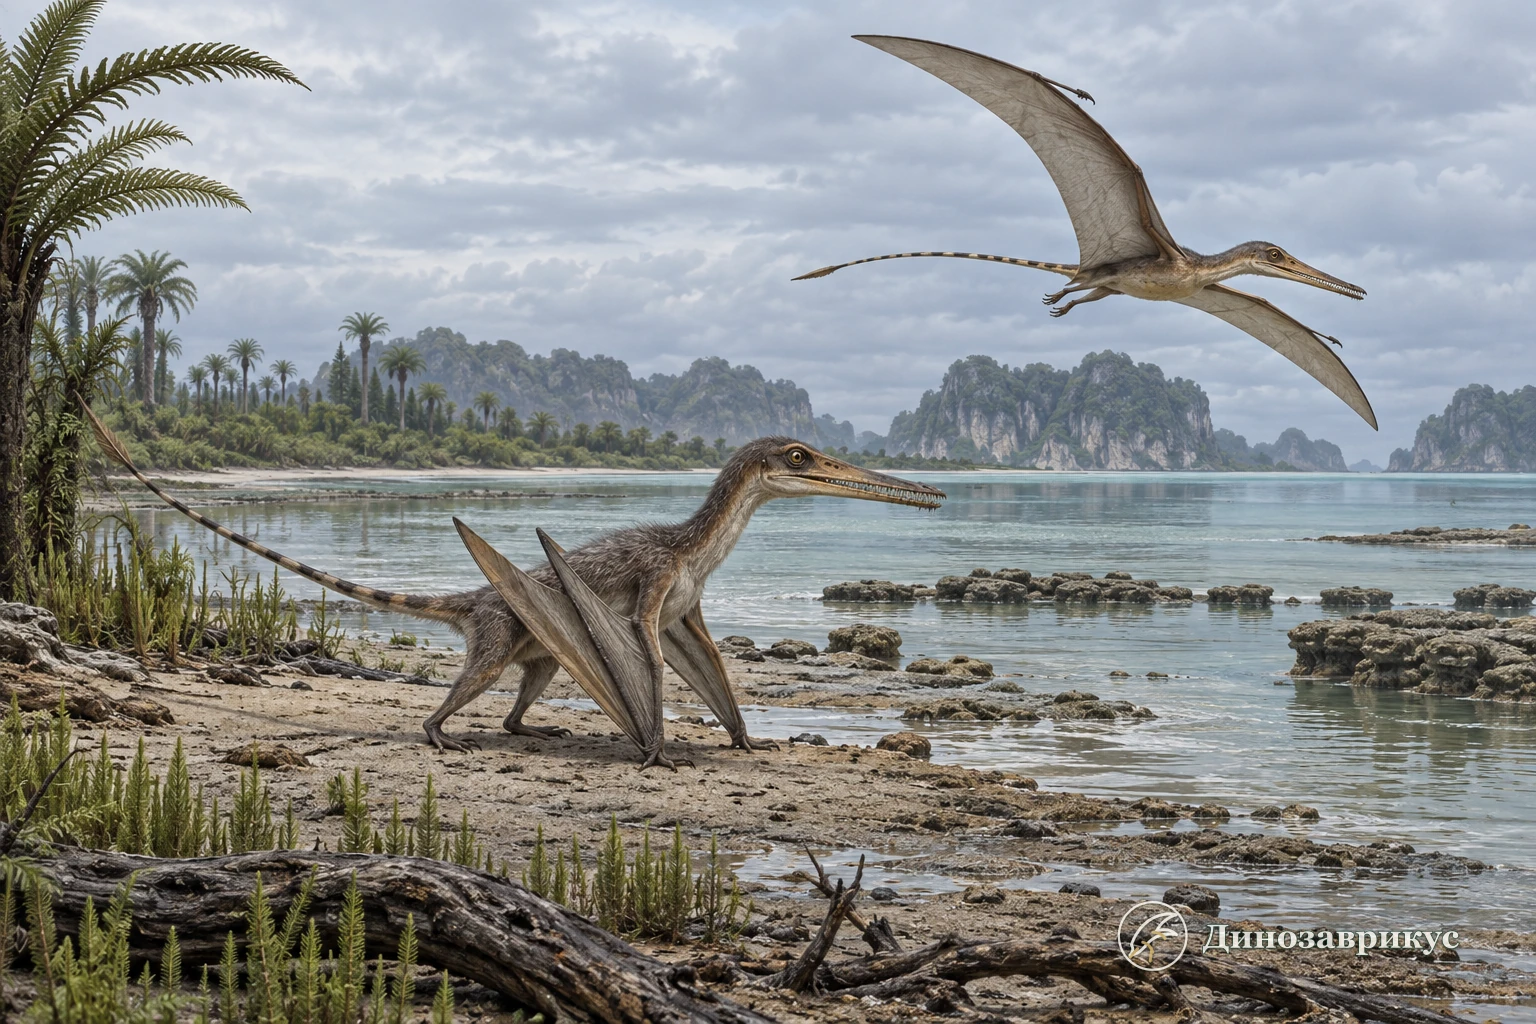
Сцена реконструирует возможную прибрежную среду ранних птерозавров. Конкретное поведение и окраска напрямую не сохранились.
Крыло было живым и управляемым органом
Отпечатки мягких тканей показывают, что мембрана не была пассивным куском кожи. В ней находились кровеносные сосуды, мышечные слои и параллельные волокна, традиционно называемые актинофибриллами. Эти структуры помогали поддерживать профиль крыла, менять натяжение и препятствовать неконтролируемому колебанию поверхности.
Основная перепонка тянулась от удлинённого пальца к телу и задней конечности. Точные очертания её внутреннего края обсуждаются, потому что разные экземпляры сплющены и растянуты при захоронении. Перед запястьем находилась небольшая передняя мембрана, которой управляла особая кость – птероид. Между задними конечностями у некоторых форм сохранялась дополнительная перепонка.
На теле многих птерозавров найдены нитевидные пикнофибры. Они создавали изолирующий покров и согласуются с высоким уровнем активности. Для нескольких экземпляров описаны разветвлённые структуры, похожие на простые перья, но часть исследователей считает ветвление результатом разрушения или наложения волокон. Наличие покрова сомнений почти не вызывает, а его точное родство с перьями остаётся спорным.
Дыхание, лёгкий скелет и мышцы
Полые кости не означали хрупкость. Тонкие стенки усиливались внутренними перегородками, а форма трубки хорошо сопротивлялась изгибу при небольшой массе. Компьютерная томография и отверстия в позвонках показывают проникновение воздушных мешков в скелет. Сравнение с птицами и крокодилами поддерживает эффективную проточную вентиляцию лёгких, хотя мягкие органы птерозавра напрямую не сохранились.
Грудная кость несла поверхность для крупных летательных мышц. Плечевая кость имела развитый дельтопекторальный гребень, а её прочность особенно важна для взмаха и старта. Массу нельзя вычислить только по пустотелости костей: исследователи строят объём тела, добавляют мышцы, органы и мембраны, затем проверяют результат по прочности и аэродинамике.
Как птерозавр ходил и поднимался в воздух
Следовые дорожки показывают четвероногую походку. На грунте оставались отпечатки задней стопы и трёх свободных пальцев кисти, а длинный крыловой палец был сложен и не волочился по земле. Положение суставов подтверждает, что по крайней мере птеродактилоиды могли уверенно ходить, хотя скорость и манёвренность разных групп не были одинаковыми.
Ведущая модель старта предполагает четвероногий прыжок. Животное переносило вес вперёд, разгибало задние ноги, затем мощно отталкивалось передними конечностями и раскрывало крыло уже над землёй. Такая схема использует крупные мышцы, которые всё равно нужны для полёта, и лучше соответствует пропорциям костей, чем птичий разбег на двух ногах.
Биомеханические расчёты проверяют длину рычагов, возможную силу мышц, массу и время движения. Они показывают осуществимость старта, но не являются прямой записью поведения. Модель может измениться при другой оценке массы или положения суставов. Обрыв и встречный ветер могли помогать, однако не требовались каждому птерозавру при каждом взлёте.
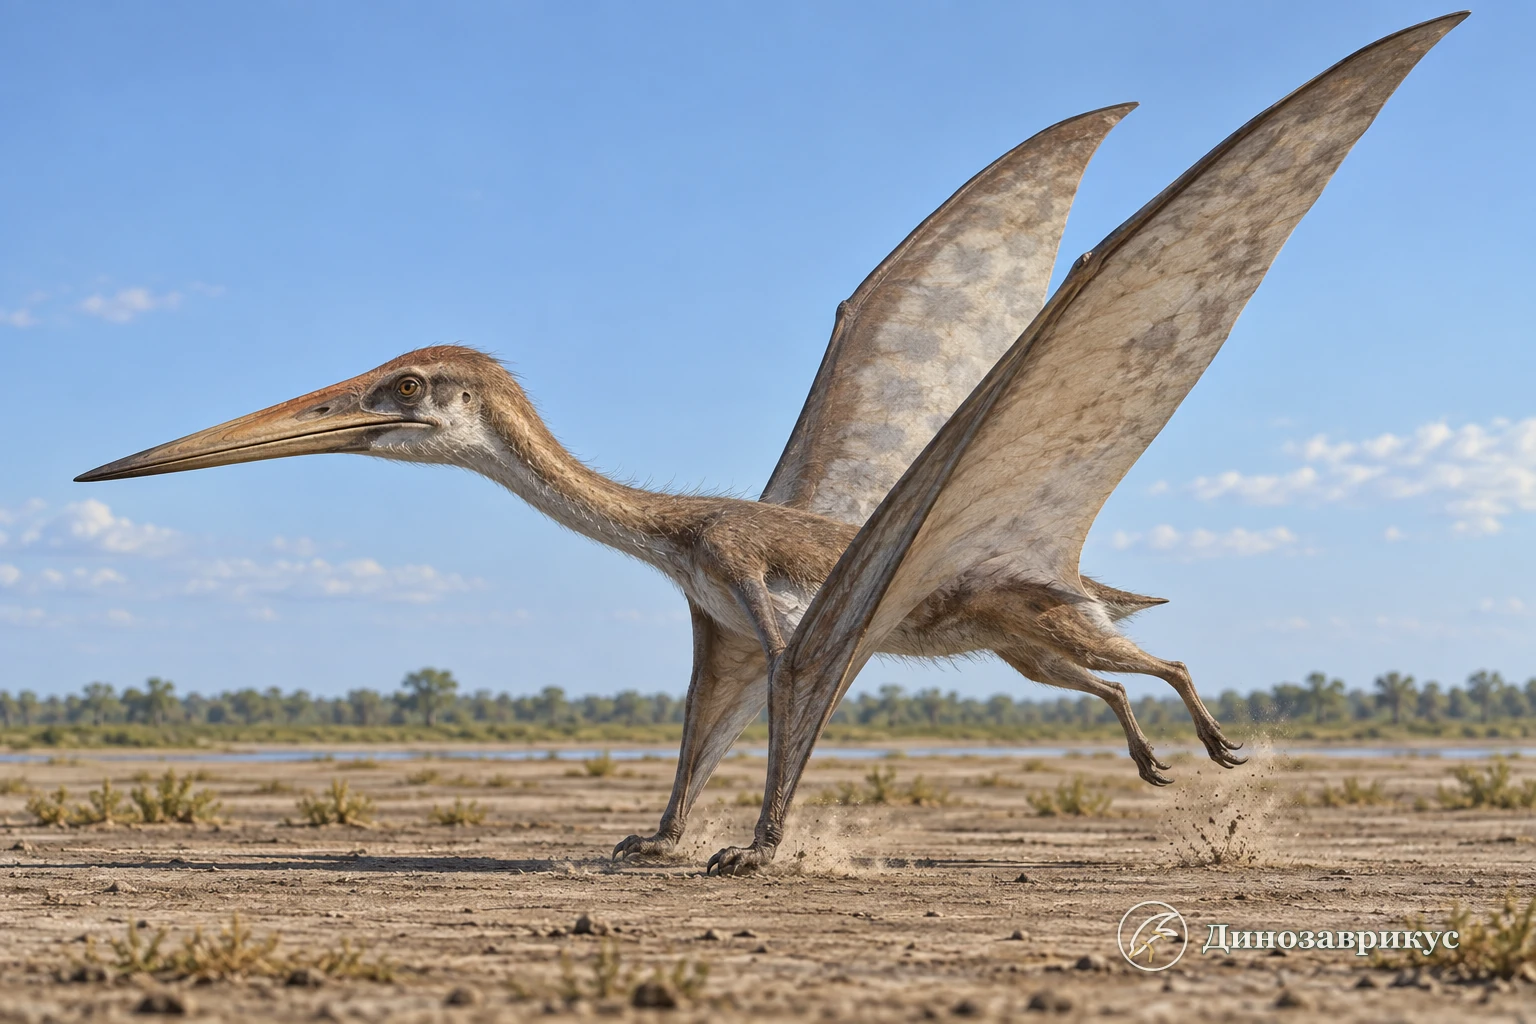
Положение тела основано на биомеханической модели четвероногого старта. Точная последовательность движения остаётся реконструкцией.
Полёт менялся вместе с группой
Ранние птерозавры часто имели длинный укреплённый хвост и сравнительно короткие кистевые кости. У более поздних птеродактилоидов хвост сократился, кисть удлинилась, а шея, череп и пропорции крыла стали разнообразнее. Старое деление на «рамфоринхоидов» и «птеродактилей» удобно как описание формы, но первая категория не является одной естественной ветвью.
Модели, объединяющие размеры тела, форму крыла и эволюционное дерево, показывают долговременное повышение расчётной эффективности полёта. Это не означает, что каждый поздний вид превосходил любого раннего. Короткие манёвренные крылья полезны в тесной среде, длинные – для экономичного парения, а широкие дают иной баланс подъёмной силы и сопротивления.
Рамфоринх демонстрирует длиннохвостый юрский тип, тогда как настоящий птеродактиль был небольшим короткохвостым птеродактилоидом. Эти названия нельзя использовать для всей группы как взаимозаменяемые.
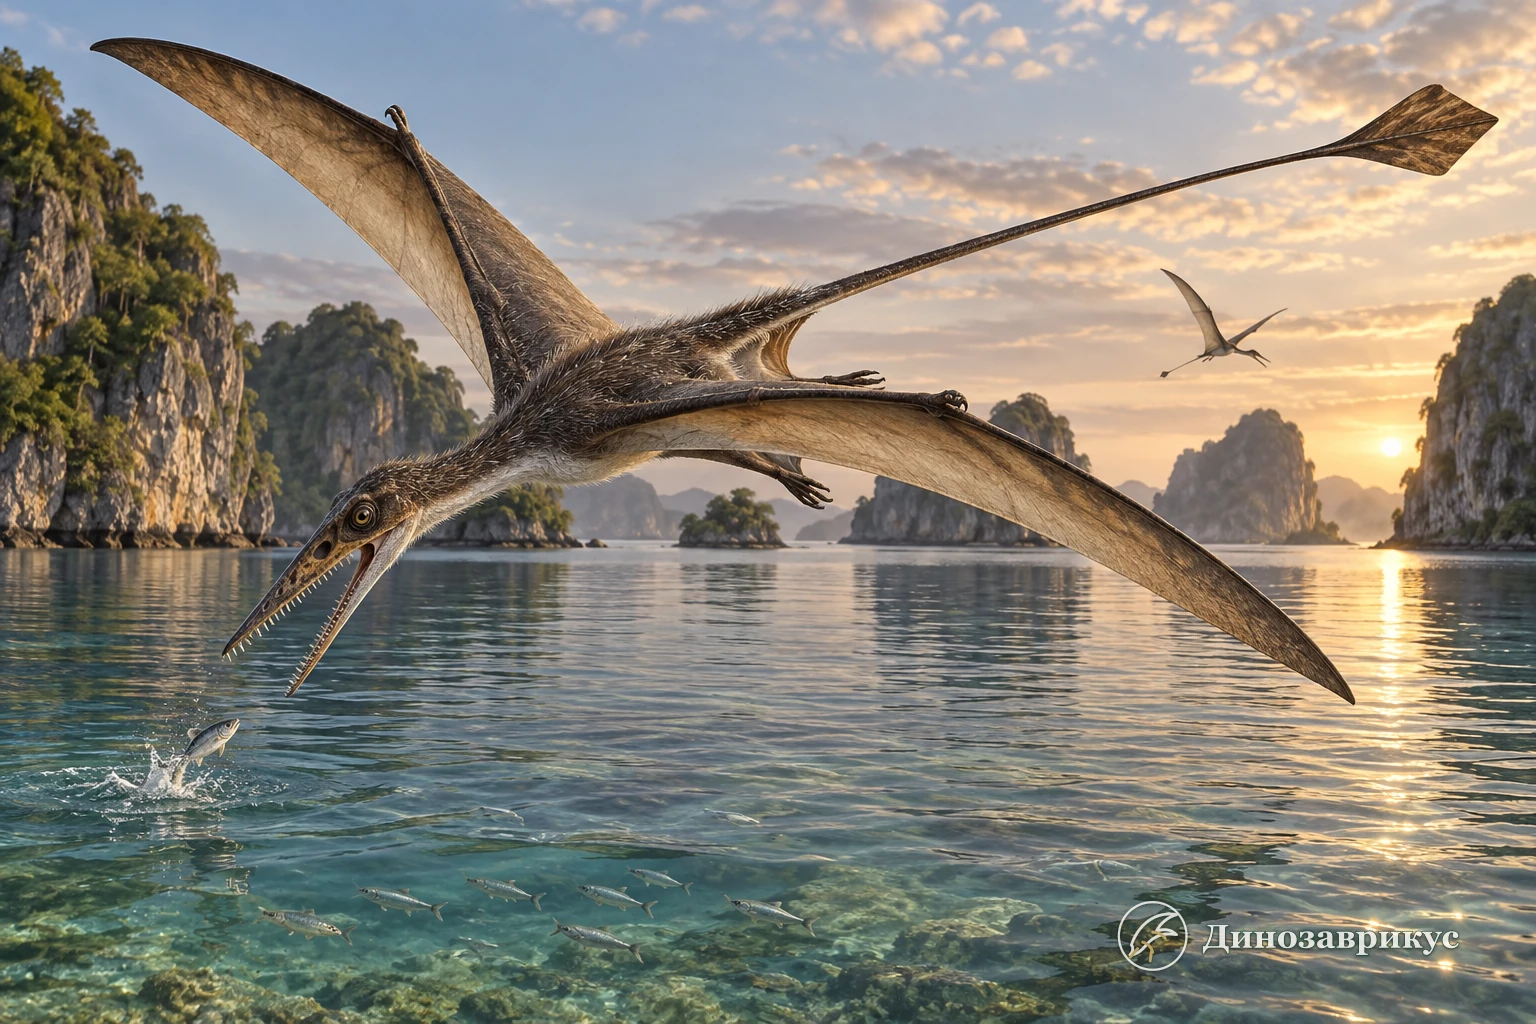
Рыболовное поведение согласуется с анатомией и данными о рационе рамфоринха, но изображённый момент является реконструкцией.
Пища и экологические роли
Птерозавры не были одной гильдией воздушных рыболовов. Содержимое пищеварительного тракта даёт редкие прямые свидетельства. Чаще используют зубы, микроскопический износ, форму челюстей, копролиты, положение находки и сравнение с живыми животными. Ни один из этих признаков по отдельности не описывает полное меню.
Трёхмерный анализ микроизноса зубов различил потребителей позвоночных, рыбы и твёрдых беспозвоночных у ряда родов. Он также показал разделение ресурсов между жившими рядом рамфоринхом и птеродактилем. Птеранодон был связан с морскими экосистемами, а птеродаустро процеживал мелкую водную пищу частыми тонкими зубами.
Беззубость тоже не указывает на единый рацион. Аждархиды хорошо передвигались по суше и, вероятно, собирали доступную добычу на открытой местности. Тапежариды часто рассматриваются как возможные потребители растительной пищи, но форма клюва и близость плодов в породе слабее прямого содержимого кишечника. Для многих групп рацион остаётся диапазоном вероятностей.
Яйца, рост и первые полёты
Яйца с эмбрионами прямо подтверждают яйцекладность. Их оболочка была тонкой и, по крайней мере у некоторых видов, кожистой. Скопления яиц и костей показывают повторное использование мест размножения, но сами по себе не доказывают колонию с птичьими гнёздами и длительным кормлением птенцов.
У эмбрионов и очень молодых животных уже были развитые мембраны и хорошо окостеневшие конечности. Расчёты прочности плечевой кости и нагрузки на крыло поддерживают способность некоторых птерозавров к активному полёту вскоре после вылупления. Другие исследования роста предлагали более поздний старт. Различия могут зависеть от вида, стадии развития и того, насколько верно определён возраст маленького экземпляра.
Пропорции крыла менялись по мере роста. Молодые особи могли быть более манёвренными и использовать заросшие участки, тогда как взрослые летали быстрее и дальше. Поэтому маленькие и большие представители одного вида не обязательно конкурировали за одну пищу.
Как возникли гиганты
Крупные размеры несколько раз появлялись у птеродактилоидов, а предела достигли позднемеловые аждархиды. У них сочетались длинные конечности, большая голова, прочная шея и относительно короткие широкие крылья. Кетцалькоатль известен по неполному материалу гигантского вида и более полным скелетам меньшего родственника.
Размах около 10 метров у крупнейших форм является расчётом, а не измерением цельного крыла. Масса зависит от объёмной модели и обычно оценивается в сотни килограммов, а не в несколько десятков. Сравнения с птицами вводят в заблуждение, если игнорируют четвероногий старт и иную конструкцию передних конечностей.
Гигантизм не вытеснил все другие формы. В самом конце мела рядом с аждархидами существовали птеранодонтиды и никтозавриды разных размеров. Ископаемая летопись наземных птерозавров особенно фрагментарна, поэтому отсутствие мелких костей в конкретной формации не доказывает их полного исчезновения.
Что действительно сохраняется в окаменелостях
Большинство находок – отдельные кости, раздавленные скелеты или следы. Полная длина крыла требует восстановления недостающих фаланг, а площадь мембраны зависит от её предполагаемого контура. Гребень может включать мягкую часть, намного превышавшую костную основу. Цвет известен лишь в редких случаях по микроскопическим структурам, и его интерпретация зависит от сохранности.
Исключительные местонахождения с тонким осадком сохраняют мембраны, покров, содержимое тела и яйца. Они дают несоразмерно большую часть сведений о биологии группы, но представляют ограниченные времена и среды. Поэтому один великолепный отпечаток нельзя автоматически переносить на все 150 миллионов лет истории птерозавров.
Исчезновение на границе мела и палеогена
Долгое время позднемеловых птерозавров представляли обедневшей группой, которую птицы постепенно вытеснили до удара астероида. Находки из маастрихта Марокко показали не менее трёх семейств и несколько форм с разными пропорциями. Это поддерживает резкое вымирание у самой границы, хотя полнота летописи по регионам различается.
После удара Чиксулуба нарушились фотосинтез и пищевые сети. Крупный размер, медленное размножение или специализация могли повысить уязвимость, но для каждого последнего вида эти факторы отдельно не измерены. Ни одна линия птерозавров кризис не пережила. Выжившие птицы не были их потомками – они представляли другую летающую ветвь архозавров.
Сопоставить конкретные роды, возраст, размеры и образ жизни позволяет каталог видов птерозавров.
Частые вопросы
Птерозавры были динозаврами или птицами?
Нет. Они составляли отдельную ветвь архозавров, близкую к динозаврам. Птицы являются динозаврами, а птерозавры освоили активный полёт независимо и раньше.
Как было устроено крыло птерозавра?
Основную поверхность образовывала кожно-мышечная мембрана, натянутая вдоль сильно удлинённого четвёртого пальца к телу и задней конечности. В ней находились сосуды, мышцы и укрепляющие волокна.
Мог ли гигантский птерозавр взлететь с земли?
Строение костей и биомеханические модели поддерживают четвероногий старт с мощным толчком передних конечностей. Это расчётная реконструкция, но она лучше соответствует анатомии гигантов, чем птичий разбег на двух ногах.
Умели ли детёныши птерозавров летать?
Для ряда очень молодых экземпляров прочность костей и пропорции крыла допускают активный полёт вскоре после вылупления. Универсальное правило для всех видов не доказано, а степень родительской заботы остаётся неизвестной.


