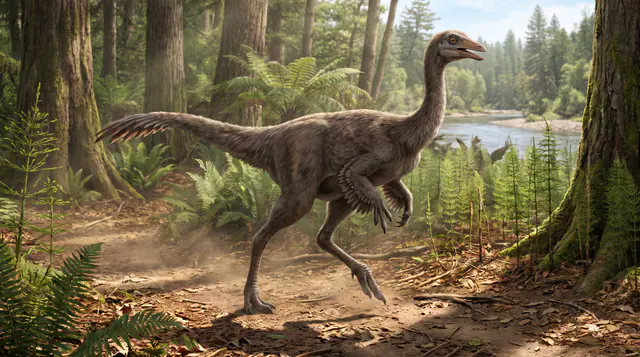

Элафрозавр (Elaphrosaurus bambergi) – стройный двуногий теропод из позднего киммериджа Танзании, живший примерно 152–150 млн лет назад. Его единственный надёжный скелет найден в средней динозавровой пачке формации Тендагуру. Позвоночник, плечевой пояс, таз и значительная часть задней конечности сохранились, но черепа и зубов среди костей нет.
Элафрозавр важен тем, что это один из наиболее полно представленных позднеюрских теропод Африки, хотя его череп не найден. Удлинённая шея, лёгкое туловище, необычный плечевой пояс и стройные задние конечности помогают изучать раннюю эволюцию цератозавров. При этом питание животного остаётся неизвестным: привычный образ быстрого хищника основан главным образом на старых реконструкциях, а не на сохранившихся челюстях или зубах.
Краткий профиль
| Признак | Данные |
|---|---|
| Научное название | Elaphrosaurus bambergi |
| Группа | Тероподы, Ceratosauria; вероятно Noasauridae, Elaphrosaurinae |
| Период и возраст | Поздняя юра, поздний киммеридж, примерно 152–150 млн лет назад |
| География | Южная Танзания, формация Тендагуру, средняя динозавровая пачка |
| Длина | Ориентировочно 6–6,2 м по скелетной реконструкции; встречаются более высокие оценки |
| Масса | Около 200–250 кг по объёмным и сравнительным моделям |
| Питание | Не установлено; хищная, всеядная и растительноядная интерпретации обсуждаются |
| Передвижение | Двуногое |
| Основные виды | Один признанный вид – E. bambergi |
| Качество материала | Обширный частичный посткраниальный скелет одного животного, но без черепа и с неполными передними конечностями |
Значение названия и история открытия
Название Elaphrosaurus образовано от греческих слов elaphros – «лёгкий» и sauros – «ящер». Его обычно переводят как «лёгкий ящер» или «легконогий ящер». Оно отражает стройное телосложение находки, но не является измерением скорости. Видовой эпитет bambergi дан в честь промышленника Пауля Бамберга, поддерживавшего немецкие раскопки в Восточной Африке.
Скелет обнаружила Германская Тендагуруская экспедиция в 1910 году в карьере dd, примерно в 2,5 км севернее холма Тендагуру. Материал поступил в берлинский Музей естествознания и сейчас зарегистрирован под номером MB.R.4960; обозначение HMN Gr.S. 38–44 в старой литературе относится к тому же типовому комплексу. Вернер Яненш назвал род и вид в 1920 году, подробно описал скелет в 1925 году и дополнил сведения после подготовки музейного монтажа в 1929 году.
История изучения осложнена тем, что часть костей была повреждена, покрыта минеральными корками или восстановлена гипсом. Кроме того, несколько элементов нашли не вместе с основным скелетом. Современная ревизия 2016 года заново проверила, какие кости действительно можно относить к элафрозавру. Элементы из того же карьера и того же уровня считаются наиболее вероятными частями одного животного, тогда как отдельный лучевой элемент из другого горизонта признан сомнительным.
Современная классификация
Элафрозавр относится к тероподам – ветви динозавров, в которую входили как крупные хищники, так и небольшие формы с разнообразным питанием. Его положение долго понимали неправильно. Стройные ноги и общий лёгкий силуэт напоминали орнитомимозавров, поэтому в XX веке род относили к «страусоподобным» динозаврам. В других работах его помещали среди целюров или сближали с целофизоидами.
Эти версии опирались в основном на сходные пропорции, которые могли возникнуть независимо. Детали позвонков, коракоида, таза, голени и плюсны показывают другое родство. Ревизия цератозавров 2008 года уже отделила род от орнитомимозавров, а исследование 2016 года поместило элафрозавра в Noasauridae и выделило подсемейство Elaphrosaurinae вместе с близкими азиатскими формами, прежде всего лимузавром. Среди важных признаков отмечены сильно удлинённые позвонки, особая форма коракоида, расширенная задняя часть подвздошной кости, плоская передняя поверхность дистальной голени и уменьшенная вторая плюсневая кость.
Элафрозавр надёжно относится к Ceratosauria, но заметно отличается пропорциями от более массивного цератозавра. Многие анализы поддерживают Elaphrosaurinae внутри Noasauridae, хотя точная глубина этой ветви меняется между матрицами. Он не был предком позднемелового ноазавра или короткомордого масиоказавра, а представлял более раннюю и иначе сложенную линию общего семейства.
Виды рода и спорные названия
Надёжно признан только типовой вид Elaphrosaurus bambergi. Другие названия, которые в разное время включали в этот род, не расширяют подтверждённый состав Elaphrosaurus.
Материал из Центральной Сахары был назван Elaphrosaurus iguidiensis, но он происходил из нескольких удалённых местонахождений и включал разнородные зубы и отдельные кости. Такое объединение нельзя считать единым диагностическим скелетом, поэтому название обычно рассматривают как сомнительное и не относят к элафрозавру в строгом смысле.
Вид Elaphrosaurus gautieri из Нигера позже получил самостоятельное родовое название Spinostropheus gautieri. Североамериканские кости из формации Моррисон также неоднократно сравнивали с элафрозавром, но изолированные плечевая и большеберцовая кости не сохраняют достаточного набора признаков для уверенного определения. Предлагавшиеся для части этого материала названия «E. philtippettensis» и «E. philtippettorum» не были опубликованы по правилам зоологической номенклатуры и считаются недействительными. Поэтому географический диапазон подтверждённого рода ограничен Танзанией.
Какие окаменелости найдены
Главный материал MB.R.4960 представляет один частичный, но сравнительно обширный скелет без головы. В него входят серии шейных, спинных, крестцовых и хвостовых позвонков, элементы плечевого пояса, плечевая кость, части кисти, таз и значительная часть левой задней конечности. Сохранились бедренная, большеберцовая и малоберцовая кости, элементы голеностопа, плюсны и несколько фаланг стопы.
Особенно ценна сохранность позвоночного столба и задней ноги. Она позволяет сравнивать пропорции тела и строение сочленений, а не судить о животном по единственному зубу или позвонку. Для позднеюрских теропод Африки такой материал необычно информативен. Именно поэтому элафрозавр часто используется в анализах эволюции цератозавров.
Однако выражение «почти полный скелет» вводит в заблуждение. Черепа, нижней челюсти и зубов нет. Кисть представлена фрагментарно, часть рёбер и конечных хвостовых позвонков отсутствует, а некоторые кости, приписанные роду в старых работах, не удалось подтвердить. Нет отпечатков кожи, перьев, содержимого пищеварительного тракта, яиц, гнёзд или следовой дорожки, которую можно было бы надёжно связать именно с этим родом.
Размеры и строение
Полную длину приходится восстанавливать по неполному скелету и пропорциям близких теропод. Классическая скелетная реконструкция даёт около 6–6,2 м, хотя другие способы восстановления недостающего хвоста приводили к более высоким значениям. Оценки массы около 200–250 кг основаны на объёмных моделях и сравнении с пропорциями теропод. Необычно длинное и неглубокое тело делает простое масштабирование особенно чувствительным к выбранному контуру грудной клетки и хвоста.
Шея состояла из чрезвычайно вытянутых и суженных позвонков. Она была длинной, но не обязательно очень гибкой. Сочленовные отростки сравнительно тонкие, а характерные для многих теропод надпозвоночные выступы на шейных позвонках отсутствовали. Такая конструкция могла поддерживать небольшую голову, но форму головы по ней определить нельзя.
Туловище было удлинённым и неглубоким. Подвздошная кость относительно невелика, её задняя часть расширялась в стороны, а седалищная кость завершалась заметным расширением. Плечевой пояс выглядел широким и необычным для теропода такого сложения. Передняя конечность была изменена по сравнению с типичным планом ранних теропод, но из-за неполной кисти нельзя надёжно восстановить число и форму всех пальцев или предполагаемую функцию руки.
Задние конечности были стройными. Большеберцовая кость длиной около 608 мм превосходила бедренную, длина которой составляла около 520 мм, а плюсна достигала примерно 74% длины бедра. Вторая плюсневая кость была уменьшена. Такие пропорции согласуются с эффективным двуногим передвижением, но стопа не имела полного набора специализированных черт бегущих целурозавров. По ней нельзя вычислить максимальную скорость или объявить элафрозавра одним из самых быстрых динозавров.
Длинный хвост уравновешивал туловище во время движения. На старых скелетных схемах его конец иногда показан резко опущенным вниз, но эта форма может быть следствием посмертной деформации или монтажа. Кожный покров неизвестен: ни чешуя, ни перьеподобные структуры у элафрозавра не сохранились.
Питание, среда и возможное поведение
Элафрозавр жил в юрском периоде на низкой прибрежной равнине Восточной Африки. Средняя динозавровая пачка Тендагуру состояла из мелкозернистых песчаников, алевролитов и глин, отложенных каналами, мелкими водоёмами и лагунами возле моря. В отдельных местах кости переотлагались в русловых концентрациях. Вместе с элафрозавром в совместимых слоях известны кентрозавр, завроподы, небольшие орнитоподы и несколько значительно более фрагментарных теропод.
Питание рода установить нельзя, потому что не найдены череп, зубы или содержимое кишечника. Старые реконструкции изображали элафрозавра лёгким хищником, преследующим небольшую добычу. Это возможный вариант для теропода, но прямого подтверждения у самого рода нет.
Ситуацию усложняет родство с лимузавром. Молодые лимузавры имели зубы, а взрослые их теряли; камни в брюшной области и химические признаки костей поддерживают существенную роль растительной пищи. Это показывает, что элафрозаврины могли питаться разнообразнее, чем считалось раньше. Но переносить такую особенность на элафрозавра нельзя: его голова неизвестна, а отсутствие зубов объясняется отсутствием всего черепа, а не доказанной беззубостью.
Хищная, всеядная и преимущественно растительноядная модели остаются гипотезами разной степени правдоподобия. Неизвестны охотничьи приёмы, возможный набор растительной пищи, сезонные перемещения и социальное поведение. Единственный скелет не доказывает ни одиночный образ жизни, ни существование групп.
Старые ошибки и популярные мифы
Главная старая ошибка – представление элафрозавра как настоящего «страусового динозавра». Сходство длинных нижних отделов ног с орнитомимозаврами оказалось конвергентным. По строению других костей это цератозавр, эволюционно далёкий от орнитомима.
Вторая проблема связана с музейными и художественными реконструкциями. Череп элафрозавра не найден, поэтому любой показанный клюв, зубастая пасть, гребень или форма головы заимствованы у родственников. То же относится к точной кисти и наружному контуру шеи. Такая реконструкция может быть научно обоснованной, но она не является прямым изображением найденных костей.
Не подтверждены и популярные оценки высокой скорости. Длинная голень и плюсна указывают на стройную конечность, однако скорость зависит также от мышц, массы, осанки, покрытия грунта и поведения. Цифры вроде 40 или 50 км/ч для элафрозавра нельзя проверить по имеющемуся скелету.
Наконец, нельзя уверенно называть его ни специализированным хищником, ни беззубым травоядным. Обе крайности заполняют пробел, оставленный отсутствующим черепом. Научно честная реконструкция должна показывать, какие детали основаны на MB.R.4960, а какие перенесены от лимузавра или других цератозавров.
Краткий итог
Элафрозавр – валидный род позднеюрских цератозавров, представленный одним видом и одним важным посткраниальным скелетом из Танзании. Его длинная шея, лёгкое туловище и необычные конечности позволяют уверенно отличить животное от орнитомимозавров и связывают его с элафрозавринами. Но отсутствие черепа оставляет открытыми главные вопросы о питании, внешности головы и образе жизни.
Частые вопросы
Когда и где жил элафрозавр?
Он жил в позднем киммеридже около 152–150 млн лет назад. Единственный надёжный скелет происходит из средней динозавровой пачки формации Тендагуру в Танзании.
Каких размеров был элафрозавр?
Классическая реконструкция даёт около 6–6,2 м длины и 200–250 кг массы. Значения приблизительны, потому что череп и части хвоста отсутствуют, а контур мягких тканей моделируется.
Был ли элафрозавр хищником?
Это возможно, но не доказано. Череп, зубы и содержимое пищеварительного тракта не найдены, поэтому хищная, всеядная и растительноядная модели нельзя надёжно различить.
Почему элафрозавра больше не считают орнитомимозавром?
Длинные голени и плюсны лишь внешне напоминали «страусовых динозавров». Строение шейных позвонков, плечевого пояса, таза, голени и стопы связывает элафрозавра с цератозаврами и ноазавридами.