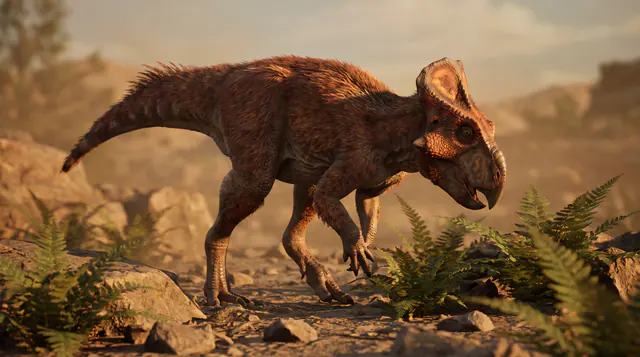

Эйниозавр (Einiosaurus procurvicornis) – растительноядный цератопсид из верхней части формации Ту-Медисин в северо-западной Монтане. Он жил в позднем кампанском веке около 74,5–74 млн лет назад. Этот диапазон относится к положению местонахождений в современном возрастном каркасе формации, а не к датированию каждой кости отдельно.
Род известен прежде всего сильно наклонённым вперёд носовым рогом взрослых животных и парой длинных отростков на заднем крае воротника. Научная ценность эйниозавра ещё выше его необычного облика: два костеносных скопления сохранили остатки не менее 15 особей разного возраста. Этот материал позволяет изучать рост цератопсов и проверять гипотезу о постепенной эволюции от более ранних рогатых форм к ахелозавру и пахиринозаврам.
Краткий профиль
| Признак | Данные |
|---|---|
| Научное название | Einiosaurus procurvicornis |
| Группа | Птицетазовые динозавры, цератопсы, Ceratopsidae, Centrosaurinae, Pachyrhinosaurini |
| Период и возраст | Поздний мел, поздний кампан, примерно 74,5–74 млн лет назад |
| География | Северо-западная Монтана, США, верхняя часть формации Ту-Медисин |
| Длина | Около 4,5–5 м, оценка приблизительная |
| Масса | Примерно 1–1,5 т, возможен более широкий разброс |
| Питание | Растительноядное |
| Передвижение | Четвероногое |
| Основные виды | Один признанный вид – E. procurvicornis |
| Качество материала | Не менее 15 особей из двух костеносных скоплений, несколько черепов и многочисленные разрозненные кости, но без полного скелета |
Значение названия и история открытия
Название Einiosaurus составлено из слова eini, означающего американского бизона в языке черноногих, и греческого sauros – «ящер». Его можно передать как «ящер-бизон». Видовой эпитет procurvicornis образован от латинских слов со значением «изогнутый вперёд рог» и прямо указывает на форму носового украшения у зрелых особей.
Материал собрали экспедиции Музея Скалистых гор в районе Лэндслайд-Бьютт на землях резервации черноногих. Джек Хорнер обнаружил первые из этих скоплений в 1985 году, а музейные отряды работали на них до конца десятилетия. Два главных местонахождения получили названия Дино-Ридж, TM-023, и Каньон-Боунбед, TM-046. Кости лежали не как целые скелеты, а в плотных скоплениях с перемешанными элементами нескольких животных разного возраста.
До официального описания находки относили к неопределённому центрозаврину и обсуждали как одну из последовательных форм верхней части Ту-Медисин. В работе 1992 года животное фигурировало как «переходный таксон B». Название Einiosaurus procurvicornis было объявлено в 1994 году и полноценно закреплено Скоттом Сэмпсоном в 1995 году. Голотип MOR 456 8-9-6-1 представляет диагностические части черепа зрелой или близкой к зрелости особи из Каньон-Боунбед.
Современная классификация
Эйниозавр входит в Ceratopsidae – семейство крупных четвероногих цератопсов с клювом, зубными батареями, воротником и костными ядрами рогов. Внутри семейства он относится к Centrosaurinae. У центрозаврин воротник обычно короче, чем у хазмозаврин, а самые заметные украшения часто располагались на носу и по краям воротника.
Название подсемейства связано с центрозавром, но эйниозавр не был его видом или прямым потомком. У канадского рода иначе устроены носовой рог и задний край воротника, тогда как эйниозавр входит в линию пахиринозаврин.
Эйниозавра обычно помещают в Pachyrhinosaurini рядом с ахелозавром и пахиринозавром. Он сохранял длинный носовой рог, тогда как у более производных представителей этой линии его заменяло шероховатое костное утолщение. Поэтому во многих анализах эйниозавр оказывается ближайшей внешней ветвью к Pachyrostra, объединяющей ахелозавра и пахиринозавров.
Особенно обсуждается гипотеза анагенеза – постепенного преобразования одной популяционной линии без одновременного разделения на несколько ветвей. По этой модели в верхней части Ту-Медисин последовательно существовали формы, близкие к стиракозавру, затем Stellasaurus, эйниозавр и ахелозавр. Их положение в разрезе и сочетание признаков согласуются с направленной сменой носового рога, надглазничных украшений и отростков воротника.
Однако прямое происхождение одной названной формы от другой не доказано. Неполнота геологической летописи, небольшое число диагностических черепов и сильные возрастные изменения могут создавать видимость плавного перехода. Поэтому корректно говорить о поддерживаемой научной гипотезе, а не о бесспорной цепочке предков и потомков.
Виды рода и спорные находки
Надёжно признан один вид – Einiosaurus procurvicornis. Второго валидного вида для рода не описано. Название «переходный таксон B» относится к этапу изучения того же материала и не обозначает отдельный вид.
Некоторые фрагментарные находки из формации Ту-Медисин трудно уверенно отличить от остатков близких центрозаврин. Особенно показателен частичный череп MOR 591, который ранее относили к ахелозавру. Его возраст, сохранность и положение в разрезе допускают также принадлежность эйниозавру, поэтому без более полного сравнительного материала определение остаётся неуверенным.
Старое название Monoclonius lowei, основанное на другом неполном черепе из Канады, иногда сопоставляли с молодыми эйниозаврами и близкими родами. Но такой материал не позволяет надёжно перенести вид в Einiosaurus. В обзор рода его нельзя включать как второй подтверждённый вид.
Какие окаменелости найдены
Эйниозавр известен из двух многособьевых костеносных скоплений, расположенных примерно в 45–47 м ниже контакта формации Ту-Медисин с вышележащими морскими отложениями. Каньон-Боунбед является типовым местонахождением, а Дино-Ридж дал дополнительную серию разрозненных костей. В совокупности материал представляет не менее 15 животных, хотя точное минимальное число зависит от методики подсчёта повторяющихся элементов.
Наиболее важны несколько черепов и многочисленные отдельные кости черепа. Голотип сохраняет носовую область, надглазничные части и фрагменты воротника с признаками зрелого животного. Частичный сочленённый череп MOR 456 8-8-87-1 принадлежал более молодой особи и показывает, как менялись украшения головы во время роста. Кроме того, найдены челюсти, элементы воротника, позвонки, рёбра, кости поясов и конечностей.
Материал богат по числу особей, но не является полным анатомическим эталоном. Целого сочленённого скелета взрослого эйниозавра нет, а многие посткраниальные кости из скоплений нельзя связать с конкретным черепом. Не обнаружены надёжно принадлежащие этому роду отпечатки кожи, яйца, гнёзда, следовые дорожки или содержимое пищеварительного тракта.
Микроструктуру большеберцовых костей изучали на серии особей разных размеров. Результаты указывают на быстрый рост в молодости и его замедление примерно в возрасте нескольких лет. Даже самые крупные исследованные кости могли принадлежать животным, ещё не завершившим рост. Вывод о точном возрасте половой зрелости остаётся гипотезой, а не прямым наблюдением.
Размеры и строение
Обычная реконструкция даёт эйниозавру около 4,5–5 м длины и примерно 1–1,5 т массы. Эти числа нельзя считать измеренным максимумом. Скелеты разобщены, возраст крупнейших особей определяется не идеально, а объём мягких тканей приходится восстанавливать по близким цератопсидам. Поэтому более точная цифра создала бы ложное впечатление надёжности.
Голова оканчивалась узким роговым клювом. За ним располагались ряды тесно сменявшихся зубов, образующих зубные батареи. Челюсти могли срезать и измельчать волокнистую растительную пищу преимущественно вертикальными движениями, хотя механизм не был точной копией жевания млекопитающих.
Главный отличительный признак зрелых особей – длинный, сжатый с боков носовой рог с широкой основой, заметно наклонённый вперёд. У молодых животных рог был короче и стоял более вертикально. Его костное ядро при жизни покрывала роговая оболочка, на присутствие которой указывают борозды и текстура поверхности. Толщина и окончательный контур оболочки неизвестны, поэтому реконструкция показывает правдоподобный вариант, а не сохранённый мягкий покров.
Над глазами у молодых особей были небольшие роговые ядра. По мере взросления они уплощались и перестраивались в широкие низкие костные массы. Сочленённый череп MOR 456 8-8-87-1 заполняет промежуток между этими стадиями. Исследование 2021 года показало, что воротник приближался к взрослому размеру раньше, чем завершалось преобразование носового рога, а надглазничные украшения начинали меняться до него. Воротник имел окна и нёс пару крупных задних отростков.
Тело соответствовало общему плану центрозаврин: мощная шея поддерживала тяжёлую голову, туловище опиралось на четыре крепкие конечности, а хвост был сравнительно недлинным. Анатомия подтверждает устойчивое четвероногое передвижение, но не позволяет вычислить реальную скорость бега или продолжительность переходов.
Среда, питание и возможное поведение
Эйниозавр жил на западной части Ларамидии в меловом периоде. Верхняя Ту-Медисин формировалась на внутренней равнине между молодыми горами на западе и Западным внутренним морем на востоке. Речные русла, поймы, мелкие озёра и пересыхавшие водоёмы существовали в выраженно сезонном климате. Два скопления эйниозавров лежат примерно в 45–47 м ниже контакта с формацией Бэрпо, а обновлённые U-Pb датировки помещают их в самый поздний интервал истории Ту-Медисин.
Клюв и зубные батареи надёжно показывают растительноядность. Эйниозавр мог обрывать низкую и средневысокую растительность и перерабатывать жёсткие стебли и листья. Конкретные растения, долю плодов, семян или древесных частей установить невозможно, поскольку содержимое желудка не найдено.
Тафономическое исследование костеносных скоплений связало массовую гибель с засухой. По этой модели животные собирались у сокращавшихся водоёмов, погибали от недостатка воды и пищи, а затем их кости перемешивались в мелководной обстановке. Это правдоподобное объяснение комплекса осадочных и костных признаков, но отдельные детали события восстановить нельзя.
Присутствие многих особей и разных возрастных групп совместимо с групповым образом жизни. Однако костное скопление само по себе не доказывает постоянное стадо: одиночные животные также могли независимо приходить к последнему источнику воды. Нельзя уверенно описывать иерархию, брачные турниры или заботу о потомстве.
Старые ошибки и популярные мифы
Самый известный образ эйниозавра – животное с носовым рогом, загнутым как крюк или открывалка. Костное ядро действительно наклонялось вперёд у зрелых особей, но форма наружной роговой оболочки неизвестна. Кроме того, молодые животные выглядели иначе. Одинаковый огромный крюк у каждой особи любого возраста является художественным упрощением.
Не доказано, что носовой рог служил главным оружием против хищников. Он мог участвовать в демонстрациях, распознавании сородичей или контактах между особями, но следы конкретного способа использования ограничены. Большие отростки воротника также не следует автоматически считать копьями для боя.
Два костеносных скопления часто называют остатками стад. Это возможная интерпретация, а не прямое наблюдение социальной жизни. Точно так же последовательность Stellasaurus – эйниозавр – ахелозавр не является окончательно доказанной родословной. Она хорошо согласуется с частью данных, но может уточняться при новых находках и датировках.
Наконец, эйниозавр не был разновидностью трицератопса и не считается его прямым предком. Эйниозавр относится к центрозавринам, а трицератопс – к хазмозавринам. Сходство клюва, воротника и четвероногого тела отражает более глубокое общее родство.
Итог
Эйниозавр – самостоятельный род позднемеловых центрозаврин, представленный одним признанным видом и необычно богатой серией костей из двух местонахождений Монтаны. Его загнутый носовой рог, возрастные изменения черепа и положение между более ранними рогатыми формами и пахиринозаврами делают род ключевым для изучения эволюции цератопсов. При этом точные размеры взрослых животных, функция украшений и характер группового поведения остаются ограниченными гипотезами.
Частые вопросы
Когда и где жил эйниозавр?
Он жил в позднем кампанском веке около 74,5–74 млн лет назад. Все надёжные находки происходят из верхней части формации Ту-Медисин в северо-западной Монтане.
Сколько особей эйниозавра найдено?
Два костных скопления представляют не менее 15 животных разного возраста. Это минимальная оценка по повторяющимся костям, а не число целых скелетов.
Как менялся рог эйниозавра с возрастом?
У молодых животных носовой рог был короче и стоял прямее. У зрелых особей костное ядро удлинялось и сильно наклонялось вперёд, тогда как надглазничные рога превращались в низкие округлые массы.
Был ли эйниозавр предком ахелозавра?
Последовательность слоёв и изменение украшений черепа совместимы с такой анагенетической линией. Прямую связь предок-потомок по имеющимся окаменелостям доказать нельзя.