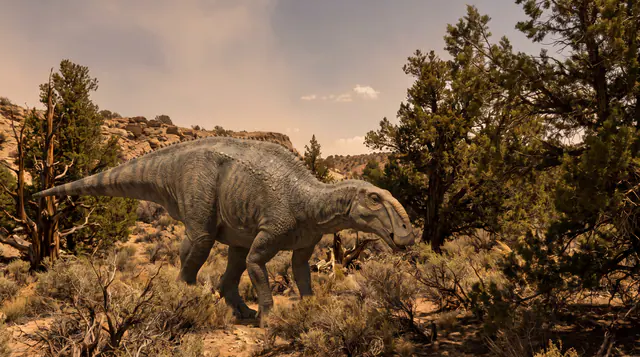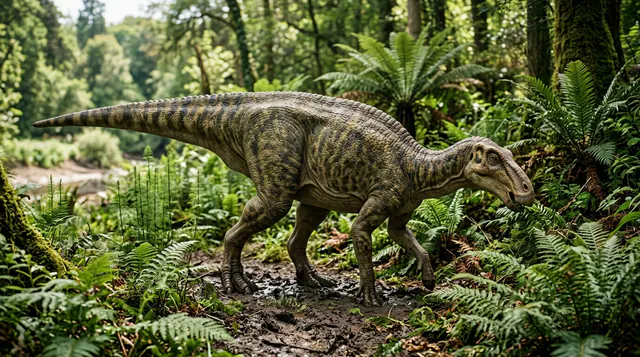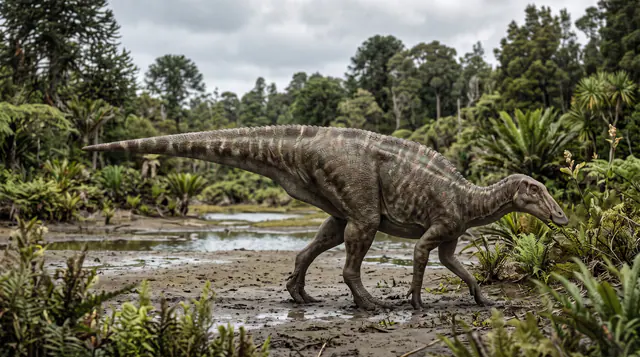

Брахилофозавр (Brachylophosaurus) – род крупных растительноядных гадрозавридов, живших в западной части Северной Америки в позднем мелу. Его остатки происходят из формации Олдмен в канадской Альберте и близких по возрасту слоёв формации Джудит-Ривер в Монтане. Наиболее осторожная датировка помещает род в средний кампан, примерно 78–77 миллионов лет назад. Надёжно признан один вид – Brachylophosaurus canadensis.
Род особенно важен благодаря качеству ископаемого материала. Палеонтологи располагают черепами, почти полными сочленёнными скелетами, крупным костным ложем и знаменитым экземпляром «Леонардо» с обширными отпечатками кожи и вероятным содержимым пищеварительного тракта. Брахилофозавр также показывает, как плоский носовой гребень менялся по мере взросления и как могли эволюционировать сплошные черепные украшения у одной ветви утконосых динозавров.
Краткий профиль
| Характеристика | Данные |
|---|---|
| Научное название | Brachylophosaurus canadensis |
| Группа | Орнитоподы, Hadrosauridae, Saurolophinae, Brachylophosaurini |
| Период | Поздний мел, средний кампан, ориентировочно 78–77 млн лет назад |
| География | Альберта в Канаде и Монтана в США |
| Длина | Обычно около 8–9 м у крупных взрослых особей |
| Масса | Порядка нескольких тонн, ориентировочно 3–5 т в зависимости от метода реконструкции |
| Питание | Растительноядное; широкая морда и зубные батареи для обработки растительности |
| Передвижение | Четвероногое и двуногое в разных ситуациях |
| Основные виды | Один признанный вид – B. canadensis; название B. goodwini спорно и не считается надёжным вторым видом |
| Ископаемый материал | Несколько черепов и скелетов, костное ложе, отпечатки кожи и вероятные остатки пищи |
Значение названия и история открытия
Название Brachylophosaurus образовано от греческих слов brachys – «короткий», lophos – «гребень» и sauros – «ящер». Речь идёт не о совсем маленьком украшении, а о низком сплошном гребне, который резко отличался от высоких полых конструкций некоторых других гадрозавридов. Видовой эпитет canadensis указывает на Канаду, где нашли типовой экземпляр.
Канадский палеонтолог Чарльз Мортрем Стернберг собрал голотип CMN 8893 в 1936 году в отложениях формации Олдмен в Альберте. Экземпляр включает почти полный сочленённый череп и значительную часть посткраниального скелета. В 1953 году Стернберг выделил новый род и вид, уделив основное внимание необычной форме черепа.
В дальнейшем материал из Монтаны сильно расширил представления о роде. Почти полный взрослый скелет MOR 794, неофициально называемый «Элвисом», сохранился сочленённым и дал подробные сведения о пропорциях тела. Костное ложе MOR 1071 содержит более тысячи отдельных костей животных разных размеров. Оно позволило сравнить молодые и взрослые стадии, а также показать, что часть различий между экземплярами связана с возрастом или индивидуальной изменчивостью, а не с существованием множества видов.
Особое место занимает найденный в 2000 году субвзрослый экземпляр JRF 115H, известный как «Леонардо». На нём сохранились обширные следы наружного покрова, очертания мягких тканей и растительный материал в области туловища. Это не мумия в бытовом смысле с неизменённой плотью, а исключительно хорошо минерализованный и отпечатавшийся труп, погребённый до полного разрушения мягких частей.
Современное положение в классификации
Брахилофозавр относится к птицетазовым динозаврам, орнитоподам и семейству Hadrosauridae. Отличия базовых орнитоподов от настоящих утконосых динозавров подробно разобраны в материале об орнитоподах и гадрозаврах. Самого брахилофозавра обычно помещают в Saurolophinae – ветвь гадрозавридов без высоких полых гребней ламбеозаврин. В части работ для близкого набора форм используется историческое название Hadrosaurinae, поэтому различие в терминах не всегда означает различие в анатомическом понимании самого рода.
Более узкая группа называется Brachylophosaurini. К ней в разных анализах относят брахилофозавра, майазавру, акриставуса, пробрахилофозавра и некоторые позднее описанные формы. Майазавра известна прежде всего по гнездовым колониям, тогда как у брахилофозавра столь же прямых данных о размножении нет. Акриставус сохранял почти плоскую крышу носовой части черепа и помогает оценить исходное состояние до появления широкой костной пластины. Точное расположение ветвей внутри трибы меняется в зависимости от набора признаков и таксонов.
Пробрахилофозавр особенно важен для понимания происхождения гребня. Он геологически старше и имеет меньший треугольный носовой выступ. Его предлагали рассматривать как промежуточную форму между безгребневым предком и брахилофозавром с широкой костной пластиной. Это правдоподобная эволюционная гипотеза, но она не доказывает прямую цепочку «предок – потомок». Исследования зрелости скелета показывают, что пробрахилофозавр не был просто молодым брахилофозавром и сохраняет статус отдельного рода.
Виды рода и спорные названия
Единственным надёжно признанным видом остаётся Brachylophosaurus canadensis. Он диагностируется по сочетанию признаков черепа, прежде всего по строению сплошного носового гребня, удлинённым элементам вокруг глазницы и особенностям верхней челюсти и квадратоскуловой кости. Не все признаки одинаково выражены у каждого экземпляра: возраст, размер, индивидуальная изменчивость и сохранность заметно влияют на внешний вид костей.
В 1988 году по фрагментарному черепному материалу из Монтаны было предложено название Brachylophosaurus goodwini. Повторное исследование в 2005 году свело его в младшие синонимы B. canadensis, поскольку заявленные отличия сочли вариациями внутри одного вида. Более поздняя работа показала, что типовой экземпляр goodwini слишком неполон и необычен для уверенного включения в B. canadensis. Сейчас его безопаснее обозначать как неопределённого представителя Brachylophosaurini. Это название не служит основанием для признания второго вида брахилофозавра.
Какие окаменелости найдены
Голотип CMN 8893 остаётся ключевым экземпляром, потому что сочетает череп с посткраниальными костями и точно связывает название рода с конкретной анатомией. Череп почти полный, хотя некоторые швы скрыты сочленением и деформацией. Повторное описание подтвердило характерный плоский носовой гребень и показало, что ряд признаков, прежде считавшихся диагностическими, меняется между особями.
MOR 794 представляет крупного взрослого животного с почти полным сочленённым скелетом. Максимальная длина его черепа составляет около 83 сантиметров. Экземпляр важен для восстановления позвоночника, конечностей, таза и общей длины тела. Он также демонстрирует взрослую широкую форму гребня.
Костное ложе MOR 1071 содержит более тысячи подготовленных черепных и посткраниальных элементов. По повторяющимся костям в нём распознали как минимум шесть животных – не менее четырёх субвзрослых и двух взрослых. Это не набор целых скелетов в жизненных позах, а скопление разобщённых и частично обветренных костей. Тафономическое исследование связывало накопление с тушами, задержанными древесным стволом в русле, а затем расчленёнными и повреждёнными падальщиками. Костное ложе позволяет изучать рост и изменчивость, но не доказывает постоянное стадо или совместную гибель всех особей.
«Леонардо» сохранил участки чешуйчатой кожи с неодинаковыми по размеру бугорками на разных частях тела. Окраска не сохранилась, поэтому любые цветовые схемы остаются художественными. В области туловища найдено скопление мелких растительных фрагментов, смешанных с глиной и песком. Положение материала, целостность туши и отсутствие сходного скопления снаружи поддерживают интерпретацию вероятного содержимого кишечника. При этом это не идеальный снимок обычного рациона: часть вещества могла измениться при разложении и погребении.
Размеры и строение
Крупные взрослые брахилофозавры достигали примерно 8–9 метров в длину. Более высокие значения из популярных справочников часто основаны на растягивании пропорций или на максимальных оценках без привязки к конкретному полному скелету. Масса не измеряется напрямую по окаменелостям и зависит от объёма мягких тканей, поэтому разумно говорить о нескольких тоннах, ориентировочно 3–5 тоннах для больших взрослых особей.
Главная особенность головы – сплошной костный гребень, образованный носовыми костями и направленный назад над крышей черепа. У молодых животных он отсутствовал или был небольшим. По мере взросления гребень удлинялся, расширялся и у самых крупных особей превращался в плоскую лопатообразную пластину. Поэтому сравнение черепов без учёта возраста раньше могло создавать ложное впечатление о разных видах или полах.
Передняя часть морды была беззубой и при жизни покрывалась роговым клювом. За ним располагались зубные батареи с множеством сменных зубов. Одновременно работала только часть зубов, а новые коронки постоянно заменяли изношенные. Челюсти обеспечивали сложную обработку пищи, но это не было точной копией жевания млекопитающих. Исследования сочленений черепа показывают, что прежние модели с очень свободным движением отдельных костей были преувеличены.
Туловище было массивным, хвост – длинным и укреплённым окостеневшими сухожилиями. Задние конечности несли основную нагрузку при быстром движении, а передние были достаточно сильными для опоры. Брахилофозавр мог передвигаться на четырёх ногах и переходить на две, но точная доля каждого способа в повседневной жизни неизвестна. Следов, позволяющих вычислить его скорость, нет.
Среда обитания, питание и возможное поведение
Брахилофозавр жил рядом с западным берегом Внутреннего моря, разделявшего Северную Америку в меловом периоде. Формации Олдмен и Джудит-Ривер сохраняют отложения речных русел, пойм, дельтовых и прибрежных низменностей. Ландшафт менялся во времени и включал влажные участки, сезонно пересыхавшие поверхности и каналы, по которым тела могли быстро переноситься и погребаться песком.
Растительноядность подтверждается клювом, зубными батареями и общим строением пищеварительной системы гадрозавридов. Животное могло собирать листья, молодые побеги и другую наземную растительность на доступной высоте. Вероятные остатки пищи у «Леонардо» показывают, что растительный материал был измельчён до сравнительно небольших фрагментов. Они подтверждают питание наземными растениями, но не позволяют составить полный перечень любимых видов или утверждать, что все брахилофозавры питались одинаково круглый год.
Костное ложе показывает, что останки нескольких особей накопились на одном участке, но история руслового переноса не позволяет превратить это в доказательство постоянного стада. Яиц, гнёзд или эмбрионов, надёжно связанных с брахилофозавром, пока нет. Назначение гребня тоже неизвестно. Его заметная форма и изменение с возрастом делают визуальную демонстрацию или распознавание сородичей возможными функциями. Прямых данных о брачных ритуалах, половом диморфизме или использовании гребня в драках нет.
Рост и необычная сохранность костей
Срез наружной части бедренной кости крупного MOR 794 не показал внешней фундаментальной системы – плотного комплекса линий, который обычно связывают с почти полным прекращением роста. Это означает, что даже животное взрослого размера ещё могло медленно увеличиваться. При этом исследователи получили лишь керн наружной коры, а не полный поперечный срез, поэтому точный возраст MOR 794 по годовым линиям не установлен.
У другого экземпляра, MOR 2598, сохранилась сочленённая левая задняя конечность. Микроскопические и масс-спектрометрические исследования этого материала интерпретировали отдельные структуры и пептидные последовательности как остатки исходных сосудистых тканей и белков. Такие результаты относятся к химии сохранения конкретной кости и продолжают обсуждаться специалистами. Они не означают, что у находки сохранились мышцы, кровь или целые мягкие органы, и не позволяют восстановить окраску животного.
Старые ошибки и популярные мифы
Брахилофозавра иногда изображают с полым акустическим гребнем, подобным гребню коритозавра. Это неверно: его носовая пластина была сплошной и не содержала длинной системы воздушных каналов. Поэтому переносить на него гипотезы о резонаторе ламбеозаврин нельзя.
Другая популярная идея представляет гребень как таран для ударов головой. Кость могла участвовать в демонстрациях или контактах, но её форма сама по себе не доказывает силовые столкновения. Нет серии характерных травм, которая позволила бы уверенно говорить о регулярных ударах.
Термин «мумия Леонардо» не означает сохранение неизменённой кожи, мышц и органов. Большая часть исходных тканей разрушилась или химически преобразовалась, оставив отпечатки, объёмные слепки и микроскопические остатки. Столь же неточно пересказывать материал из брюшной полости как полностью известный «последний салат». Его трактуют как вероятное содержимое кишечника, но тафономические процессы требуют осторожности.
Брахилофозавр не был водоплавающим аналогом утки. Широкий клюв объясняет бытовое название «утконосый динозавр», однако скелет показывает крупное наземное животное. Оно могло пересекать воду, как многие наземные позвоночные, но доказательств постоянного водного образа жизни нет.
Итог
Брахилофозавр относится к наиболее полно представленным гадрозавридам среднего кампана Северной Америки. Единственный признанный вид, B. canadensis, известен по черепам, почти полным скелетам, костному ложу и исключительному экземпляру с кожными отпечатками. Эти находки надёжно раскрывают строение животного, но функции гребня, социальная организация и полный состав рациона остаются гипотезами.
Частые вопросы
Когда жил брахилофозавр?
Он жил в позднем мелу, в среднем кампанском веке, ориентировочно 78–77 миллионов лет назад. Точная нижняя граница его временного диапазона зависит от корреляции слоёв Альберты и Монтаны.
Насколько большим был брахилофозавр?
Крупные взрослые особи достигали примерно 8–9 метров в длину и весили несколько тонн. Узкая точная цифра массы была бы ненадёжной, поскольку она зависит от выбранной модели мягких тканей.
Для чего служил плоский гребень?
Точная функция неизвестна. Гребень мог участвовать в визуальной демонстрации и распознавании сородичей, но доказательств таранящих ударов, звукового резонатора или определённого брачного ритуала нет.
Что сохранилось у экземпляра «Леонардо»?
У него есть обширные отпечатки и объёмные следы чешуйчатого покрова, очертания некоторых мягких частей и вероятное содержимое пищеварительного тракта. Цвет кожи и точный внешний вид мягких тканей неизвестны.