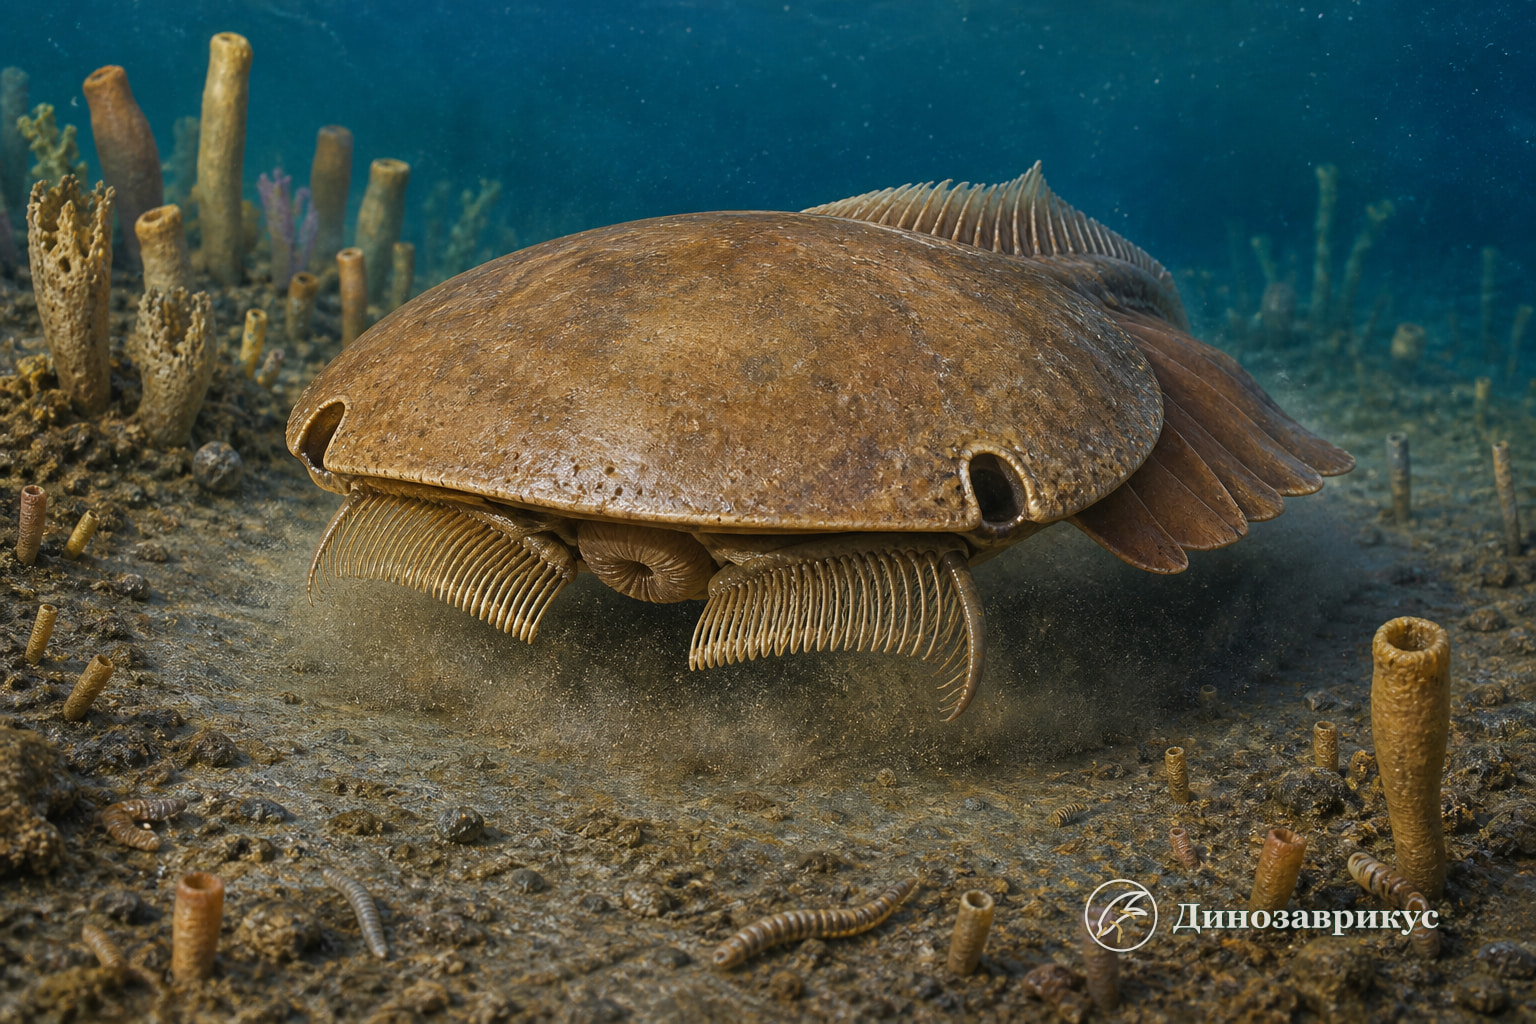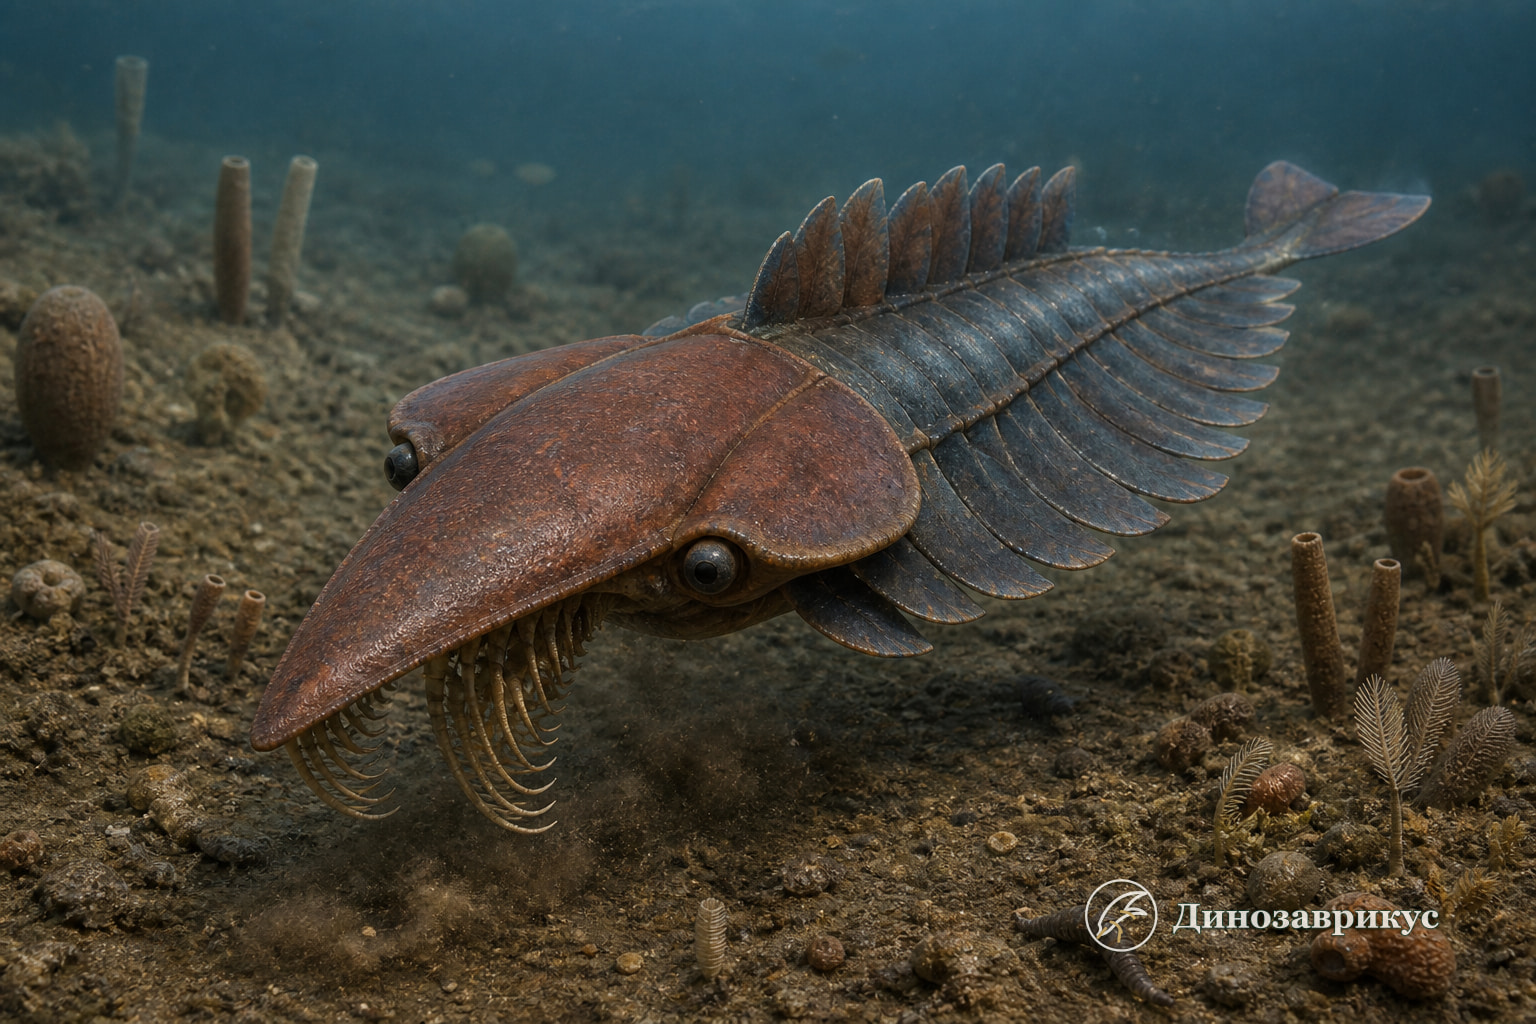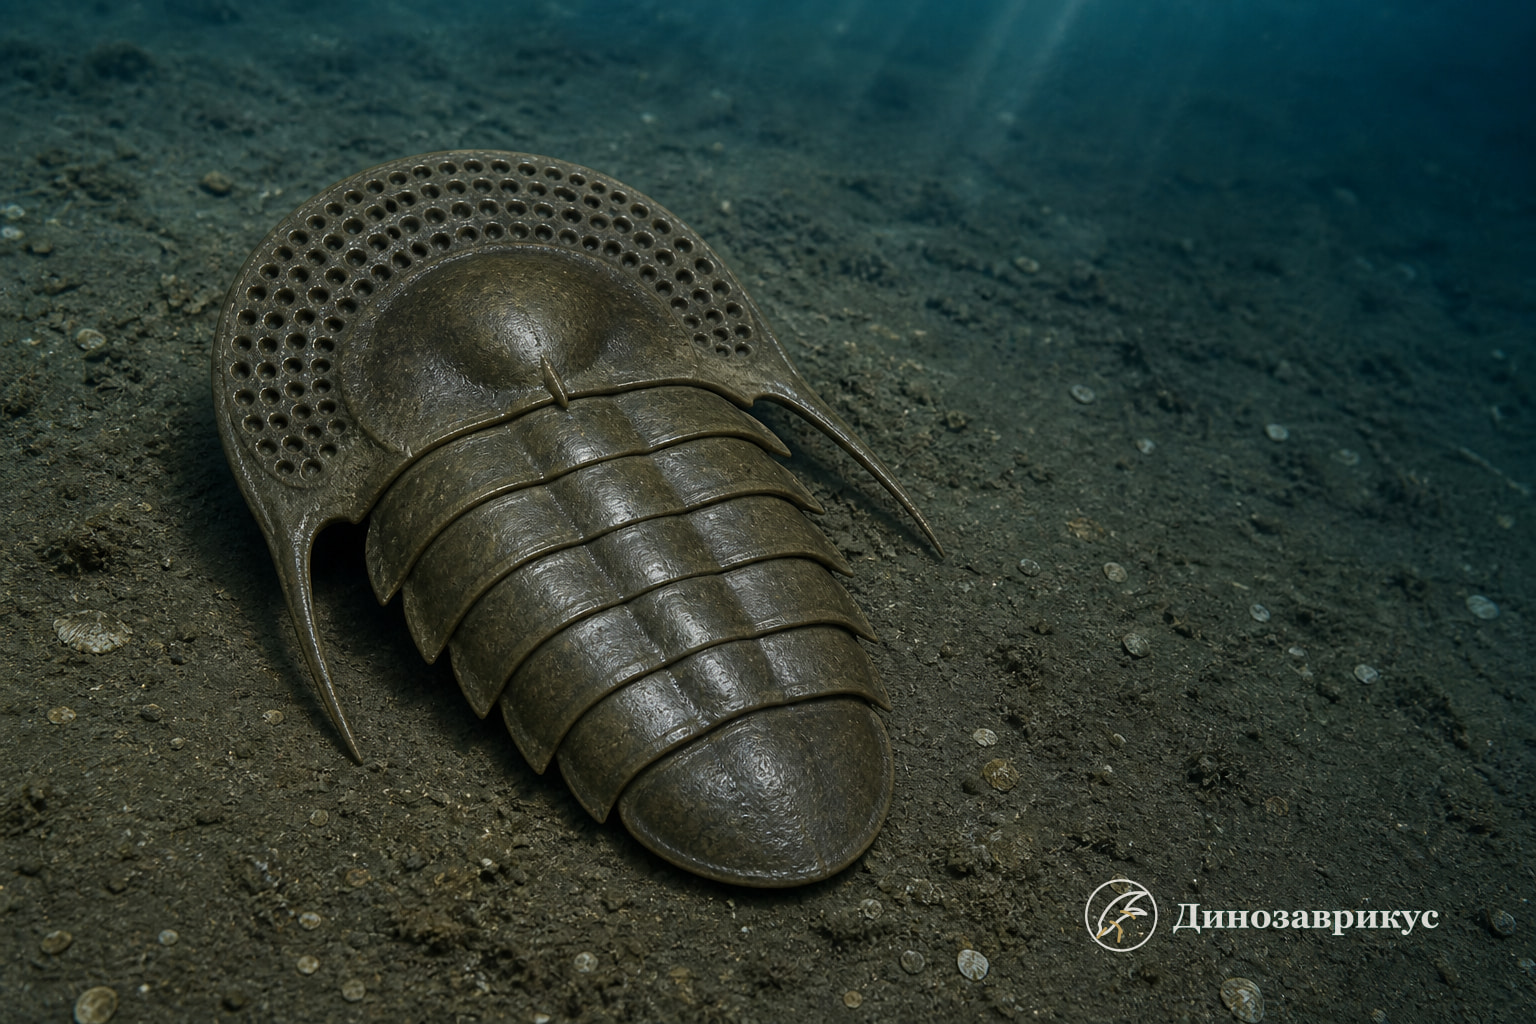
Третаспис (Tretaspis) – род позднеордовикских трилобитов семейства Trinucleidae. Его головной щит лишён глаз и окружён широкой каймой с рядами ямок, а за головой следуют всего шесть подвижных сегментов. Отдельные виды рода настолько изменчивы, что различать их по одной детали каймы рискованно: надёжная систематика требует серий экземпляров из точно известных слоёв.
Лучше всего третаспис изучен в Скандинавии, где его остатки встречаются в последовательных горизонтах верхнего ордовика. Название даже вошло в старую региональную стратиграфию как «третасписовые сланцы». Эти слои помогли проследить смену видов и морфов, но не превратили каждый вариант панциря в отдельный биологический вид.
Краткий профиль
| Параметр | Сведения |
|---|---|
| Научное название | Tretaspis McCoy, 1849 |
| Типовой вид | Asaphus seticornis Hisinger, 1840, ныне Tretaspis seticornis |
| Группа | Trilobita, Trinucleidae |
| Основной возраст | поздний ордовик, особенно катский век |
| Главные районы изучения | Швеция, Норвегия, Британия, Ирландия и Северная Америка |
| Зрение | глаза отсутствовали |
| Грудь | 6 подвижных сегментов у взрослых форм |
| Диагностика | пропорции глабеллы и каймы, схема ямок, шипы, грудь и пигидий |
| Питание | вероятен сбор взвешенных мелких частиц у дна, прямое содержимое кишечника неизвестно |
| Основа реконструкции | минерализованные панцири разных стадий; мягкие придатки не найдены |
История названия и типовой вид
Фредерик Маккой предложил Tretaspis в 1849 году и включил в него несколько видов. Типовым позднее, в 1915 году, был выбран Asaphus seticornis, описанный Вильгельмом Хизингером в 1840 году по материалу из Даларны в Швеции. Сейчас он называется Tretaspis seticornis.
История имени осложнена тем, что слово Tretaspis уже появлялось у Родерика Мурчисона в 1839 году, но не вошло в рабочую систематику. Международная комиссия по зоологической номенклатуре сохранила широко употребляемое имя Маккоя. Поэтому авторство рода указывается как McCoy, 1849, а не Murchison, 1839.
Первоначальные экземпляры T. seticornis были сплющены в сланце и не вполне передавали высокую выпуклость головы. Лейф Стёрмер переописал вид и выбрал неотип из типового района Даларны. Он также считал T. cyllarus младшим синонимом T. seticornis. Эта история важна для реконструкции: старый рисунок плоской головы не следует принимать за её прижизненную форму.
Голова и устройство каймы
Центр головы занят выпуклой глабеллой. По её сторонам нет зрительных поверхностей, и слепота подтверждается у многочисленных экземпляров. Переднее и боковые поля образуют широкую двухслойную кайму. Ряды ямок проходят по ней дугами, а отдельные ямки соединяют верхнюю и нижнюю поверхности узкими каналами.
У разных видов меняются ширина и наклон каймы, число дуг, распределение ямок и форма задних продолжений. Например, у T. ceriodes описана крутая кайма примерно постоянной ширины с пятью передними рядами. Но сам по себе один подсчёт не исчерпывает диагноз: деформация, возраст и внутривидовая изменчивость способны создать ложное различие.
Общий «решётчатый» вид головы сближает третасписа с ампиксом и лонходомасом. Последний отличается, среди прочего, длинным осевым шипом, тогда как у третасписа важны сочетание каймы, пропорций глабеллы и широкого короткого хвоста. Род нельзя уверенно определить по фрагменту без диагностических областей.
Короткое туловище
Взрослый третаспис имел шесть грудных сегментов. Их плевральные части относительно плоские у оси и круче опускаются к бокам. Пигидий широк и короток; на оси различимы слабые кольца, а на боковых полях – неглубокие борозды. Голова занимала большую долю длины всего животного.
Такое строение отличалось от более равномерно вытянутого тела зрячего асафуса. Оно не означает неподвижности: суставы груди позволяли сгибание, а ходильные конечности должны были располагаться под панцирем. Однако мягкие ноги и усики самого третасписа не найдены, поэтому их точное число и детали щетинок восстанавливаются сравнительно.
Виды, морфы и трудности определения
Ревизия норвежского материала Алана Оуэна охватила шесть ранее названных и три новых формы из района Осло. У большинства выявлен широкий диапазон изменчивости с двумя или более устойчиво встречающимися морфами. В некоторых случаях подвиды различались не наличием уникального признака, а относительной частотой морфов в выборке.
Оуэн пересмотрел и крупные видовые группы. Британские формы, ранее объединённые как T. convergens и её подвиды, были истолкованы как подвиды T. hadelandica. Североамериканские виды вместе с T. kiaeri и T. calcaria были выделены в отдельную группу вокруг T. sagenosus. Это конкретная таксономическая гипотеза ревизии, а не доказательство отсутствия будущих изменений.
Часть различий могла возникнуть благодаря неотении – сохранению у взрослых признаков более ранних стадий предков. Автор рассматривал этот процесс как возможный фактор эволюции третасписа. Вывод основан на последовательностях формы панциря, а не на наблюдаемом развитии живых животных.
Возраст, глубина и распространение
Наиболее надёжные находки рода относятся к позднему ордовику. В Скандинавии последовательные виды известны из морских сланцев и известняков катского возраста. В Англо-Уэльском бассейне и Ирландии третаспис входит в комплексы, по которым сопоставляют слои и оценивают положение бывших морских бассейнов.
Скандинавские тринуклеиды среднего ордовика в основном концентрировались в западной, более глубокой части платформы. Появление Tretaspis там в среднем и позднем карадоке интерпретировано как иммиграция из Северной Америки. Это палеобиогеографический вывод из смены фаун, а не след отдельной миграции, увиденный в породе.
Позднеордовикские сообщества Йемтланда развивались на фоне сильных изменений климата и морского уровня. Наличие третасписа в конкретном слое помогает биостратиграфии, но род охватывал несколько видов и обстановок. Нельзя автоматически переносить глубину одного местонахождения на всю географию рода или считать крайнюю агрегированную запись точной датой его исчезновения.
Питание: модель потока, а не найденная пища
Самая известная функциональная модель тринуклеидов предполагает работу выпуклой камеры под головой. Конечности поднимали мелкий осадок и создавали поток, который входил вдоль груди, проходил под каймой и выходил через отверстия. В камере могли отделяться съедобные частицы.
Строение каймы совместимо с таким направлением воды, однако у третасписа не найдено содержимое кишечника и не сохранились конечности, непосредственно показывающие движение потока. Сенсорная функция отверстий и взаимодействие с рыхлым грунтом также обсуждались. Поэтому третасписа уместно называть предполагаемым донным собирателем или фильтратором мелких частиц, но не изображать конкретный рацион как установленный.
Прямо известны форма минерализованного панциря, отсутствие глаз, шесть сегментов и изменчивый узор каймы. Усики, ноги и мягкая нижняя сторона реконструируются по родственникам. Точная поза кормления, цвет и социальное поведение не установлены. В каталоге древних членистоногих третаспис представляет специализированную позднеордовикскую ветвь тринуклеидов, хорошо документированную сериями панцирей.
Частые вопросы
Какой вид является типовым для третасписа?
Типовой вид – Tretaspis seticornis, первоначально описанный Хизингером в 1840 году как Asaphus seticornis. Его выбрал типовым Бэсслер в 1915 году.
Почему третасписа считают слепым?
На многочисленных головных щитах отсутствуют зрительные поверхности. Это устойчивый анатомический признак рода, а не результат повреждения отдельных окаменелостей.
Сколько грудных сегментов было у третасписа?
У взрослых третасписов было шесть подвижных грудных сегментов. За ними располагался очень широкий и короткий пигидий.
Для чего служили отверстия в кайме?
Основная модель связывает их с проходом воды при сборе мелких пищевых частиц. Прямой пищи или мягких органов у третасписа не найдено, поэтому сенсорные и грунтовые функции полностью не исключены.