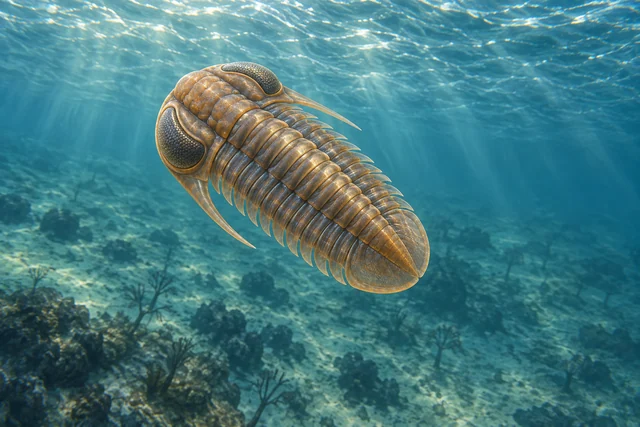

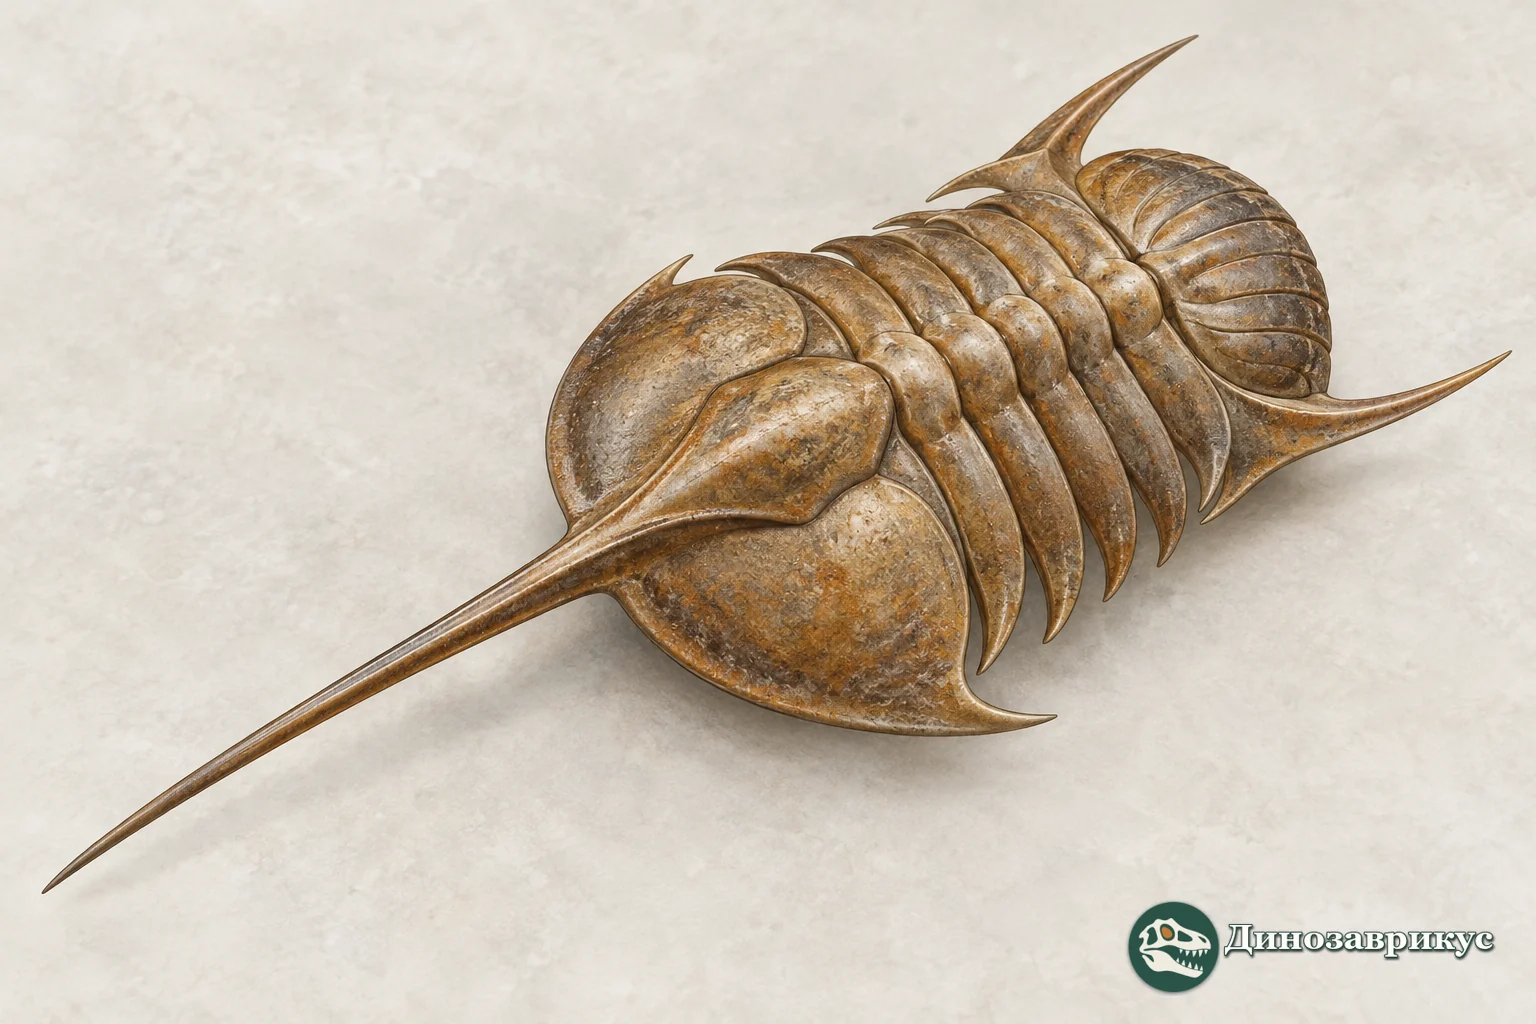
Лонходомас (Lonchodomas) – ордовикский род слепых рафиофоридных трилобитов. Его отличительная черта – передняя часть глабеллы, вытянутая в длинный прямой ростральный шип. Узкая грудь и парные задние отростки дополняют необычный силуэт, но сами по себе не раскрывают ни образ жизни, ни функцию шипа.
Род известен по разобщённым частям панциря из разных регионов. Наиболее сильные выводы о росте получены лишь для одного вида, L. chaziensis, из формации Краун-Пойнт в штате Нью-Йорк. Его развитие помогает понять конкретную линию, но не может без проверки служить моделью всех видов Lonchodomas.
Краткий профиль
| Параметр | Сведения |
|---|---|
| Научное название | Lonchodomas Angelin, 1854 |
| Типовой вид | Ampyx rostratus Sars, 1835 |
| Группа | Трилобиты, семейство Raphiophoridae |
| Возраст | Ордовикский период |
| Главный признак | Вытянутая глабелла с длинным передним рострумом |
| Туловище | Короткая грудь, обычно около пяти сегментов |
| Известный материал | Кранидии, грудные части и хвостовые щиты |
| Размер и рацион | Общая длина рода и прямые данные о пище неизвестны |
Что показывают ископаемые свидетельства?
Типовой вид Lonchodomas – Ampyx rostratus Сарса, 1835, позднее включённый в новый род Ангелином. Описания скандинавских и других ордовикских форм показывают, что длинный передний рострум важен для диагноза, но одних общих очертаний недостаточно для определения каждого фрагмента.
У типичных форм центральная часть головного щита сильно вытянута вперёд в прямой ростральный шип; грудь короткая, обычно с пятью сегментами. Развитые глаза не известны. Этот план строения не сообщает напрямую, для чего служил шип.
В 2026 году исследователи сравнили три последовательные стадии L. chaziensis из одного тонкого горизонта формации Краун-Пойнт на острове Валкур. Между двумя поздними стадиями резкая смена формы совпадает с изменением модульной организации головы. Вывод относится к одному виду и конкретной выборке.
Защита, опора, чувствительная роль и половой отбор обсуждались для длинных шипов рафиофорид. Сравнительная работа не доказывает брачные поединки у Lonchodomas. Панцирь также не устанавливает рацион, окраску или точную среду каждой особи.
Имя, типовой вид и систематическое положение
Нильс Петер Ангелин установил род Lonchodomas в 1854 году. Его типовой вид – Ampyx rostratus, описанный Михаэлем Сарсом в 1835 году и позднее перенесённый в новый род. Типовой материал фиксирует применение имени, но не представляет все морфологические варианты, которые позднее относили к Lonchodomas.
В классификации трилобитов род относят к семейству Raphiophoridae. Для рафиофорид характерны слепые головные щиты и разнообразные длинные выросты. В старых источниках встречается форма Lonchodomus, обычно рассматриваемая как позднее написание имени, а не отдельный род.
Определение отдельных видов зависит от строения глабеллы, её продолжения в рострум, лицевых швов, задних углов головного щита и пропорций пигидия. Длинный шип заметен, но не уникален для одного вида; неполный передний фрагмент нельзя уверенно назвать по одному силуэту.
Рострум и остальной панцирь
У типичных представителей выпуклая глабелла сужается вперёд и переходит в плотный, часто четырёхгранный рострум. Он направлен вперёд и мог продолжать продольный гребень по средней линии головного щита. По задним углам головного щита отходили парные шипы. Грудь была короткой; для диагностических форм обычно указывают пять подвижно сочленённых сегментов. Поперечный хвостовой щит сравнительно невелик.
Развитых фасеточных глаз у рафиофорид и Lonchodomas не описано. Отсутствие глаз согласуется с жизнью при ограниченном освещении или тесным контактом с грунтом, но само по себе не указывает точную глубину или способ передвижения. Мягкие двуветвистые конечности рода почти не сохраняются, поэтому их внешний вид на реконструкциях восстановлен сравнительно.
Рост и метаморфоз у Lonchodomas chaziensis
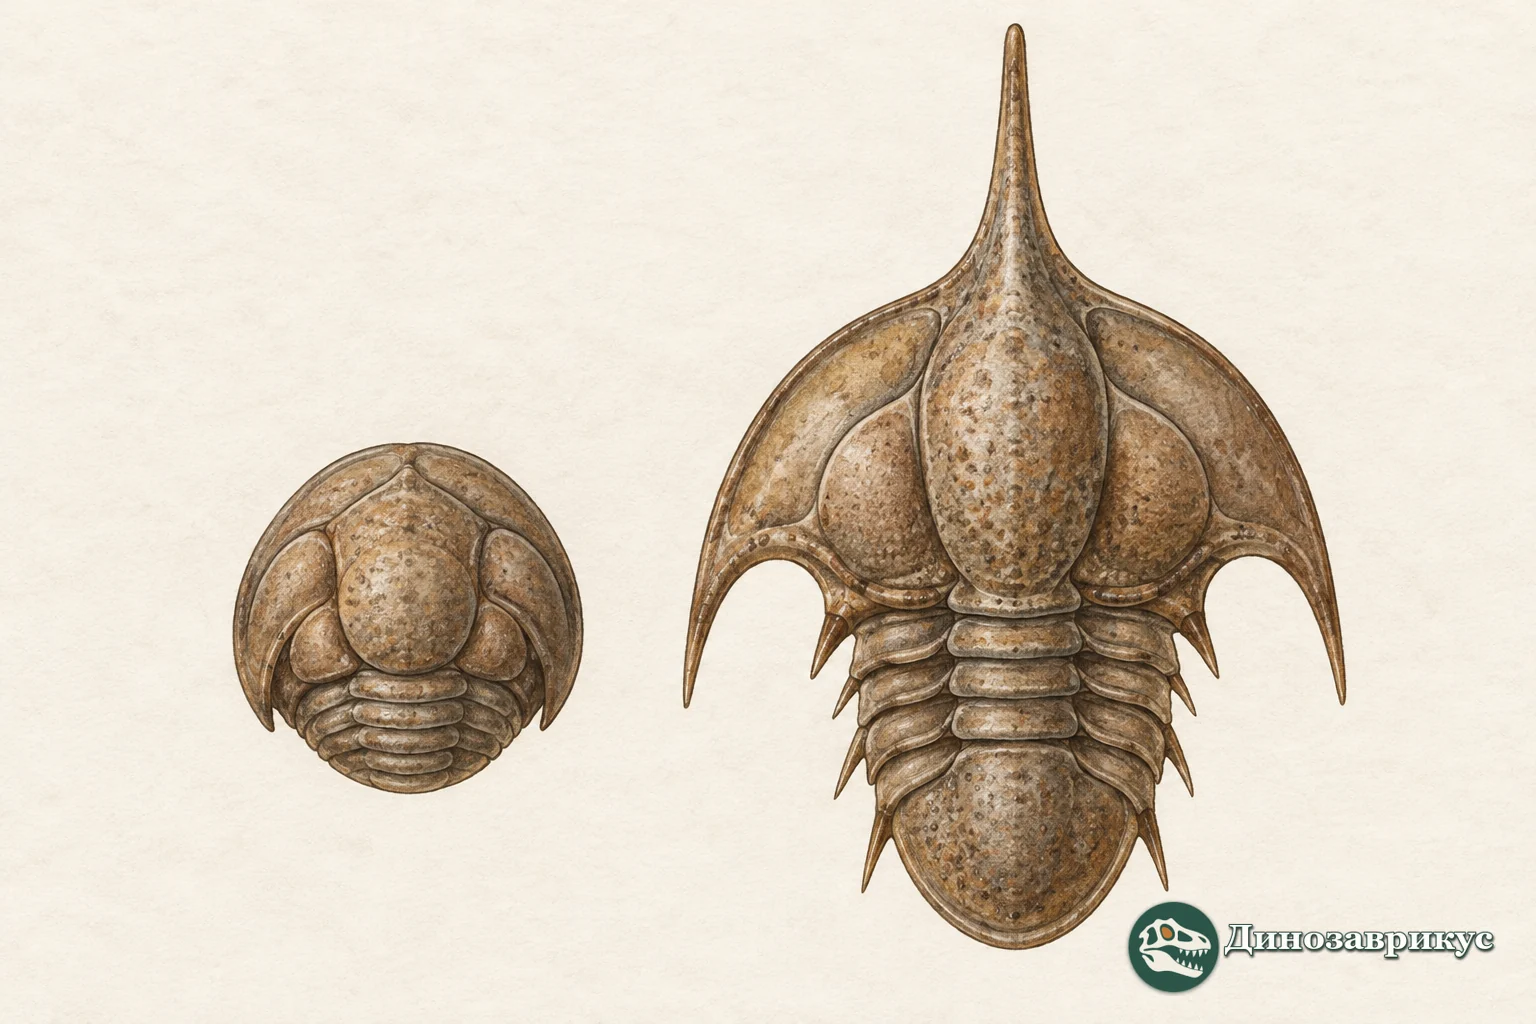
Эрнесто Варгас-Парра и Мелани Хопкинс исследовали три последовательные стадии L. chaziensis из среднего ордовика. Окаменелости собрали из одного горизонта толщиной около двух сантиметров в формации Краун-Пойнт на острове Валкур, штат Нью-Йорк. Образцы извлекли из кремнистого материала кислотной обработкой; большинство панцирных частей разобщены, а исследование сосредоточилось на голове.
Серия включала две протаспидные стадии и первую мераспидную стадию. Между более крупной протаспидной стадией и молодью после следующей линьки менялись контур головы, положение элементов глабеллы и характер их совместной изменчивости. Анализ авторов показал переход от трёх морфологических модулей к двум. Это количественный результат по форме головного щита, а не подсчёт отдельных частей тела.
Исследователи связывают столь резкую перестройку с переходом между планктонным ранним этапом и более донной жизнью молоди. Такой сценарий правдоподобен и согласуется с формой стадий, но сами окаменелости не показывают движение личинки. Данные относятся к L. chaziensis, не к каждой популяции и виду рода.
Для чего мог служить шип
Рострум и задние отростки предлагали трактовать как средство защиты, опору на мягком грунте или чувствительные структуры. В исследовании 2005 года длинные шипы других рафиофорид сравнили с рогами современных жуков: их относительная длина менялась при росте, а форма различалась у близких видов. Авторы допустили половой отбор и соперничество особей.
Это сравнительная гипотеза, а не прямое свидетельство брачного поведения Lonchodomas. Фоссилии не сохранили мягкие рецепторы на кончике шипа и не показывают его использование. Несколько функций могли сочетаться, но панцирь не позволяет выбрать одну с уверенностью. У близкого ампикса также есть длинный головной вырост, однако это не означает идентичного поведения.
География, возраст и образ жизни
Описания Lonchodomas охватывают ордовикские породы от нижнего до верхнего ордовика; типовой вид известен из Скандинавии. Виды и открытые определения сообщались также из Северной и Южной Америки, Европы и Азии. Такой родовой диапазон объединяет разные виды и местные стратиграфические последовательности, а не одну непрерывную популяцию.
Разобщённость панцирей усложняет восстановление полного скелета. В коллекциях встречаются отдельные кранидии и хвостовые щиты, найденные в разных точках разреза. Даже при одинаковом названии материала не всегда установлено, что части принадлежали одному животному. Для датировки нужны сведения о вмещающей породе и сопутствующих ископаемых.
Трилобиты перемещались на членистых конечностях и линяли, но конкретный рацион Lonchodomas не подтверждён содержимым кишечника или следом питания. Слепота и форма панциря совместимы с донной жизнью взрослых, однако не определяют глубину, субстрат или скорость. Известный личиночный переход у L. chaziensis также показывает, что разные стадии могли занимать разные экологические ниши.
Частые вопросы
Когда жил Lonchodomas?
Род известен из ордовикских отложений. Его виды встречаются в разных региональных интервалах, поэтому возраст конкретной находки зависит от слоя и определения вида.
Для чего служил длинный передний шип?
Точная функция не установлена. Обсуждают защиту, опору, сенсорную роль и половой отбор, но ни одна гипотеза не доказана для рода напрямую.
Что известно о развитии Lonchodomas?
У L. chaziensis описаны две протаспидные стадии и первая мераспидная стадия. Через одну линьку форма головы резко менялась; результат нельзя автоматически переносить на все виды.
Чем питался этот трилобит?
Прямых данных о содержимом кишечника нет. Возможное донное питание остаётся предположением, а не установленным фактом.