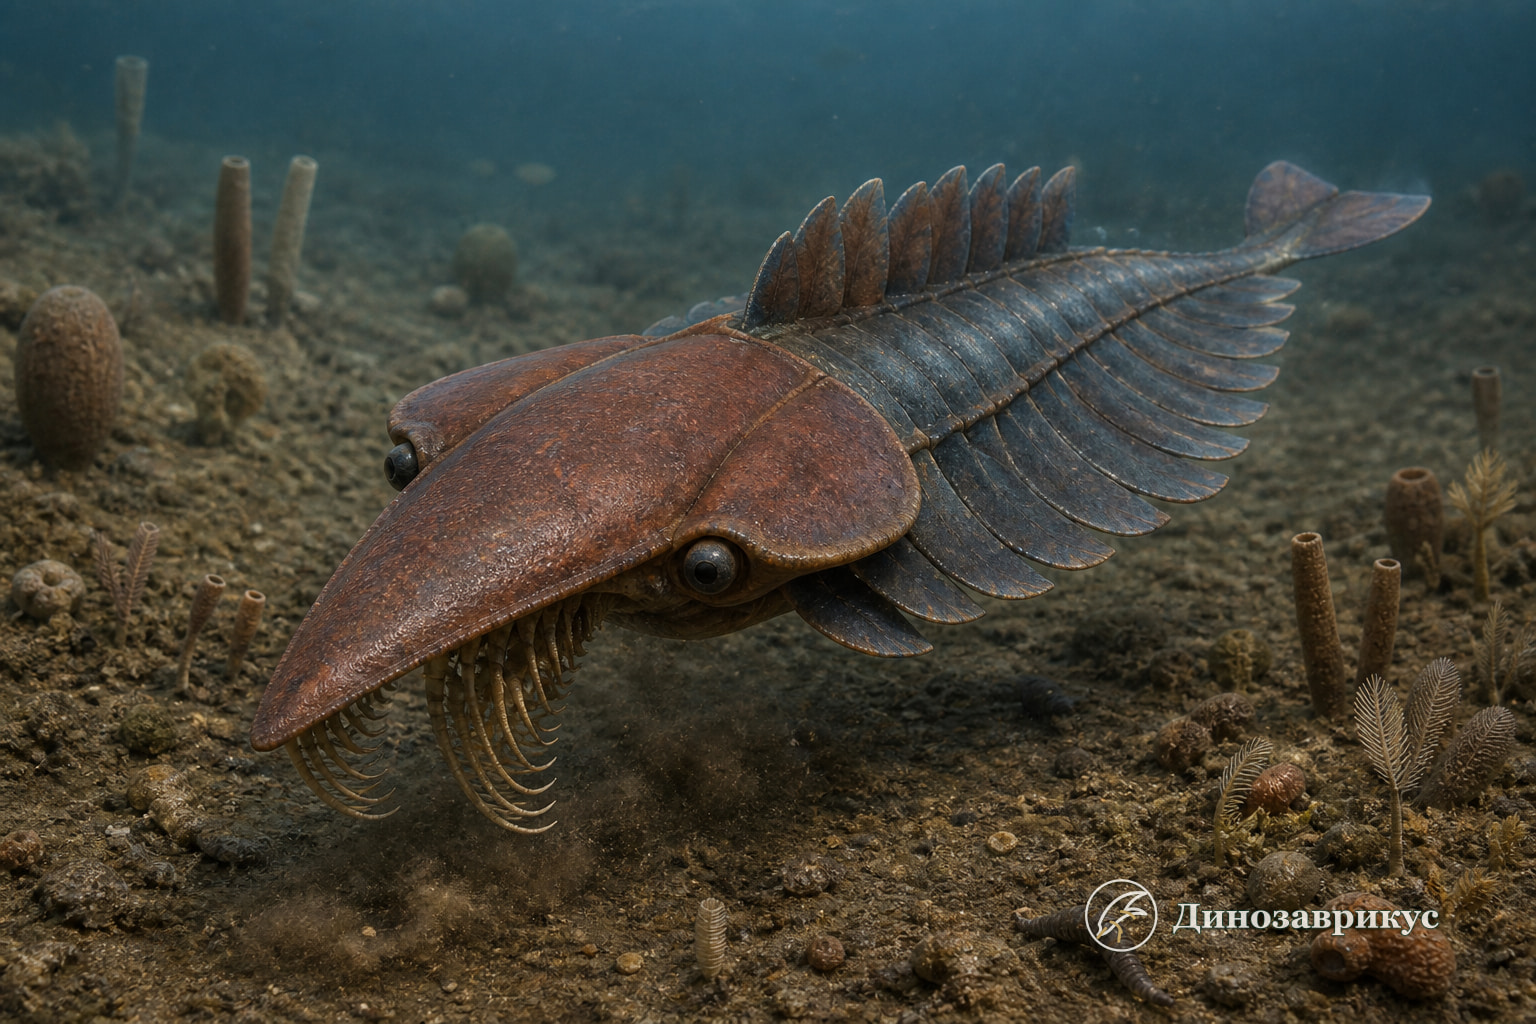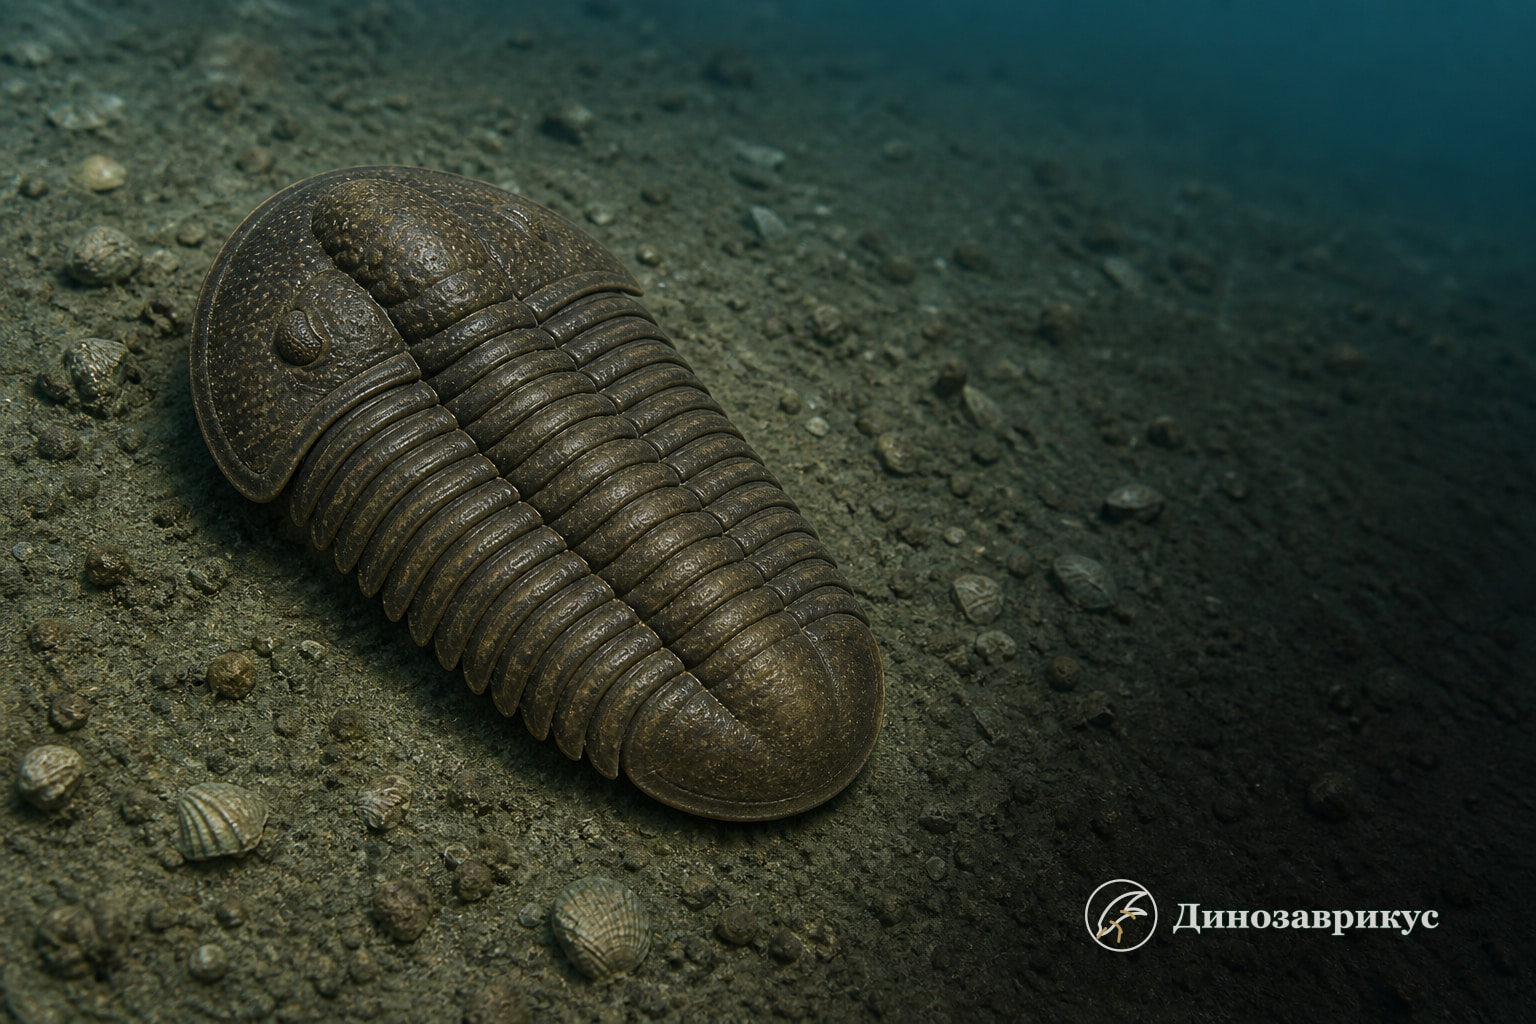
Прионохеилус (Prionocheilus) – род морских трилобитов, известный почти через весь ордовик. Большинство его окаменелостей представляет собой отдельные головные и хвостовые щиты, но два особенно информативных экземпляра раскрывают больше обычного. Норвежский P. narinosus сохранил почти весь наружный скелет, а у чешского P. vokovicensis внутри панциря остались структуры, истолкованные как средняя кишка с парными пищеварительными карманами.
Эти находки нельзя механически объединять в один «полный организм»: они относятся к разным видам, местонахождениям и геологическим интервалам. Вместе они показывают общий план тела рода, но число деталей, уверенно известных для каждого вида, различается.
Краткий профиль
| Параметр | Сведения |
|---|---|
| Научное название | Prionocheilus Rouault, 1847 |
| Типовой вид | Prionocheilus verneuili Rouault, 1847 |
| Группа | Trilobita, Calymenina, Pharostomatidae |
| Возраст рода | ордовик, от флоского до хирнантского века по пересмотренным находкам |
| География | пери-Гондвана, Балтика, Авалония, Казахстанские террейны и Китай |
| Хорошо сохранившийся панцирь | NRM Ar38163, P. narinosus, Шведский музей естественной истории |
| Мягкая анатомия | предполагаемые кишечник и дивертикулы у NML 35774, P. vokovicensis |
| Питание | напрямую не установлено |
| Основа реконструкции | минерализованный панцирь; конечности и окраска не сохранились |
Как появилось название
Пьер Руо установил Prionocheilus в 1847 году для P. verneuili из ордовика Армориканского массива во Франции. В том же году Игнац Гавле и Август Корда предложили название Pharostoma для близких трилобитов. Из-за почти одновременного появления имён и неясности ранних описаний в литературе долго применяли оба варианта.
Приоритет Prionocheilus защищали на том основании, что работа Руаула вышла раньше. Международная комиссия не закрепила подавление старшего имени, и в современных ревизиях Pharostoma обычно рассматривается как его младший синоним. Это номенклатурное решение не означает, что все когда-либо названные «фаростомы» автоматически входят в один хорошо очерченный видовой набор. Состав рода менялся, а часть видов по-прежнему требует сравнения по головному и хвостовому щитам.
Панцирь и признаки рода
Головной щит прионохеилуса широкий, с выпуклой глабеллой, заметными боковыми бороздами и глазами на щёчных участках. Наружная поверхность у разных видов несёт гранулы или бугорки. Перед глабеллой остаётся поле, пропорции которого, как и очертания переднего края, используются при различении видов.
Такой трилобит не был слепым, в отличие от тринуклеида ампикса. От широкого асафуса он отличается расчленённой глабеллой, скульптурой панциря и иным устройством хвостового щита. Эти сравнения полезны только на уровне общего плана: диагностировать вид по одному силуэту нельзя.
На почти полном NRM Ar38163 насчитано 13 грудных сегментов. Ось занимает около трети ширины груди, а наружные части плевр круто опускаются. Пигидий неполон сзади, но на его оси видны 11 поперечных борозд; первая и, слабее, вторая осевые части несут следы нефункциональных сочленовных полуколец. Экземпляр позволяет описать туловище P. narinosus, однако число сегментов нельзя без проверки переносить на каждый вид большого рода.
Норвежский экземпляр и его происхождение
NRM Ar38163 был собран Герхардом Хольмом в 1879 году на Рингосене в районе Рингерике. Точный слой при сборе не записали. По геологическому положению находку относят, вероятно, к верхней части Сольвангской формации, откуда происходят и известные кранидии вида из района Осло–Аскер.
До описания этого панциря P. narinosus был основан на трёх неполных кранидиях. Голотип PMO 81266 происходит из верхней части Сольвангской формации у Раудскьера. Новый материал показал грудь и пигидий, но не устранил всех таксономических вопросов: вид очень близок к P. foveolatum и отличается от него сочетанием пропорций передней части головы и более широкого короткого пигидия. Неполнота заднего края остаётся ограничением сравнения.
Сворачивание без готовой «капсулы»
Длинные сочленовные полукольца груди NRM Ar38163 давали сегментам значительную свободу наклона. По их форме исследователь заключил, что животное могло сильно сгибать тело. Это функциональный вывод из геометрии панциря, а не наблюдение полностью замкнутой позы: сам экземпляр не сохранился свернувшимся.
У флексикалимены известен иной, хорошо подогнанный механизм замыкания головы и хвоста. Прионохеилуса поэтому корректнее изображать способным к защитному сгибанию, не копируя позу калименид до мелочей. Мягкие мышцы, которые приводили сегменты в движение, у норвежской находки не сохранились.
Пищеварительные структуры из Чехии
Экземпляр P. vokovicensis NML 35774 происходит из Шарской формации Пражского бассейна и относится к дарривильскому веку среднего ордовика. В раннем кремнистом желваке уцелела часть длиной около 28 миллиметров. Передний край головы, задние сегменты и пигидий выходили за границы желвака и были разрушены позднейшими процессами.
В задней области глабеллы видны крупные парные лопастные полости. Более мелкие парные образования прослеживаются вдоль оси сохранившихся грудных сегментов по сторонам узкой средней структуры. Их положение и повторяемость позволили авторам определить центральную часть как кишечник, а боковые полости – как дивертикулы средней кишки.
Это не органическая ткань в первоначальном состоянии, а трёхмерные полости и минеральные заполнения внутри панциря. Интерпретацию поддерживает симметрия и соответствие расположению пищеварительного тракта других членистоногих. При этом находка не сохраняет содержимого, по которому можно было бы уверенно назвать пищу. Детритоядность, хищничество на мелких беспозвоночных и смешанный рацион остаются вариантами, а не установленными фактами.
Распространение и изменение ареала
Ревизованные находки прионохеилуса охватывают отложения от флоского до хирнантского века. Ранние представители особенно связаны с высокоширотными окраинами Гондваны. В позднем дарривилии и начале позднего ордовика род распространился в Балтику и Китай, а позднее появился в Авалонии и Казахстанских террейнах. Поэтому старое представление о нём как исключительно западноевропейском трилобите слишком узко.
В Пражском бассейне разные виды отмечены в нескольких формациях, но конкретную среду следует восстанавливать для каждого слоя. Норвежская Сольвангская формация представляет трансгрессивную морскую последовательность; верхняя часть в районе известных находок формировалась в сравнительно мелководной обстановке. Обобщение «обитал только на мелководье» для всего многомиллионного диапазона рода было бы необоснованным.
Прямо известны форма панциря, глаза, скульптура и у отдельных видов внутренняя пищеварительная структура. Ходильные ноги, ветви конечностей и усики восстанавливаются по другим трилобитам. Цвет, положение щетинок и поведение остаются художественными решениями. В каталоге древних членистоногих прионохеилус особенно ценен как редкий пример сочетания почти полного панциря одного вида и внутренней анатомии другого.
Частые вопросы
Какой вид является типовым для прионохеилуса?
Типовой вид – Prionocheilus verneuili, описанный Пьером Руо в 1847 году по материалу из ордовика Франции.
Сколько грудных сегментов было у прионохеилуса?
У почти полного экземпляра P. narinosus NRM Ar38163 насчитано 13 сегментов. Для остальных видов число нужно подтверждать отдельными сочленёнными панцирями.
Действительно ли у прионохеилуса найден кишечник?
У чешского P. vokovicensis сохранились симметричные внутренние полости, интерпретированные как средняя кишка и парные дивертикулы. Это минерально сохранённые следы структуры, а не мягкая ткань.
Что известно о питании прионохеилуса?
Конкретная пища неизвестна: в кишечных структурах нет надёжно определимого содержимого. Любая точная сцена кормления остаётся реконструкцией.