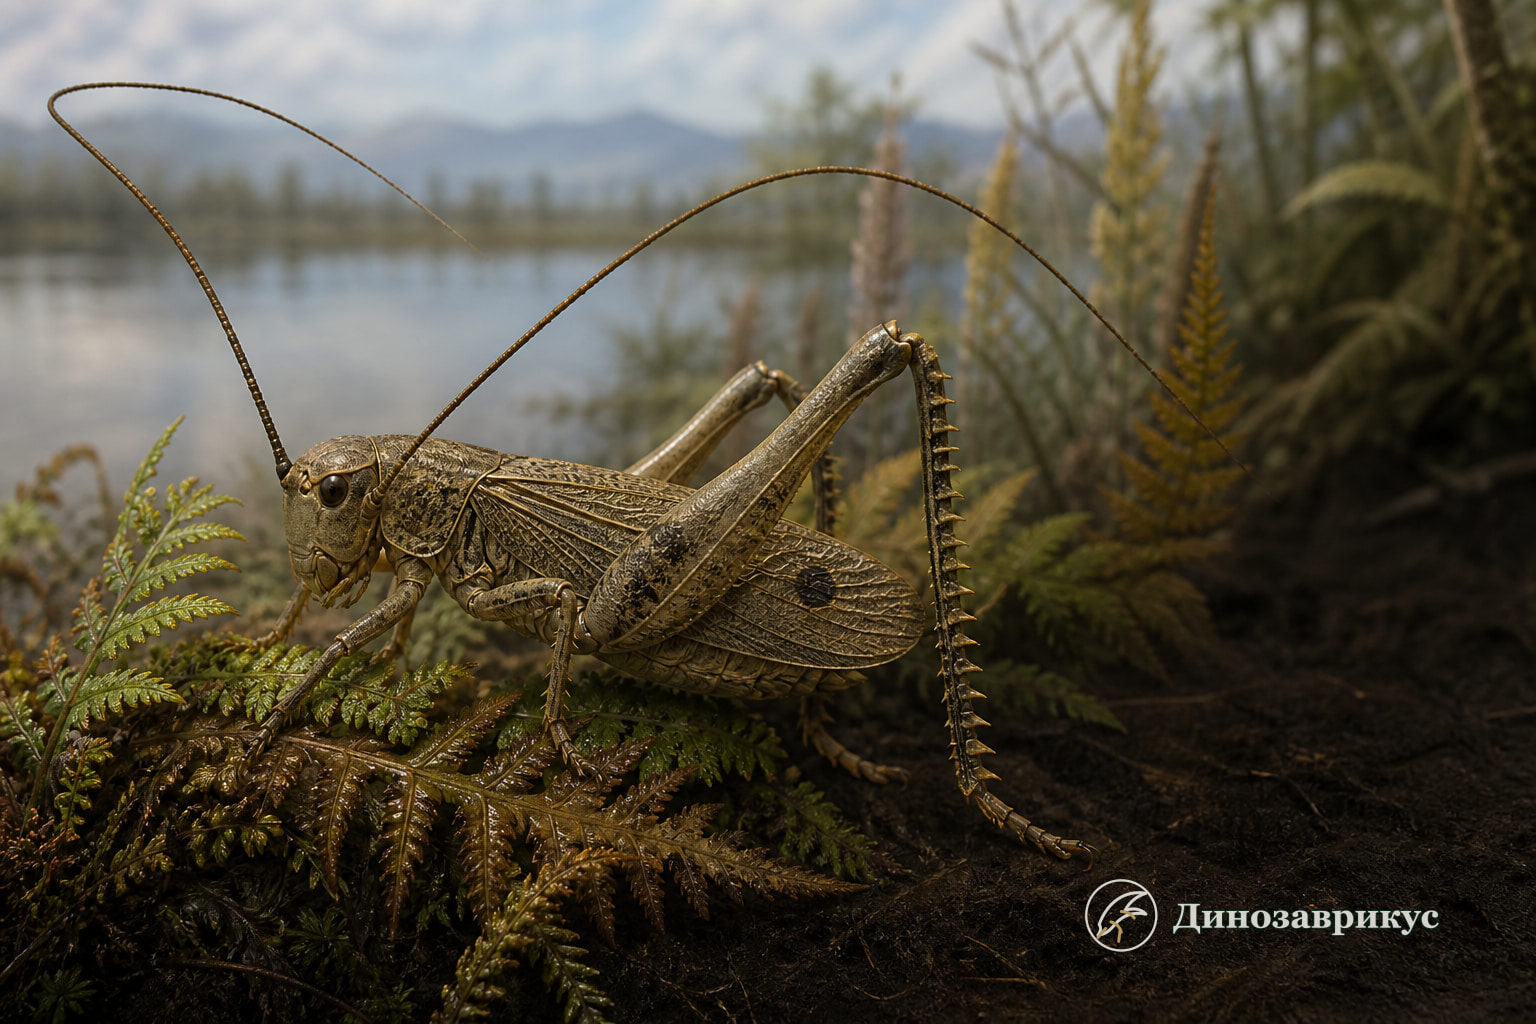
Панорпидий (Panorpidium) – род вымерших прямокрылых из семейства Elcanidae. Эти насекомые имели длинные нитевидные усики, жилкованные передние крылья и прыгательные задние ноги с рядами крупных сочленённых шпор. Элканиды не входят ни в одно современное семейство кузнечиков или саранчовых, поэтому внешнее сходство не превращает панорпидия в обычного кузнечика. В каталоге древних членистоногих он показывает особую мезозойскую ветвь Orthoptera, известную по отпечаткам и янтарным включениям.
Краткий профиль
| Параметр | Данные |
|---|---|
| Научное название | Panorpidium Westwood, 1854 |
| Типовой вид | Panorpidium tessellatum Westwood, 1854 |
| Группа | Orthoptera, Elcanoidea, Elcanidae, Elcaninae |
| Надёжный возраст рода | от берриаса до середины мела |
| Находки | Англия, Забайкалье, Китай, Корея и янтарь Мьянмы |
| Основной материал | отпечатки крыльев и тела, объёмные включения в янтаре |
| Отличительные признаки | жилкование переднего крыла и шпоры задней голени |
| Размер одного изученного крыла | 23,4 мм у P. yixianensis |
Первое описание по одному крылу
Джон Обадия Вествуд установил род и вид Panorpidium tessellatum в 1854 году. Голотип представляет собой переднее крыло из среднепурбекских слоёв Дерлстон-Бей в графстве Дорсет и хранится в лондонском Музее естественной истории. Позднейшая стратиграфия относит эту часть пурбекской последовательности к верхнему берриасу раннего мела.
Такой типовой материал задаёт важное ограничение. У P. tessellatum напрямую известны очертание и сеть жилок крыла, но не голова, ротовые части, усики или вся задняя нога. Цельный облик рода складывается из других видов, определённых по сходному жилкованию. Старые названия Elcana и Baisselcana в некоторых ревизиях сводили с Panorpidium, из-за чего агрегированные списки создают впечатление очень долгой истории рода. Надёжнее обсуждать хорошо описанные меловые экземпляры отдельно.
Что различают по крыльям
Переднее крыло, или тегмен, было узким и плотнее заднего. Систематики сравнивают ветвление ScP, RA, RP, M и кубитальных жилок, ширину промежутков между ними, поперечные жилки и тёмные участки крыла. Это не декоративные детали: при неполном теле именно комбинация жилок служит главным родовым и видовым признаком.
У P. yixianensis из формации Исянь голотип NIGP 159068 сохраняет часть груди, три правые ноги и крылья, а паратип NIGP 159069 – брюшко и крылья. Переднее крыло голотипа достигает 23,4 мм. Задняя голень длиной 12,9 мм несёт шпоры, крупнейшая из которых приближается к 4 мм. Эти значения измерены у конкретного вида и не задают единый размер для всего рода. Тёмное округлое поле на его крыле также нельзя автоматически переносить на английский типовой вид.
Корейский P. spica известен по трём экземплярам из нижнеальбской формации Чинджу. Обычная фотография плохо показывала часть жилок, поэтому исследователи применили картирование углерода методом волноводисперсионной спектрометрии. На картах стали различимы места ветвления RA и RP, а также некоторые элементы брюшка. Это прямой пример того, как химический сигнал ископаемого уточняет морфологию, не добавляя несуществующих частей.
Задние ноги с подвижными шпорами
У элканид заднее бедро было утолщено под прыгательную мускулатуру, а на голени располагались пары длинных шпор. Они были сочленены с голенью, а не являлись неподвижными выростами панциря. У разных видов шпоры варьировали от узких шипов до широких листовидных лопастей. На конце голени находились дополнительные шпоры, а на лапке могли располагаться короткие крепкие шипики.
Для P. spica листовидные шпоры сравнили с лопастями современных короткоусых прямокрылых Tridactylidae. Авторы предположили, что они помогали прыгать с поверхности воды и, возможно, погружаться при спасении. Наличие птеростигмы на крыле использовали в реконструкции особого режима короткого полёта. Это функциональный вывод из формы, а не сохранённое поведение: следовой дорожки или прямого наблюдения нет, и сами авторы не исключили другие функции шпор. Для узких шипов остальных видов водная модель тем более не доказана.
Янтарные тела и спорные границы рода
Качинский янтарь середины мела сохранил не плоский след, а тело с усиками, ногами и крыльями. Экземпляр YU-OR-100001 был описан в 2022 году как Panorpidium maculosum. У него ScP образует шесть ветвей, на задней половине голени стоят парные шиповидные шпоры, на вершине голени их три, а снизу первого членика задней лапки проходит ряд крепких шипиков. Совокупность крыла и ног стала основанием объединить прежний Burmelcana с Panorpidium.
Эта схема не стала окончательной. В 2025 году одна группа выделила для P. maculosum новый род Pseudopanorpidium по пропорциям заднего края тегмена и другим признакам. Другая работа того же года оставила вид в Panorpidium и описала сходный P. stenos как третий бирманский вид рода. Такое расхождение следует показывать как действующий таксономический спор, а не скрывать под единым списком. Янтарь великолепно сохраняет детали, но их значение для границы рода исследователи оценивают по-разному.
Образ жизни и границы реконструкции
Прыгательная задняя нога и две пары крыльев подтверждают способность взрослых насекомых к наземному прыжку и полёту. Длинные усики, вероятно, выполняли сенсорную функцию. Дальше уверенность снижается: ротовые части типового вида неизвестны, содержимого кишечника нет, а яйца и кладки не связаны с конкретным Panorpidium. Растительноядный, всеядный или иной рацион остаётся открытым вопросом.
Панорпидий жил в мезозое и не происходил от каменноугольной меганевры. Сравнение с наземной артроплеврой полезно лишь как контраст разных планов строения членистоногих, а морская телефина отделена от него сотнями миллионов лет и совершенно иной средой. Цвет тела на иллюстрации, поза усиков и конкретное растение под ногами остаются художественными решениями.
Частые вопросы
Когда жил панорпидий?
Надёжные виды рода происходят из меловых отложений: от верхнего берриаса Англии до середины мела Азии, примерно между 140 и 99 миллионами лет назад. Более древние записи требуют отдельной проверки синонимов и жилкования.
Зачем панорпидию нужны были шпоры на задних ногах?
Они участвовали в работе прыгательной конечности. Для широких лопастей предложено движение и прыжки по поверхности воды, но эта функция выведена из сравнения формы и не установлена для каждого вида.
Что известно о типовом виде Panorpidium tessellatum?
Он основан на одном переднем крыле из Дерлстон-Бей в Англии. Поэтому многие детали тела, часто показываемые в реконструкциях рода, получены по более полным видам из Китая, Кореи и мелового янтаря.
Почему состав рода остаётся спорным?
Разные исследования неодинаково оценивают диагностическую ценность жилок и пропорций крыла. Например, бирманский P. maculosum одни авторы оставляют в Panorpidium, а другие переносят в Pseudopanorpidium.