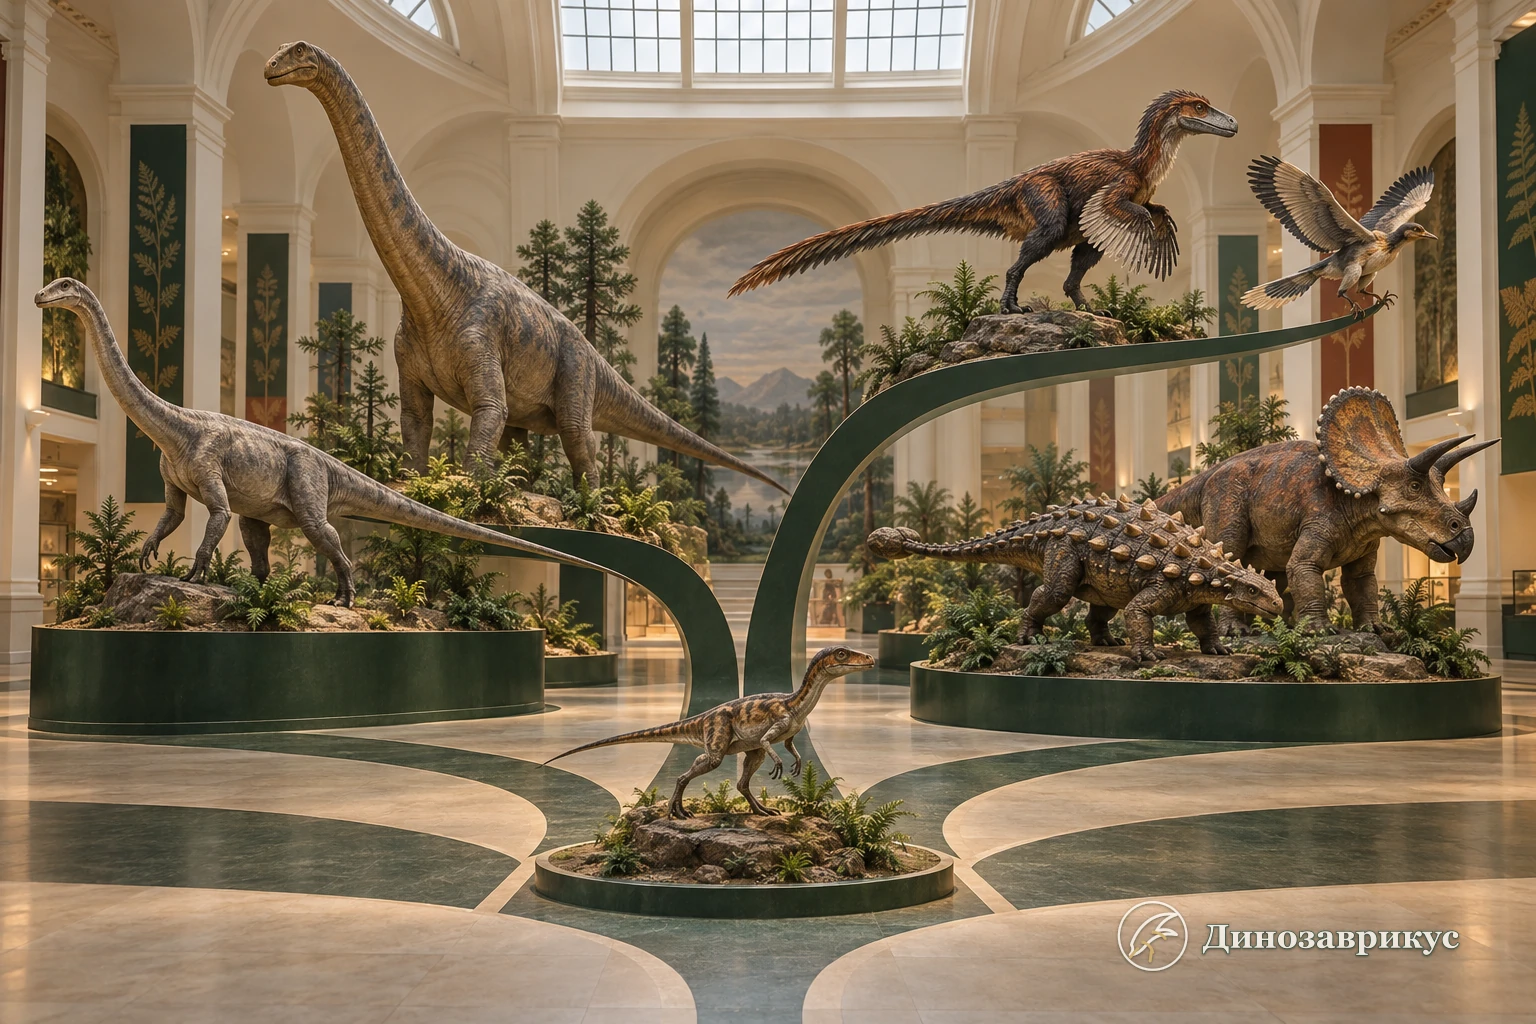
Динозавры, или Dinosauria, образуют ветвь архозавров, внутри которой появились тероподы, завроподоморфы, птицетазовые динозавры и современные птицы. Их классификация показывает родство, а не просто сходство по размеру, пище или внешнему виду. Длинная шея не делает любое животное зауроподом, клюв не объединяет всех клювоносых динозавров, а полёт не выводит птиц за пределы Dinosauria.
Самые крупные ветви дерева известны достаточно уверенно. Сложнее устроено его основание: разные анализы по-разному соединяют теропод, завроподоморфов и птицетазовых. Поэтому хорошая схема должна одновременно показывать устойчивые группы и область научного спора.
Краткая схема классификации
| Уровень | Группы и положение |
|---|---|
| Archosauria | Более широкая группа, включающая крокодиловую и птичью линии |
| Dinosauria | Все динозавры, включая птиц |
| Главные ранние линии | Theropoda, Sauropodomorpha и Ornithischia |
| Традиционная Saurischia | Theropoda + Sauropodomorpha |
| Ornithischia | Thyreophora, Ornithopoda, Marginocephalia и ранние боковые ветви |
| Живая ветвь | Aves внутри Theropoda |
| Главная неопределённость | Взаимное положение трёх ранних линий и некоторых триасовых форм |
Кладограмма выше статьи позволяет переключать три гипотезы основания Dinosauria и подсвечивать ветви, где известны перья, клювы, броня, рога, гигантские размеры и активный полёт. Она намеренно не превращает эволюцию в прямую лестницу.
Как читать эволюционное дерево
Каждая развилка на кладограмме обозначает гипотезу о последнем общем предке. Две ветви, выходящие из одного узла, ближе друг к другу, чем к ветви за пределами этого узла. Расстояние по горизонтали обычно ничего не говорит о времени, размерах тела или числе видов.
Название группы у конца линии также не означает, что известный род был прямым предком следующего. Archaeopteryx, велоцираптор и тираннозавр помогают сравнивать участки тероподного дерева, но их нельзя выстроить в цепочку «велоцираптор превратился в археоптерикса, а тот в современную птицу». У каждого были собственные предки и боковые родственники.
Клада и группа по внешности
Клада включает общего предка и всех его потомков. Если из неё произвольно убрать часть потомков, получается неполная, парафилетическая группа. Именно поэтому птицы входят в динозавров: они унаследовали место внутри тероподного дерева и не могут быть вынесены из него только потому, что пережили мел-палеогеновое вымирание.
Старые названия нередко объединяли животных по общему облику. «Прозауроподы» долго выглядели как ступень перед зауроподами, а «гипсилофодонтиды» собирали многих небольших двуногих птицетазовых. Новые матрицы признаков показали, что часть таких наборов состоит из нескольких последовательных ветвей.
Дерево не показывает прогресс
Ранняя ветвь не является примитивной в бытовом смысле. Она могла существовать десятки миллионов лет и приобрести сложные собственные приспособления. Современная птица не «выше» трицератопса, а лишь находится на единственной живой ветви мезозойского дерева динозавров.
От архозавров к Dinosauria
Динозавры относятся к птичьей линии архозавров, Avemetatarsalia. Птерозавры принадлежат к той же большой стороне архозаврового дерева, но образуют отдельную ветвь. Крокодилы находятся на другой главной линии. Плезиозавры, ихтиозавры и мозазавры ещё дальше и динозаврами не являются. Эти границы подробнее разобраны в статье «Динозавры и рептилии: чем они отличаются».
Среднетриасовый Teleocrater и другие ранние авеметатарзалии показывают, что характерный «динозавровый» набор не возник мгновенно. Часть особенностей задних конечностей, шеи и позвоночника складывалась раньше Dinosauria, а некоторые ближайшие родственники динозавров сохраняли неожиданное сочетание признаков.
Динозавроморфы включают самих динозавров и формы, более близкие к ним, чем к птерозаврам. Вокруг основания этой группы находятся лагерпетиды, марасух, силезавриды и другие триасовые животные. Их анатомия помогает определить, какие признаки появились до общего предка динозавров, а какие уже внутри Dinosauria.
Какими были первые динозавры
Самые ранние надёжные динозавры известны из позднего триаса, примерно 233–230 миллионов лет назад. Среди них встречаются небольшие и средние хищные формы, ранние завроподоморфы и животные со спорным положением. Африканский Mbiresaurus raathi представлен почти полным скелетом раннего завроподоморфа и подтверждает, что первые сообщества динозавров долго были связаны с определёнными климатическими поясами южной Пангеи.
Общий предок Dinosauria, вероятно, был сравнительно небольшим, наземным и двуногим, но конкретный известный род нельзя уверенно назначить этим предком. Эораптор, эрреразавр, эодромей и другие ранние формы дают разные наборы признаков и меняют положение в зависимости от матрицы и метода анализа.
Силезавриды особенно важны для происхождения птицетазовых. В традиционной трактовке это сестринская ветвь динозавров. Другая гипотеза распределяет их вдоль ствола Ornithischia, то есть считает последовательностью ранних птицетазовых форм. Такое решение частично заполняет загадочный ранний участок их летописи, но зависит от интерпретации зубов, челюстей, таза и конечностей. Более широкий фон этой эпохи дан в материале «Кем были предки динозавров».
Три главные линии
Большинство схем уверенно распознаёт три крупных ранних массива: Theropoda, Sauropodomorpha и Ornithischia. Спор идёт прежде всего о том, какие две ветви образуют ближайшую пару у основания Dinosauria.
Theropoda
Тероподы появились в триасе и сохраняются сегодня в виде птиц. Для ранних представителей характерны двуногое движение, полые кости, хватательная кисть и зубы хищного типа, но позднее внутри группы возникли беззубые клювы, растительноядность, всеядность, уменьшение тела и полёт.
Крупные ветви теропод включают цератозавров и тетанур. Внутри тетанур находятся мегалозавроиды, аллозавроиды и целурозавры. Целурозавры объединяют тираннозавроидов, орнитомимозавров, теризинозавров, овирапторозавров и манирапторовые линии рядом с птицами. Подробная схема приведена в обзоре «Тероподы».
Sauropodomorpha
Завроподоморфы прошли один из самых заметных переходов в истории наземных позвоночных. Ранние формы обычно были сравнительно лёгкими, могли передвигаться на двух ногах и имели хватательные кисти. В последующих ветвях тело стало массивнее, шея удлинилась, передние конечности приняли большую часть нагрузки, а кисть превратилась в опорную конструкцию.
Sauropoda находится внутри Sauropodomorpha. К зауроподам относятся крупные четвероногие формы с колоннообразными конечностями, длинной шеей и хвостом. Диплодокоиды и макронарии развивали разные пропорции шеи, черепа и туловища. Поэтому слова «завропод» и «завроподоморф» не равнозначны: первое обозначает более узкую вложенную ветвь. Её строение раскрыто в обзоре «Зауроподы: растительноядные гиганты».
Ornithischia
Птицетазовые динозавры в основном питались растениями. Их объединяют особенности челюстей и передняя предентарная кость, поддерживавшая клюв на нижней челюсти. Название связано с направлением лобковой кости, но сходное обращение лобка назад независимо возникло и у некоторых теропод, включая линию птиц.
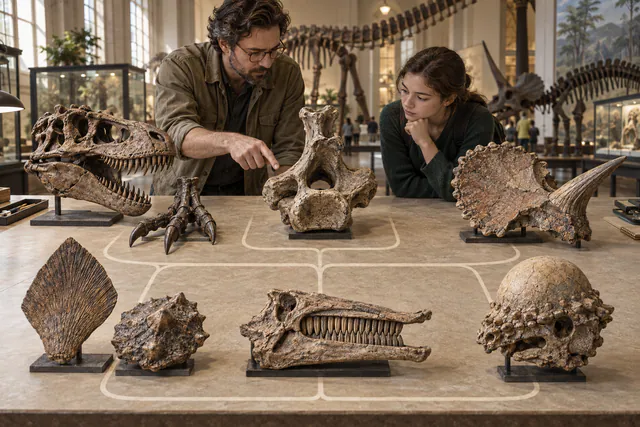
Ранние птицетазовые были небольшими двуногими животными. Позже внутри группы появились бронированные тиреофоры, быстрые и многочисленные орнитоподы, толстоголовые пахицефалозавры и рогатые цератопсы. Их общая анатомия и питание разобраны на странице «Птицетазовые динозавры».
Главные ветви Ornithischia
Thyreophora: броня, пластины и шипы
Тиреофоры приобрели кожные окостенения, остеодермы. У стегозавров они образовали крупные пластины вдоль спины и шипы на хвосте. У анкилозавров возник сложный покров из пластин и узелков, а в одной из поздних ветвей развилась хвостовая булава.
Броня менялась постепенно. Ранние тиреофоры не выглядели как уменьшенные анкилозавры: у них были более простые ряды остеодерм и менее специализированное тело. Отдельные костные пластинки известны также у некоторых титанозавров, но это независимое происхождение, а не свидетельство близкого родства с анкилозаврами.
Ornithopoda: от двуногих бегунов до гадрозавров
Орнитоподы включали небольших двуногих животных, игуанодонтов и гадрозаврид. В разных ветвях менялись положение тела, способность опираться на четыре конечности, строение кисти и зубных батарей. Гадрозавры могли одновременно использовать сотни сменяющихся зубов, перерабатывая растительную пищу сложными движениями челюстей.
Гребни ламбеозавриновых гадрозавров были полыми и связаны с носовыми ходами. Их нельзя приравнивать к рогам цератопсов: это другая структура, возникшая на другой ветви.
Marginocephalia: цератопсы и пахицефалозавры
Marginocephalia объединяет цератопсов и пахицефалозавров. Общий признак группы связан с костной полкой на заднем крае черепа. У цератопсов она развилась в воротник, а у поздних цератопсидов добавились крупные носовые и надглазничные рога. У пахицефалозавров крыша черепа утолщалась и у части форм превращалась в купол.
Рога не возникли сразу у общего предка всех птицетазовых. Ранние цератопсы вроде пситтакозавра имели клюв и изменённые скуловые области, но не несли набора длинных рогов трицератопса. Расположение признака на дереве не позволяет переносить позднюю специализацию на ранние формы.
Почему основание дерева остаётся спорным
В 1887 году Гарри Сили разделил известных динозавров на Saurischia и Ornithischia по строению таза. В современной традиционной схеме Saurischia объединяет теропод и завроподоморфов, а Ornithischia образует сестринскую ветвь. Эта топология долго была стандартом и продолжает получаться во многих матрицах.
В 2017 году анализ Мэттью Барона, Дэвида Нормана и Пола Барретта восстановил иную пару: Theropoda + Ornithischia. Для неё возродили название Ornithoscelida. Завроподоморфы и герреразавриды оказались на другой стороне раннего разделения. Повторная оценка той же матрицы другой группой исследователей вернула традиционную Saurischia, но также показала слабую разницу между конкурирующими решениями.
Обзор широкомасштабных связей Dinosauria 2024 года сравнил не одну «правильную картинку», а множество матриц, кодировок и методов. Из него следует осторожный вывод: большая часть дерева стабильна, но выбор признаков, состав таксонов и способ анализа всё ещё влияют на самую глубокую развилку.
Saurischia
В традиционной гипотезе тероподы ближе к завроподоморфам, чем к птицетазовым. Это сохраняет историческое содержание Saurischia и объясняет часть общих деталей кисти, шеи, позвоночника и таза. Неопределённость касается положения некоторых ранних форм и того, насколько эти признаки защищены от конвергенции.
Ornithoscelida
Здесь ближайшую пару образуют тероподы и птицетазовые. Гипотеза опирается на набор общих деталей черепа, конечностей и других частей скелета, которые раньше часто трактовали как независимые совпадения. Она остаётся научно допустимой, но не стала окончательной заменой традиционной схемы.
Ornithischiformes
В третьей конфигурации сближаются завроподоморфы и птицетазовые, а тероподы отделяются раньше. Такое дерево встречается реже. Его важность состоит не в популярности названия, а в том, что часть данных статистически не позволяет уверенно исключить этот вариант.
Что меняется, а что остаётся устойчивым
Перестановка трёх ранних ветвей не разрушает всю классификацию. Птицы остаются тероподами, зауроподы остаются завроподоморфами, анкилозавры и стегозавры остаются тиреофорами, а гадрозавры остаются орнитоподами. Меняется ближайшее родство самых крупных линий и реконструкция признаков их общего предка.
Как палеонтологи строят кладограммы
Исследователь составляет список животных и признаков, затем кодирует состояние каждого признака. В матрице могут учитываться форма отверстия в черепе, число позвонков, поверхность сустава, положение отростка таза или детали зубной эмали. Программа ищет деревья, которые объясняют распределение состояний с наименьшим числом изменений либо с наибольшей вероятностью при выбранной модели.
Неполные скелеты
У ранних динозавров часто отсутствуют целые участки черепа и конечностей. Пустая ячейка матрицы не равна отсутствию признака: она означает, что состояние неизвестно. Чем больше пропусков у ключевой формы, тем легче её положение меняется между допустимыми деревьями.
Кодировка признаков
Один исследователь может разделить форму кости на два состояния, другой на три. Возраст животного также важен: молодой череп может отличаться от взрослого настолько, что его ошибочно примут за отдельную ветвь. Повторное описание образца и компьютерная томография иногда меняют несколько кодировок сразу.
Выбор животных и методов
Добавление близкого родственника способно разбить длинную ветвь и уточнить переход признаков. Добавление фрагментарной формы может, наоборот, увеличить неопределённость. Анализы максимальной экономии и вероятностные методы по-разному обращаются с эволюционной скоростью и повторным возникновением признаков. Поэтому итоговое дерево всегда связано с опубликованной матрицей и её предпосылками.
Где появлялись перья
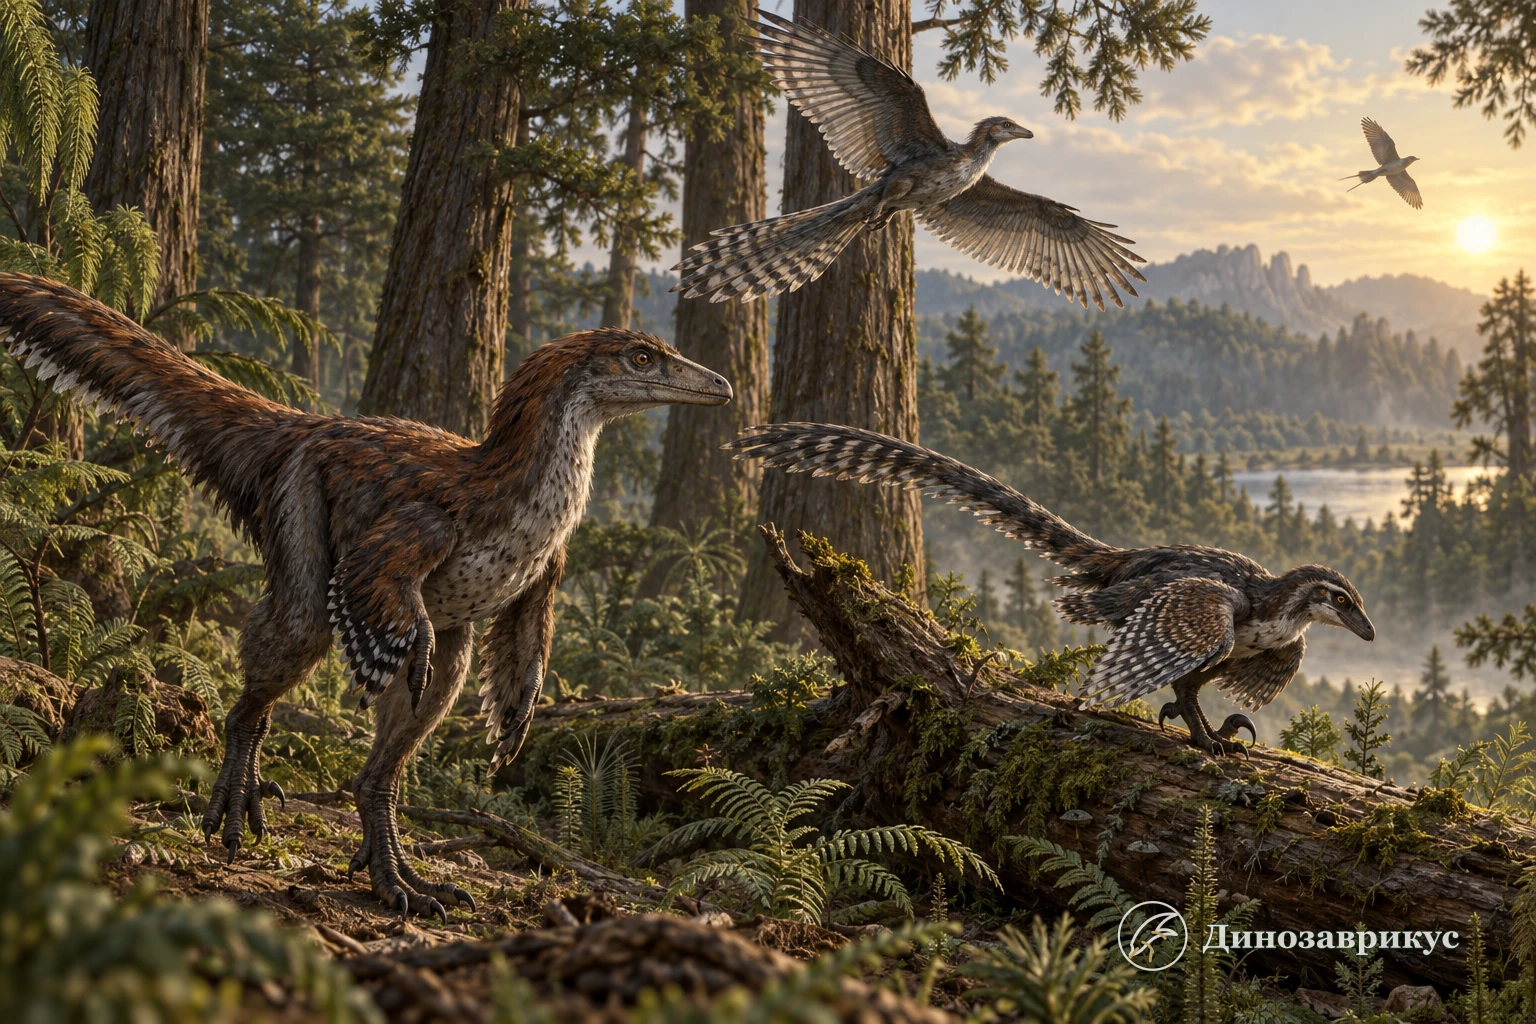
Сложные ветвящиеся перья напрямую известны у многих целурозавров, включая формы за пределами птиц. У манирапторов появились разнообразные контурные и маховые перья, а рядом с Avialae менялись плечевой пояс, кисть и аэродинамические поверхности. Подробности сохранности покровов собраны в статье «Перья, кожа и цвет динозавров».
Нитевидные структуры известны у птицетазовых Tianyulong, Psittacosaurus и Kulindadromeus. Их наличие расширяет набор возможных покровов, но не даёт единственного бесспорного ответа о теле общего предка Dinosauria. Спор о похожих структурах у птерозавров дополнительно показывает, что внешнее сходство, микроструктура и положение на дереве должны оцениваться вместе.
Клюв возникал несколько раз
Клюв является хорошим примером конвергенции. Предентарная кость поддерживала переднюю часть клюва у птицетазовых. Среди теропод беззубые участки челюстей и роговой покров независимо развились у орнитомимозавров, овирапторозавров, теризинозавров и птиц. Разные ветви использовали сходное решение для разных рационов.
Если подсветить клюв на кладограмме, отметки появятся не в одном узле. Это не ошибка схемы, а важный эволюционный результат: признак может возникать повторно, исчезать или сильно преобразовываться.
Броня, рога и украшения черепа
Костная броня наиболее последовательно прослеживается у тиреофор. Рога цератопсидов находятся внутри другой птицетазовой ветви. Гребни гадрозавров, купола пахицефалозавров, рога цератопсов и гребни тероподов возникали независимо и строились из разных костей.
При реконструкции важно различать происхождение и функцию. Костный вырост может участвовать в демонстрации, распознавании, защите или столкновениях, но его положение на дереве устанавливается анатомией, а назначение требует отдельного набора доказательств.
Как завроподы стали гигантами
Гигантские размеры появлялись в нескольких ветвях, но зауроподы довели их до крайнего уровня. Этому помогло сочетание длинной шеи, небольшой головы, пневматизированного скелета, эффективной вентиляции лёгких, яйцекладки и колоннообразных конечностей. Эти признаки возникали не одним скачком: ранние завроподоморфы фиксируют последовательное изменение опоры и пропорций.
Крупные тероподы и птицетазовые достигали больших масс независимо. Подсветка «гигантского тела» поэтому охватывает несколько ветвей, а не утверждает наличие огромного общего предка.
Как птицы помещаются внутри дерева
Птицы находятся внутри Maniraptora, затем внутри Coelurosauria, Theropoda и Dinosauria. С ними теропод связывает не один эффектный признак, а целый набор: вилочка, полые кости, строение кисти и стопы, воздушные полости, яйца, гнездовое поведение и последовательность изменений перьев.
Ранние авиалы не были одинаковыми. Одни сохраняли зубы и длинный костный хвост, другие имели укороченный хвост и более современный плечевой пояс. Мембранные крылья скансориоптеригидов показывают, что рядом с происхождением птиц существовали и боковые аэродинамические эксперименты. Почему живые птицы остаются динозаврами, подробно объясняет материал «Почему птицы считаются потомками динозавров».
Почему классификация меняется
Новый скелет может заполнить неизвестные ячейки матрицы. Пересмотр музейного образца может обнаружить ошибочно поставленную кость. Томография показывает внутренние полости, а гистология помогает отличать возрастные изменения. Иногда два названия оказываются одним родом, иногда материал под одним названием разделяют между несколькими животными.
Изменение позиции не означает, что прежняя работа была бесполезной. Научная классификация хранит проверяемую связь между образцом, кодировкой и результатом. Новая гипотеза должна объяснить данные лучше или показать, почему прежнее решение зависело от ошибки либо неполного набора.
Что известно надёжно
- Dinosauria входит в птичью линию архозавров.
- Птерозавры близки к динозаврам, но находятся за пределами Dinosauria.
- Theropoda, Sauropodomorpha и Ornithischia являются крупными ранними линиями.
- Sauropoda вложена в Sauropodomorpha.
- Stegosauria и Ankylosauria входят в Thyreophora.
- Hadrosauridae входит в Ornithopoda.
- Ceratopsidae входит в Ceratopsia.
- Aves входит в Maniraptora и Theropoda.
Что остаётся спорным
- Какая пара из трёх главных линий ближе у основания Dinosauria.
- Находятся ли силезавриды за пределами динозавров или вдоль ранней ветви Ornithischia.
- Где располагаются герреразавриды в разных матрицах.
- Как классифицировать отдельные фрагментарные триасовые формы.
- Насколько глубоко уходит единое происхождение нитевидных покровов.
- Какие ранние авиалы ближе всего к линии современных птиц.
Эта неопределённость локальна. Она требует показывать несколько допустимых оснований дерева, но не отменяет хорошо поддержанные ветви выше них.
Как пользоваться классификацией на сайте
Для поиска конкретного рода удобен каталог «Виды динозавров от А до Я». В карточке важно смотреть не только на привычное семейство, но и на более крупную вложенность. Например, тираннозаврид одновременно является тираннозавроидом, целурозавром, тероподом и динозавром.
При чтении старых книг полезно проверять, не используется ли историческая сборная группа. Названия «текодонты», «прозауроподы» и широкие «гипсилофодонтиды» могут быть удобны как описание облика или этапа истории науки, но не всегда обозначают одну полную кладу.
Классификация динозавров представляет ветвящуюся проверяемую гипотезу. Она позволяет увидеть, что птица находится внутри теропод, зауропод внутри завроподоморфов, а броня, клювы и рога появлялись на разных участках дерева. Самая честная современная схема показывает и устойчивое родство, и развилки, которые всё ещё проверяются новыми находками.
Частые вопросы
На какие группы делят динозавров
Три главные ранние линии – тероподы, завроподоморфы и птицетазовые. В традиционной схеме тероподы и завроподоморфы объединены в Saurischia, но альтернативные гипотезы иначе соединяют эти три ветви.
Почему птицы относятся к динозаврам
Птицы возникли внутри манирапторовых теропод. Это положение подтверждает набор признаков скелета, перьев, дыхательной системы, размножения и последовательность переходных ископаемых форм.
Какая схема основания Dinosauria правильная
Окончательного решения пока нет. Традиционная Saurischia, Ornithoscelida и реже Ornithischiformes получают разную поддержку в зависимости от матрицы, состава ранних животных и метода анализа.
Птерозавры и морские рептилии были динозаврами
Нет. Птерозавры были близкими родственниками динозавров внутри птичьей линии архозавров. Ихтиозавры, плезиозавры и мозазавры принадлежали к другим ветвям рептилий.