
Дромеозавр (Dromaeosaurus) – небольшой хищный теропод из семейства дромеозаврид. Его надёжные остатки происходят из кампанских отложений канадской провинции Альберта возрастом около 76–75 млн лет. Род дал название всему семейству Dromaeosauridae, но известен намного хуже, чем дромеозавриды с более полными скелетами: почти все прямые сведения о нём сосредоточены в голове.
Голотип включает неполный череп, нижние челюсти, подъязычные кости и несколько небольших элементов конечности. Туловище, хвост и сочленённые ноги отсутствуют. Поэтому глубокая морда и зубы известны по окаменелостям, а длина тела, покров и увеличенный коготь второго пальца восстанавливаются сравнением с родственниками. Полный музейный силуэт не следует принимать за полный найденный скелет.
Краткий профиль
| Характеристика | Данные |
|---|---|
| Научное название | Dromaeosaurus albertensis Matthew & Brown, 1922 |
| Группа | Тероподы, манирапторы, дромеозавриды, обычно Dromaeosaurinae |
| Период | Поздний мел, кампан, ориентировочно около 76–75 млн лет назад |
| География | Район реки Ред-Дир, Альберта, Канада; тип обычно связывают с формацией Дайносор-Парк |
| Длина | Ориентировочно 2–2,6 м |
| Масса | Примерно 15–25 кг, оценка по неполному материалу |
| Питание | Плотоядное |
| Передвижение | Двуногое |
| Основные виды | Надёжно признаётся один вид – D. albertensis |
| Качество материала | Неполный череп, нижние челюсти, подъязычные кости, несколько элементов конечности, отдельные фрагменты черепа и зубы |
Название и история открытия
Название Dromaeosaurus образовано от греческих слов, которые обычно переводят как «бегущий ящер». Видовой эпитет albertensis указывает на Альберту, где был найден типовой экземпляр. Само имя не является доказательством исключительной скорости: оно отражает представления исследователей начала XX века о лёгком двуногом хищнике.
Барнум Браун обнаружил основной образец в 1914 году у реки Ред-Дир. Находка хранится в Американском музее естественной истории под номером AMNH FARB 5356. Уильям Диллер Мэтью и Браун назвали Dromaeosaurus albertensis в 1922 году. Их краткое описание прямо предупреждало, что верх черепа фрагментарен, а препарат ещё не завершён, поэтому диагноз в будущем мог измениться.
Первичная работа указывала широкое старое подразделение Belly River. В современной стратиграфии тип обычно связывают с формацией Дайносор-Парк, однако старые полевые данные не позволяют приписать отдельной кости точный радиометрический возраст. Новая датировка горизонтов формации очерчивает интервал её накопления, а не дату смерти голотипа.
В 1969 году Эдвин Колберт и Дейл Рассел подробно переописали череп и сохранившиеся элементы конечности. Ещё одно важное исследование появилось в 1995 году после дополнительной препаровки голотипа. Она исправила несколько ранних представлений о строении черепа, включая ошибочные выводы об отсутствии межзубных пластинок и чрезмерной пневматизации костей. История изучения дромеозавра показывает, почему старые рисунки и диагнозы нельзя автоматически считать окончательными.
Современная классификация
Дромеозавр относится к целурозаврам, манирапторам и паравесам. Внутри Dromaeosauridae его обычно помещают среди наземных эудромеозавров в Dromaeosaurinae. Это типовой род семейства: название Dromaeosauridae образовано от Dromaeosaurus по правилам зоологической номенклатуры, а не потому, что он был крупнейшим или лучше всех изученным представителем.
Точное положение внутри эудромеозавров меняется вместе с выбором признаков и таксонов. Одни матрицы объединяют дромеозаврин в преимущественно североамериканскую ветвь, другие перестраивают отношения между Dromaeosaurus, ютараптором, ахиллобатором и соседними формами. Устойчив общий вывод: это дромеозаврид, а не прямой предок птиц и не ранний тираннозавроид.
Виды рода и спорные названия
Надёжно признаваемым видом рода остаётся Dromaeosaurus albertensis. Его диагностические особенности основаны прежде всего на строении черепа и челюстей голотипа. Других хорошо подтверждённых видов с сопоставимым материалом нет.
В XX веке к Dromaeosaurus относили несколько названий, основанных на отдельных зубах или очень фрагментарных остатках. Среди них встречались комбинации D. laevifrons, D. cristatus, D. gracilis, D. minutus и другие. Последующие исследования показали, что часть такого материала принадлежит иным группам теропод, а часть слишком неполна для уверенного определения рода. Поэтому старые списки из множества «видов дромеозавра» не отражают современную систематику.
Отдельные зубы, похожие на зубы дромеозаврин, находили и за пределами типового района. Однако зубы небольших хищных теропод нередко сходны по пропорциям и зазубренности. Открытие более полного черепа заурорнитолеста уже показало, что некоторые изолированные зубы можно было определять неверно. Без связанных костей расширять географический и временной диапазон именно Dromaeosaurus рискованно.
Какие окаменелости найдены
Голотип AMNH FARB 5356 сохраняет значительную часть черепа, обе ветви нижней челюсти, две подъязычные кости и несколько небольших элементов конечности, исторически описанных как кости стопы. Их точное положение обсуждалось уже ранними исследователями. Восстановленная длина черепа составляет около 23–24 см. Верх черепа и почти весь посткраниальный скелет отсутствуют.
Позднее к роду относили отдельные части черепа и зубы из Альберты. Они помогают подтвердить некоторые особенности челюстей, но не превращают дромеозавра в хорошо известного по всему скелету динозавра. Число уверенно определяемых экземпляров невелико, а сам род, вероятно, был редок в выборке формации по сравнению с некоторыми другими мелкими тероподами.
Особенно хорошо изучены зубные ряды и глубокая нижняя челюсть. В каждой верхнечелюстной кости было около девяти зубов, а в каждой зубной кости нижней челюсти – около одиннадцати. Зубы были загнутыми назад, с режущими краями и мелкими зубчиками. После повторной препарации выяснилось, что некоторые детали, приписывавшиеся ранними авторами, были результатом неполной очистки или неверной интерпретации.
Размеры и строение тела
По распространённым реконструкциям дромеозавр достигал примерно 2–2,6 м в длину. Массу обычно оценивают приблизительно в 15–25 кг. Эти значения нельзя воспринимать как измерение готового скелета: туловище, хвост и большая часть конечностей неизвестны, поэтому расчёты зависят от пропорций других дромеозаврид и от методов масштабирования по черепу.
Прямые данные показывают, что голова была относительно короткой и глубокой. Нижняя челюсть выглядела прочнее, чем у более длинномордых родственников. Шея, туловище, длинный жёсткий хвост и хватательные передние конечности обычно восстанавливаются по общему плану строения дромеозаврид. Такое сравнение обоснованно для базовой анатомии, но не позволяет утверждать, что каждая пропорция совпадала с велоцираптором, дейнонихом или другими лучше известными формами.
На втором пальце стопы у эудромеозавров находилась увеличенная когтевая фаланга. У Dromaeosaurus этот признак обоснован его положением внутри семейства, но сочленённая стопа с таким когтем не найдена. Поэтому размер и форма когтя в изображениях заимствуются у лучше известных родственников, прежде всего у дейнониха, а не измеряются по полному экземпляру самого дромеозавра.
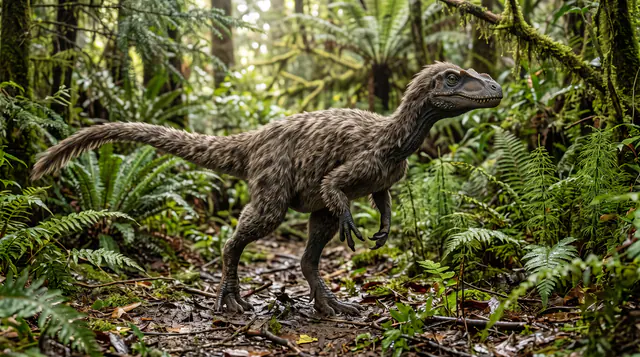
Прямых отпечатков кожи или перьев Dromaeosaurus не обнаружено. Перья известны у близких паравиальных теропод, а костные бугорки для крепления перьев сохранились у велоцираптора. Поэтому перьевой покров у дромеозавра является сильным сравнительным выводом. Его цвет, рисунок и длина перьев не установлены.
Череп, зубы и возможная сила укуса
Главная особенность дромеозавра – массивная для его размеров голова. Глубокая морда, крепкая нижняя челюсть и крупные загнутые зубы отличают его от многих более длинномордых родственников. Модель, основанная на реконструированной площади приводящих мышц, дала оценку укуса около 885 Н. Это выше рассчитанного тем же методом значения для дейнониха, но остаётся результатом цифровой реконструкции мышц, а не прямым измерением.
Исследование нагрузок на зубы также показало, что зубной аппарат дромеозавра выдерживал сильное прокалывание и последующее протягивание через ткань. Режущие кромки имели зубчики с обеих сторон, а межзубные пластинки отделяли соседние альвеолы. Повторная препарация голотипа выявила эти пластинки и опровергла старое представление об их отсутствии.
Это не означает автоматически «дробление костей» в стиле крупных тираннозаврид. Модель показывает функциональную способность, а не конкретный эпизод питания. Сильный укус мог помогать удерживать сопротивляющуюся добычу, отрывать ткани, разделывать тушу или конкурировать за пищу. Какая из этих задач была главной, окаменелости пока не позволяют установить. Следов укусов, содержимого желудка или добычи, непосредственно связанной с дромеозавром, недостаточно для узкой пищевой специализации.
Среда обитания, питание и возможное поведение
Формация Дайносор-Парк сформировалась на речной и прибрежной равнине у западного берега внутреннего моря. Русла, поймы и заболоченные участки поддерживали разнообразную фауну позднего мелового периода. Дромеозавр сосуществовал с крупными тираннозавридами и другими небольшими хищными тероподами, но различия в размере и устройстве челюстей могли уменьшать прямую конкуренцию между ними.
Зубы и челюсти уверенно указывают на плотоядность. Возможной пищей могли быть мелкие позвоночные, молодые динозавры и части туш более крупных животных. Это перечень экологически правдоподобных вариантов, а не содержимое конкретного желудка. По одному строению черепа нельзя определить точный размер обычной добычи.
Стайная охота дромеозавра не доказана. Нет группы особей вокруг добычи, совместной следовой дорожки или иной находки, показывающей координированное нападение. Неизвестны также скорость бега, суточная активность, звуки, брачное поведение и забота о потомстве. Глубокий череп отличал дромеозавра от более стройного заурорнитолеста, но сам по себе не раскрывает социальную систему.
Старые ошибки и популярные мифы
Самая заметная ошибка связана с полными музейными скелетами. Такие экспозиции полезны для показа предполагаемого облика, но большая часть туловища восстановлена по близким родственникам. Полного скелета Dromaeosaurus albertensis не существует, поэтому поза и пропорции монтажа не равны прямой находке.
Вторая ошибка – изображение крупного голокожего «раптора». Дромеозавр был значительно меньше большинства киношных хищников с таким обликом. Перьевой покров весьма вероятен по родству, хотя непосредственно у этого рода не сохранился. Из этого нельзя выводить конкретную окраску или сложные перьевые украшения.
Третий миф – обязательная охота стаей на крупных травоядных. Сильный череп не доказывает ни размер предпочитаемой добычи, ни коллективную тактику. Так же осторожно следует относиться к утверждениям, будто серповидный коготь служил исключительно «кинжалом». Функция увеличенного когтя у дромеозаврид обсуждается и могла включать удержание добычи, фиксацию и другие нагрузки.
Наконец, перевод имени как «бегущий ящер» иногда превращают в точную характеристику скорости. Ни следовая дорожка, ни полный комплект конечностей, позволяющий надёжно рассчитать максимальный бег, для дромеозавра не известны. Быстрое двуногое передвижение правдоподобно, но численные значения скорости были бы спекуляцией.
Итог
Дромеозавр важен не количеством находок, а качеством сохранившейся части черепа и своим местом в истории систематики. Это небольшой позднемеловой хищник из Альберты с глубокой мордой, крепкими челюстями и одним надёжным видом – Dromaeosaurus albertensis. Почти всё, что выходит за пределы головы и нескольких костей стопы, требует сравнения с родственниками, поэтому корректная реконструкция должна ясно отделять окаменелости от вероятных дополнений.
Частые вопросы
Когда и где жил дромеозавр?
Он жил в кампанском веке позднего мела на территории современной Альберты, ориентировочно около 76–75 млн лет назад. Точный возраст голотипа уже диапазона дат, полученных для всей формации.
Что действительно найдено от дромеозавра?
Голотип AMNH FARB 5356 включает неполный череп, нижние челюсти, две подъязычные кости и несколько элементов конечности. Полного туловища, хвоста и сочленённых ног у рода нет.
Был ли дромеозавр покрыт перьями?
Прямых отпечатков покрова нет. Перья весьма вероятны по родству с оперёнными паравесами, но их цвет, длина и распределение на теле неизвестны.
Почему дромеозавр дал имя целому семейству?
Он является типовым родом Dromaeosauridae. По правилам номенклатуры название семейства образуется от типового рода и не зависит от размера, полноты скелета или популярности животного.