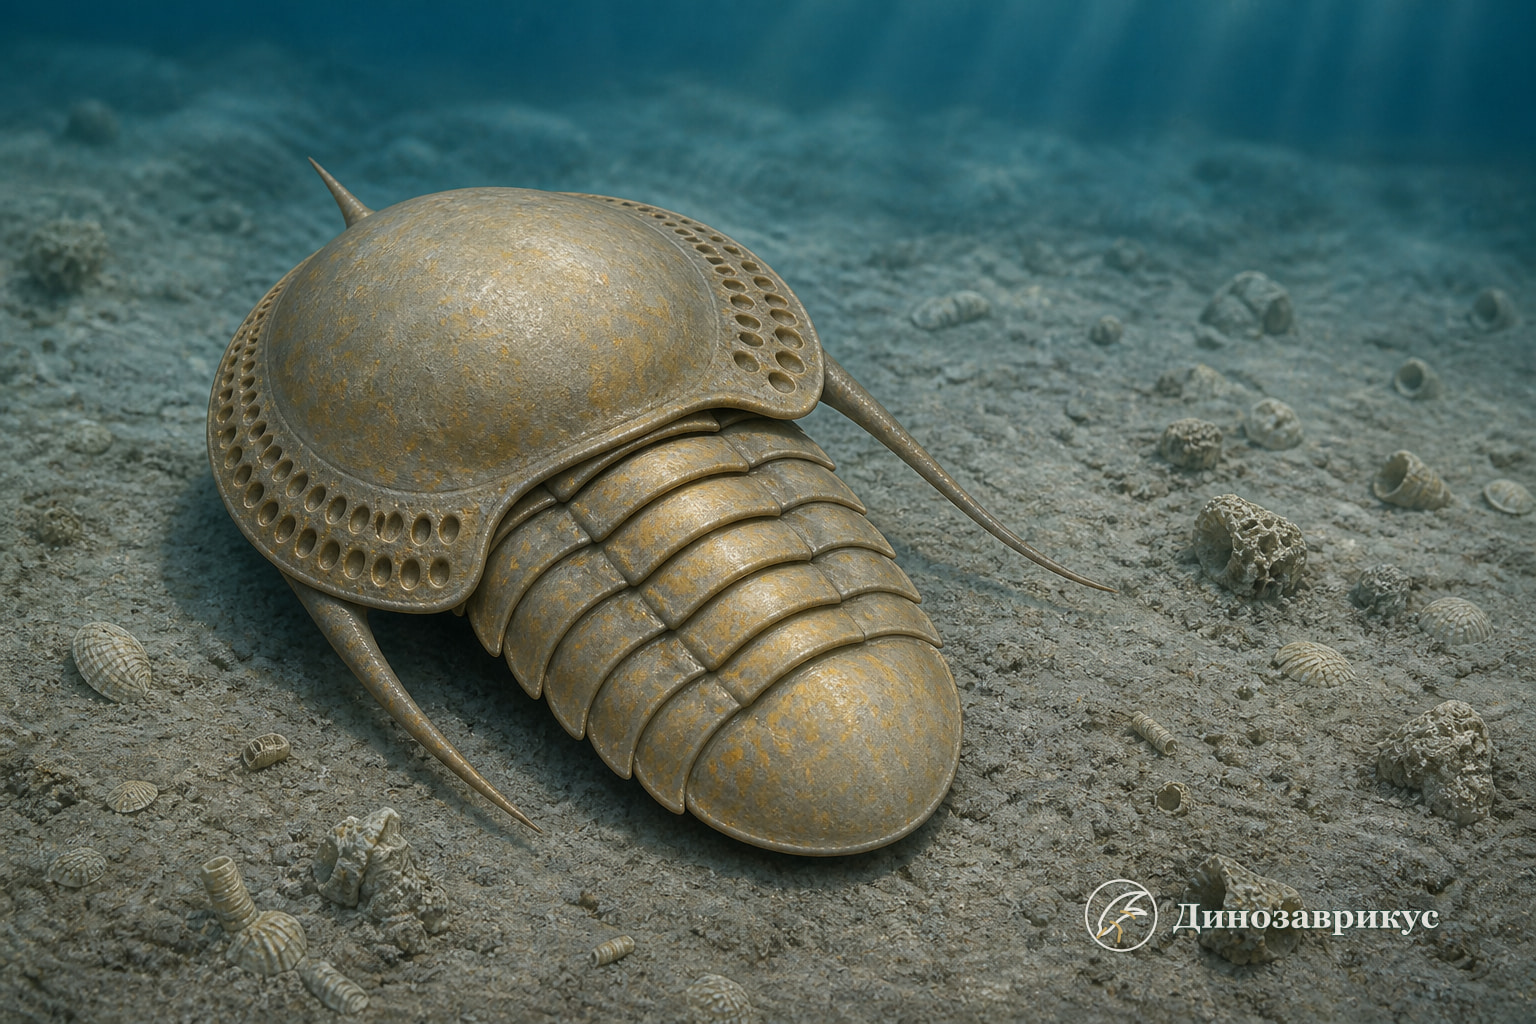
Криптолитус (Cryptolithus) – небольшой слепой трилобит семейства Trinucleidae, обитавший в ордовикских морях. Его голова окружена широкой двухслойной каймой с рядами воронкообразных отверстий. Крепкие головные щиты встречаются значительно чаще целых панцирей, поэтому именно кайма стала главным источником сведений о систематике, росте и предполагаемом образе жизни рода.
Лучше всего исследован североамериканский типовой вид Cryptolithus tesselatus. КТ-модели кремнезамещённых голов показывают, что отверстия действительно проходят через соединённые верхнюю и нижнюю пластинки. Но ни сложность этой конструкции, ни отсутствие глаз сами по себе не доказывают конкретный способ питания.
Краткий профиль
| Параметр | Сведения |
|---|---|
| Научное название | Cryptolithus Green, 1832 |
| Типовой вид | Cryptolithus tesselatus Green, 1832 |
| Группа | Trilobita, Trinucleidae |
| Возраст типового вида | средний и поздний ордовик востока Северной Америки |
| Зрение | глаза отсутствовали |
| Грудь взрослой особи | 6 подвижных сегментов |
| Размер музейных экземпляров | полный гипотип MCZ 143757 имеет длину 16 мм; отдельные головы шире |
| Главный признак | двухслойная кайма с рядами сквозных воронкообразных ямок |
| Питание | донный сбор мелких частиц или фильтрация предполагаются, но не доказаны напрямую |
| Сохранность | многочисленные головы, редкие сочленённые панцири, известны кремнезамещённые стадии роста |
Название, типовой вид и неотип
Джейкоб Грин ввёл Cryptolithus и C. tesselatus в 1832 году. Первичное описание соответствовало практике ранней палеонтологии: оно не располагало серией тщательно препарированных стадий роста и современным набором диагностических признаков. Позднее к роду добавили несколько североамериканских видов, часто различая их по числу дуг отверстий на кайме.
Повторное изучение материала из всех основных районов восточной Северной Америки показало проблему этого подхода. Число дуг варьирует внутри популяций и иногда даже на левой и правой сторонах одного панциря. В ревизии Фредерика Шоу и Пьера Лесперанса для типового вида был назначен неотип, а варианты расположения ямок предложено обозначать как морфы, а не автоматически считать самостоятельными видами.
Иными словами, рисунок каймы важен, но один подсчёт рядов недостаточен. Нужны сочетания пропорций головы, стратиграфического положения и изменчивости серии экземпляров. Старые названия C. lorettensis и Trinucleus bellulus в североамериканских списках рассматриваются в связи с этой широкой изменчивостью C. tesselatus.
Голова без глаз
Глабелла криптолитуса высокая и гладкая, с очень слабо выраженными боковыми бороздами. Зрительных поверхностей по сторонам нет. Сзади на затылочном кольце расположен срединный шип, нависающий над передними сегментами груди, а от углов головы отходят длинные щёчные шипы.
Кайма состоит из верхней и нижней пластинок, между которыми остаётся полость. КТ-сканы показали, что воронки обеих пластинок соприкасаются узкими основаниями, создавая настоящие сквозные каналы. Поэтому тёмные точки на поверхности не являются простой орнаментацией или следами разрушения.
Сходная перфорированная конструкция встречается у ампикса и лонходомаса. Родство тринуклеидов отражается в общем плане, но криптолитус отличается деталями глабеллы, каймы, шипов и хвостового щита. От зрячего асафуса он резко отличается не только отсутствием глаз, но и очень короткой грудью.
Грудь, хвост и размеры
У взрослого C. tesselatus было шесть грудных сегментов. Короткий пигидий округлён и намного шире своей длины. Вместе с большой головой такая конструкция придавала телу необычные пропорции: головной щит доминировал над небольшим туловищем.
Музейный гипотип MCZ 143757 имеет длину 16 миллиметров. У MCZ 146480 ширина головы с реконструированными грудью и пигидием указана как 21,5 миллиметра. Эти конкретные измерения надёжнее неопределённой фразы о «среднем размере рода», потому что полный диапазон зависит от вида, стадии роста и того, включены ли длинные щёчные шипы.
Большинство находок представлено отделёнными головами. Они могли принадлежать как погибшим животным, так и сброшенным при линьке покровам. Поэтому залежь цефалонов не равна такому же числу особей и сама по себе не свидетельствует о стае или массовой гибели.
Как формировалась кайма
Мелани Хопкинс и Кирк Пирсон исследовали 27 кремнезамещённых голов из одного блока известняка Мартинсбергской формации в Виргинии. Длина голов без затылочного шипа составляла от 0,5 до 9 миллиметров, что позволило охватить ранние и взрослые стадии. Объёмные модели получали КТ-сканированием, а изменение формы оценивали геометрической морфометрией.
В первых мераспидных стадиях число полных концентрических дуг быстро возрастало: последовательно появлялись одна, две и три дуги. Дополнительные ямки затем достраивались с заднего края. Когда набор в основном сформировался, животное продолжало расти, а размеры отдельных отверстий увеличивались.
Голова взрослела не простым пропорциональным увеличением. Кайма становилась выше и выпуклее, особенно сзади, срединная арка усиливалась, а открытая камера под головой увеличивалась. Скорость изменения формы заметно снизилась после прекращения добавления новых ямок, хотя сегменты груди ещё могли продолжать появляться. Это различие показывает, что этапы формирования каймы и туловища не были синхронны.
Что могла делать перфорированная кайма
Для каймы предложено несколько функций. Классическая модель фильтрационного питания предполагает, что конечности поднимали осадок и создавали поток. Вода с мелкими частицами проходила возле груди в камеру под головой и выходила через отверстия. Форма каналов и увеличение камеры при росте совместимы с такой схемой.
Однако совместимость не равна прямому доказательству. У криптолитуса не найдено содержимое кишечника, которое подтверждало бы определённый рацион. Молодые особи имели значительно менее выпуклую камеру, поэтому, даже если взрослые использовали её для сортировки частиц, эффективность и способ кормления могли меняться с возрастом.
Другие гипотезы связывают кайму с чувствительной мембраной, размещением органов пищеварения, работой в рыхлом иле или опорой при частичном закапывании. Предлагалось и механическое облегчение головы, но увеличение площади минерализованной поверхности вокруг многочисленных воронок не делает такую трактовку очевидной. Экспериментальные и морфометрические работы пока не дали единственного объяснения, исключающего остальные.
Дно, следы и пределы реконструкции
Криптолитуса обычно восстанавливают как донного обитателя мягкого грунта. Этому соответствуют отсутствие глаз, широкая опорная кайма и следовые структуры, которые связывали с тринуклеидами. Модель предполагает ограниченную ходьбу, движение в самом верхнем слое осадка и возможность быстро распрямлять грудь. Но конкретный след редко можно безоговорочно привязать к одному роду, поэтому детали зарывания остаются выводом.
Твёрдый панцирь прямо сообщает форму головы, шести сегментов и пигидия. Двувествистые ноги, усики и ротовые придатки реконструируются по редким трилобитам с мягкой сохранностью и историческим анатомическим моделям. Расположение крупных пищеварительных желёз внутри каймы было предложено в функциональной реконструкции, но не обнаружено как орган у C. tesselatus. Цвет, щетинки и положение животного во время кормления неизвестны.
В каталоге древних членистоногих криптолитус показывает, как сочетание серий роста и трёхмерной визуализации меняет представление о давно известном панцире: отверстия формировались рано, а объёмная форма головы продолжала перестраиваться позднее.
Частые вопросы
Был ли криптолитус слепым?
Да. На его головном щите нет зрительных поверхностей. Отсутствие глаз подтверждается многочисленными экземплярами, а не является следствием плохой сохранности.
Сколько сегментов было в груди криптолитуса?
У взрослого Cryptolithus tesselatus было шесть подвижных грудных сегментов между головой и коротким широким пигидием.
Фильтровал ли криптолитус воду через отверстия?
Это одна из основных функциональных моделей, и сквозное строение ямок ей соответствует. Прямого содержимого кишечника или единственного решающего опыта нет, поэтому фильтрация остаётся гипотезой.
Почему по числу рядов ямок нельзя надёжно назвать вид?
Количество дуг менялось при росте, варьировало внутри популяций и могло различаться на двух сторонах одного панциря. Для определения нужны дополнительные признаки и стратиграфический контекст.