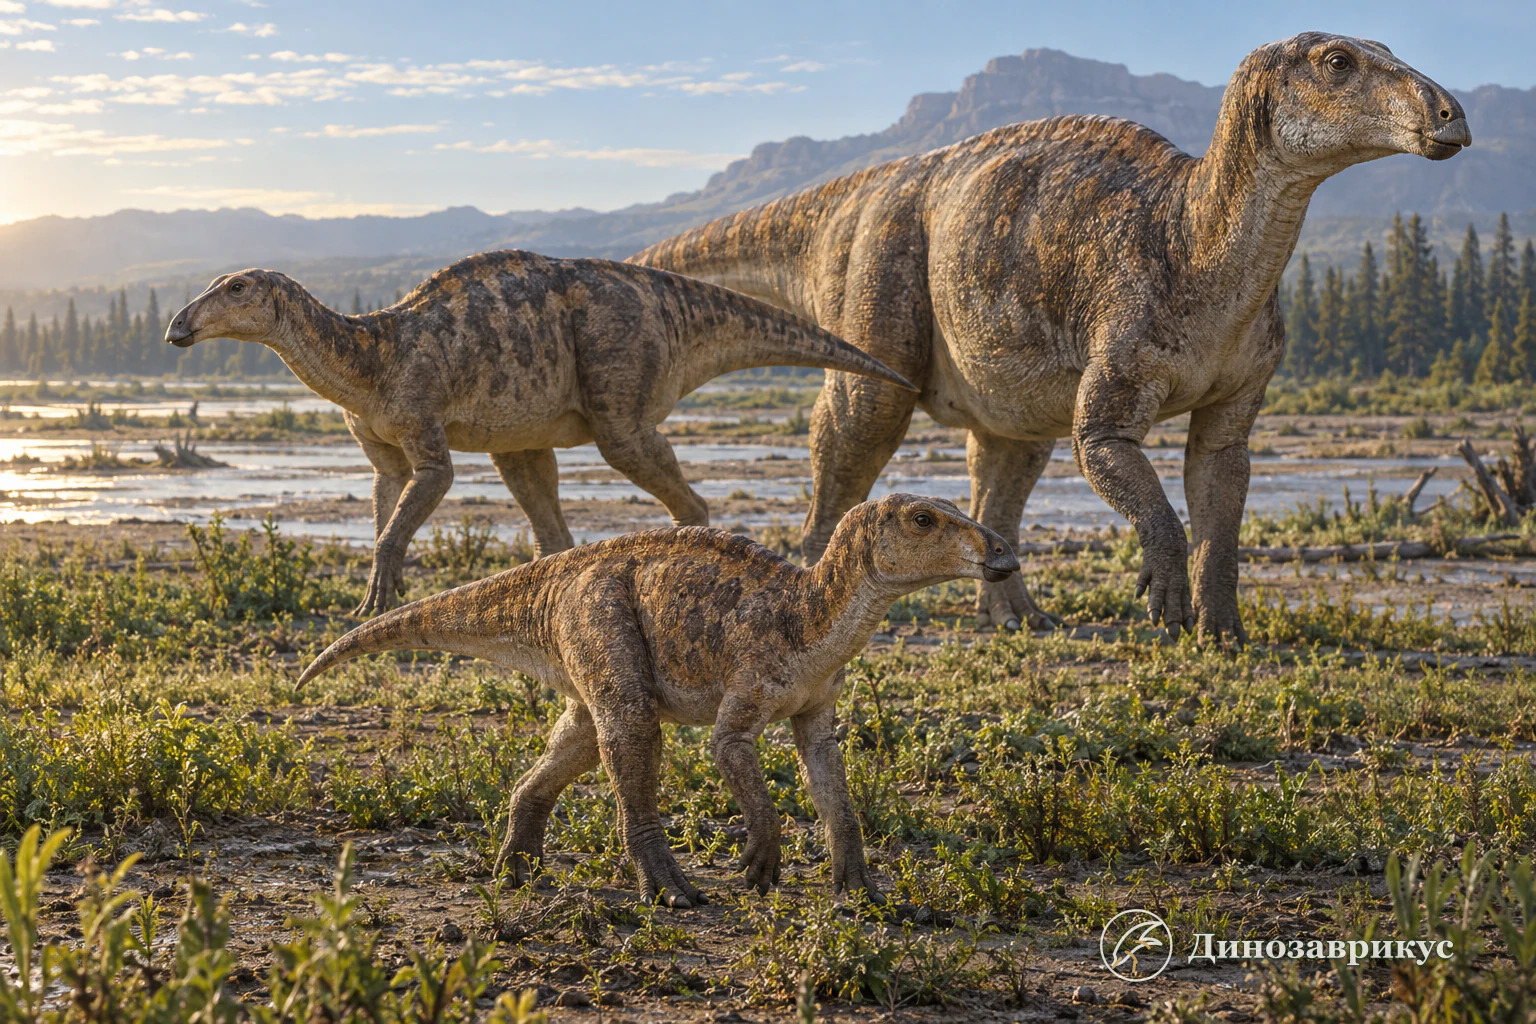
Динозавры росли быстрее большинства современных пресмыкающихся, но единой скорости для всей группы не существовало. Небольшой вид мог приблизиться к взрослому размеру за несколько лет, крупный гадрозавр быстро набирал массу в юности и замедлялся к восьми годам, а гигантский завропод продолжал расти гораздо дольше. Даже особи одного вида и возраста могли заметно различаться размерами.
Эти сроки не записаны на кости готовыми числами. Палеонтологи изучают микроструктуру, считают сезонные остановки роста, сравнивают молодых и взрослых особей, восстанавливают утраченные внутренние слои и переводят размеры кости в приблизительную массу тела. Поэтому надёжнее всего различаются общий темп, возрастные стадии и момент замедления. Точное число килограммов в год всегда зависит от модели.
Кость растёт и перестраивается
Длинная кость увеличивается двумя путями. В области ростовых пластинок она удлиняется, а наружная поверхность диафиза наращивает новые слои и увеличивает толщину. Одновременно клетки разрушают старую ткань и строят вторичные остеоны. Такая перестройка поддерживает рабочую прочность скелета, но стирает часть ранней истории.
Именно стенка диафиза чаще всего хранит последовательность роста. Сеть сосудистых каналов показывает, насколько интенсивно формировалась ткань. Ориентация волокон и организация матрикса различают быстро и медленно отложенную кость. Узкие зоны и линии остановки фиксируют замедления, а плотный наружный край может указывать на приближение к скелетной зрелости.
Форма и назначение костей различаются, поэтому срез бедра нельзя механически приравнять к срезу ребра. Возрастные изменения затрагивали весь скелет, но нагрузка и скорость перестройки в разных элементах были неодинаковы. Общий обзор анатомии динозавров помогает понять, почему исследователи указывают не только вид, но и конкретную кость, сторону тела и место отбора образца.
Как готовят тонкий срез
Перед отбором образца кость фотографируют, измеряют и при возможности сканируют. Небольшой фрагмент пропитывают смолой, приклеивают к стеклу и шлифуют до толщины, при которой через него проходит свет. В обычном и поляризованном освещении становятся видны сосудистые каналы, ориентация волокон, границы зон и следы перестройки.
Метод частично разрушает образец. Уникальный голотип нельзя резать только ради красивой иллюстрации, поэтому материал выбирают с учётом научной ценности, сохранности и доступных альтернатив. Иногда исследуют уже сломанный край, отдельное ребро или менее диагностичный элемент. Компьютерная томография помогает заранее оценить внутреннюю структуру, но не всегда заменяет тонкий срез: микроскопические типы ткани требуют достаточного разрешения и контраста.
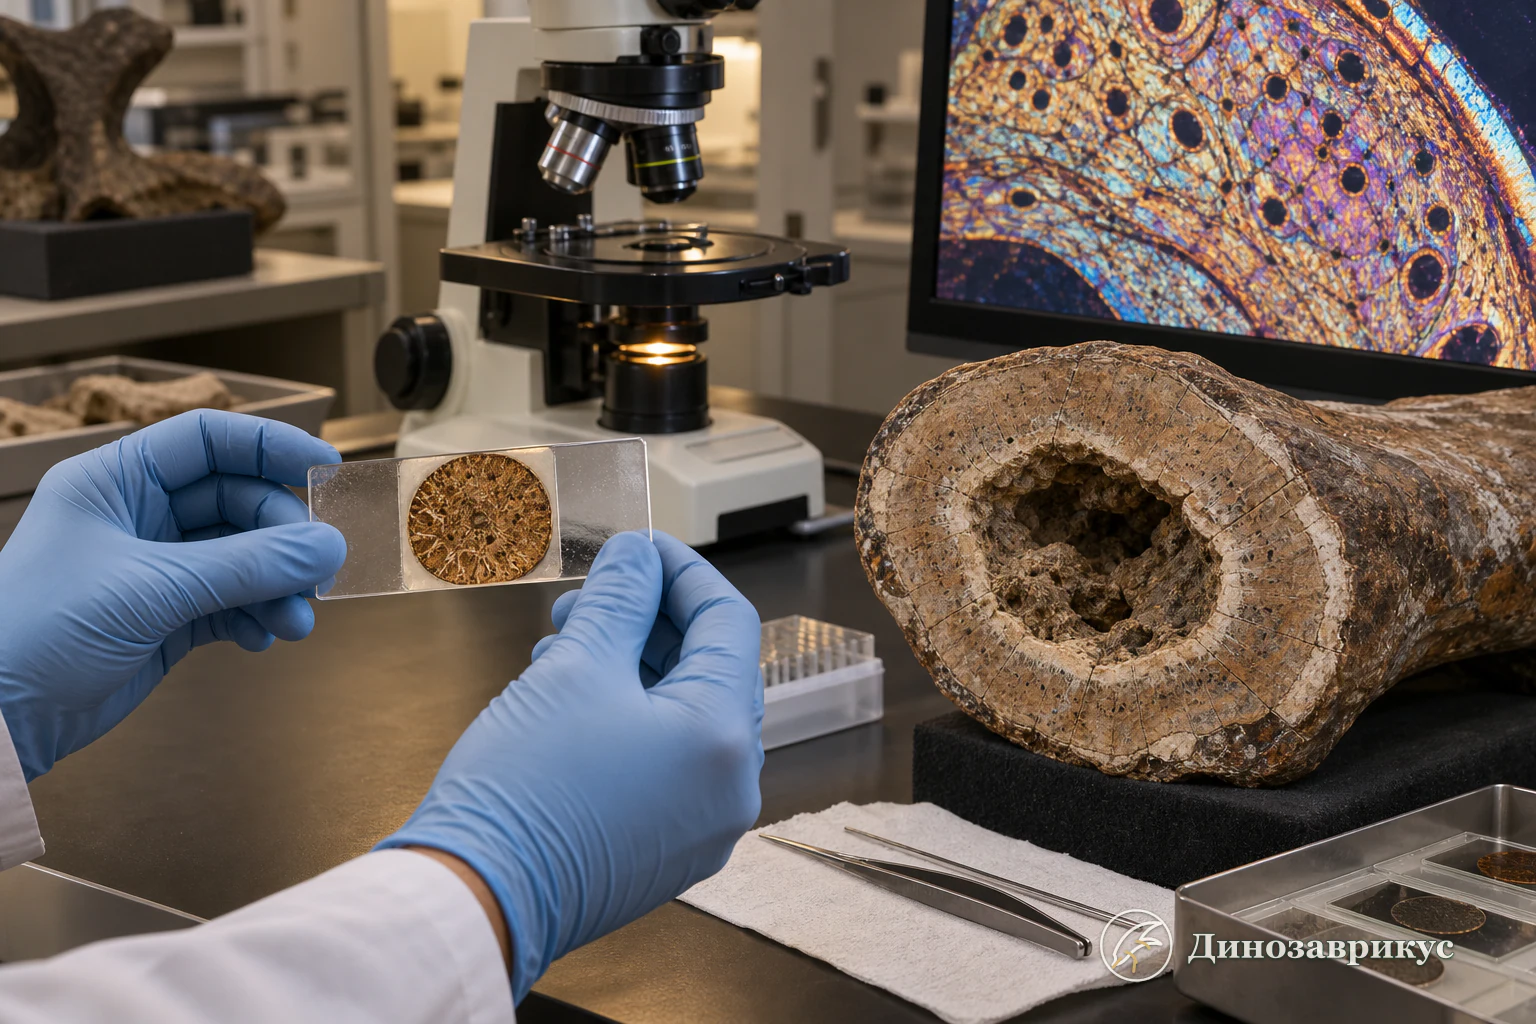
На изображении показан общий принцип лабораторной работы, а не определённый музейный экземпляр. Настоящий препарат гораздо тоньше изображённого фрагмента, а цвета под поляризованным светом зависят от минералов, толщины среза и положения фильтров.
Быстрая и медленная ткань
Фиброламеллярная кость сочетает быстро отложенный волокнистый матрикс с первичными остеонами и густой сетью сосудистых каналов. Она широко распространена у динозавров и свидетельствует о быстром формировании ткани. Параллельно-волокнистая и ламеллярная кость обычно откладываются медленнее и часто становятся заметнее при замедлении роста.
Это качественная шкала. Густая сосудистость не означает автоматически определённое число килограммов в сутки. На микроструктуру влияют вид ткани, положение среза, механическая нагрузка и стадия жизни. Чтобы получить кривую массы, к срезу добавляют размеры тела, возрастные ряды и математическую модель.
Быстрое образование хорошо снабжаемой кровью кости согласуется с активной физиологией многих динозавров. Однако гистология не измеряет температуру тела напрямую. Она составляет одну линию доказательств в вопросе о том, были ли динозавры теплокровными, наряду с изотопами, дыхательной анатомией, покровами и распространением в разных климатах.
Что означают линии остановки роста
Линия остановки роста, или LAG, возникает, когда отложение кости по наружной поверхности временно прекращается. У многих животных такие границы связаны с сезонным дефицитом пищи, воды или тепла. Последовательность линий может служить календарём, если их периодичность подтверждена для изучаемого ряда.
Простой подсчёт часто занижает возраст. По мере расширения костномозговой полости внутренние слои исчезают, а вторичная перестройка разрушает прежний рисунок. Пропущенные линии пытаются восстановить по геометрии оставшихся зон или по меньшим особям того же вида. Каждый такой шаг увеличивает диапазон неопределённости.
Сама линия не доказывает холоднокровность. Сезонные остановки известны и у диких млекопитающих с устойчивой температурой тела. Они показывают, что рост реагировал на цикл среды и доступность ресурсов, а не раскрывают одним признаком весь обмен веществ.
От окружности кости к массе тела
Ростовая зона сообщает, насколько увеличился радиус кости между двумя моментами. Чтобы перейти к массе, исследователь восстанавливает окружность на каждом возрасте и применяет зависимость между размерами опорных костей и массой тела. Затем точки соединяют выбранной кривой роста. Обычно она включает медленное начало, быстрый ювенильный этап и замедление возле взрослого размера.
На каждом этапе есть допущения. Неполная кость требует реконструкции окружности. Массу вымершего животного получают из пропорций скелета или объёмной модели. Вид кривой выбирают статистически, но маленькая выборка может одинаково хорошо поддерживать разные функции. Если среди образцов нет действительно зрелой особи, расчёт предельной массы и пика роста становится особенно ненадёжным.
Классические модели сыграли важную роль, потому что впервые сделали жизненную историю динозавров количественной. Позднейшая перепроверка 31 набора данных показала, что многие опубликованные кривые нельзя точно воспроизвести, а асимптотическая модель лучше всего подходила лишь к части выборок. Широкий вывод о сравнительно быстром росте сохранился, но эффектные точные цифры следует читать вместе с диапазоном и методом расчёта.
Майазавра: рост, показанный большой выборкой
Один из наиболее информативных рядов принадлежит майазавре. Исследователи изучили 50 большеберцовых костей разного размера. Такая серия уменьшает риск принять необычную особь за норму и позволяет совместить ранние и поздние участки ростовой записи.
По этой выборке майазавра за первый год достигала более половины предполагаемой взрослой окружности большеберцовой кости. Примерно к трём годам модель давала около 36 процентов предельной массы и среднее значение порядка 1,26 тонны. Скелетный рост заметно замедлялся после восьми лет. Эти числа относятся к конкретному набору костей и использованной модели, но общий рисунок устойчив: очень быстрый ранний рост, затем растянутое замедление.
Возраст половой зрелости нельзя просто приравнять к завершению роста. Авторы предположили, что размножение могло начаться около третьего года, когда животное ещё сильно уступало взрослому размеру. Это вывод из формы кривой и сравнения жизненных стратегий, а не прямая находка яйца внутри каждой особи.
Тираннозавриды и юношеский рывок
Классическая модель тираннозавра помещала резкое ускорение набора массы в подростковые годы и оценивала пик примерно в 2,1 килограмма в день. Скелетная зрелость наступала около двадцати лет, а самые старые включённые особи приближались к тридцати. Эти значения часто повторяют как измеренные факты, хотя они получены из небольшой выборки, восстановленных возрастов и оценок массы.
Последующие работы подтвердили саму идею длительного ювенильного этапа и быстрого позднего роста у тираннозаврид. Они также показали иной путь к гигантизму у крупных аллозавроидов: одни линии увеличивали скорость роста, другие дольше сохраняли рост. Крупный взрослый размер мог возникнуть разными изменениями жизненного цикла.
Дополнительная трудность связана с систематикой. Назначение некоторых небольших скелетов тираннозавру или отдельному роду остаётся предметом пересмотра. Если экземпляры в одной кривой принадлежат разным таксонам, возрастной ряд и рассчитанный рывок меняются. Поэтому безопасный вывод звучит так: тираннозавриды росли быстро в молодости и приближались к гигантскому размеру за десятилетия, но одно точное суточное значение не описывает каждого тираннозавра.
Как детёныш завропода становился гигантом
Завроподы вылуплялись из яиц, диаметр которых не мог расти вместе с матерью без предела. Разрыв между небольшим детёнышем и многотонной взрослой особью требовал длительного и интенсивного набора массы. Эмбриональные кости ранних завроподоморфов уже показывают быстрое образование ткани до вылупления. Подробнее о прямых находках скорлупы и зародышей рассказывает обзор яиц динозавров.
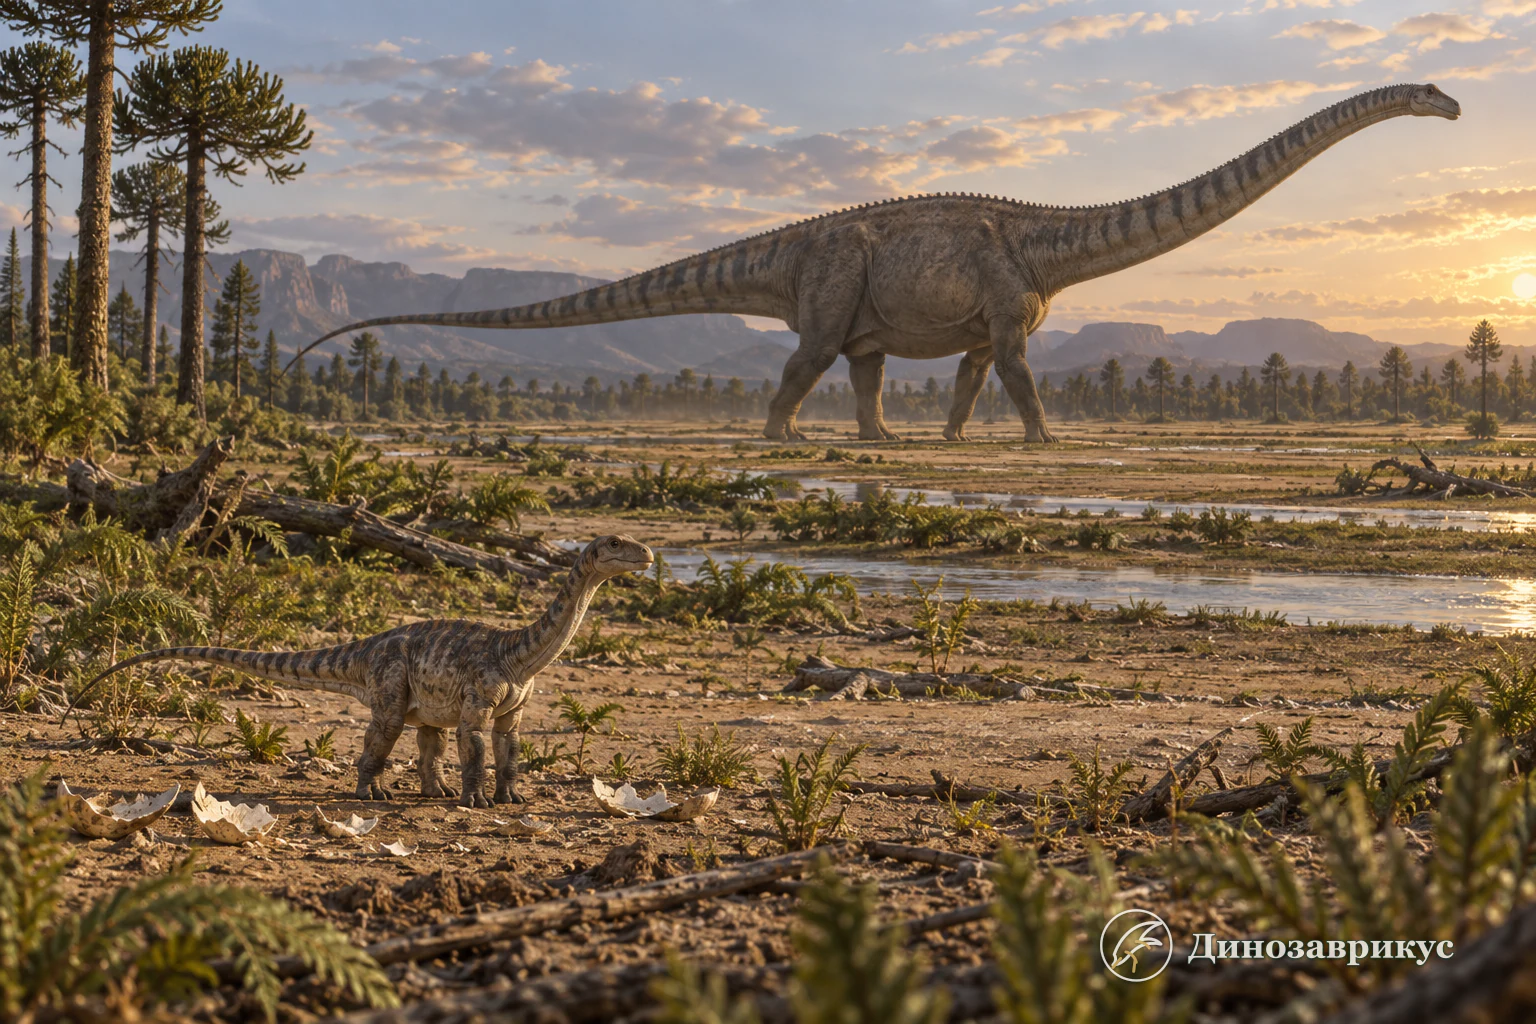
Крупные завроподы обычно сохраняют фиброламеллярную кость и следы продолжительного быстрого роста. Но внутренние зоны у взрослых животных часто уничтожены расширением костномозговой полости и перестройкой. В одном исследовании лишь меньшая часть более чем 250 просмотренных экземпляров сохранила запись, пригодную для количественной кривой. Поэтому возраст зрелости гигантов нельзя уверенно вывести из нескольких видимых колец.
Иллюстрация показывает масштаб жизненного пути, а не семейную сцену. Совместное присутствие взрослого и детёныша, окраска, растительность и момент после вылупления художественны. Ископаемые яйца, эмбрионы и кости разных размеров подтверждают сами крайние стадии, но не постоянную заботу взрослого о потомстве.
Один возраст не гарантирует один размер
У платеозавра гистология показала выраженную изменчивость: размер тела слабо предсказывал возраст, а темп роста мог заметно различаться между особями. Быстрая фиброламеллярная ткань сочеталась с разным количеством ростовых циклов. Такую картину интерпретировали как пластичный рост, зависевший от условий и индивидуальной истории.
Популяционная выборка целофизиса дала сходное предупреждение. Число ростовых меток оказалось полезнее внешнего размера для оценки возраста, а морфологическая зрелость не совпадала строго с календарной. Крупная молодая особь могла обгонять более старую, а изменения пропорций и срастание костей происходили с разной скоростью.
Пластичность не означает отсутствие биологической программы. Она показывает, что генетический путь реализовывался при разном питании, климате, болезнях и конкуренции. Для ископаемой выборки это особенно важно: найденные кости принадлежат не лабораторной серии с одинаковыми условиями, а животным из меняющейся среды.
Пситтакозавр менял не только размер
Серия из 41 кости пситтакозавра позволила сопоставить возраст с ростом передних и задних конечностей. В ранние годы быстро увеличивались передние конечности, затем примерно между четвёртым и шестым годами сильнее росли задние. Авторы связали это с переходом от четвероногой походки молодого животного к более двуногой у взрослого.
Такой вывод основан не на одной линии в одной кости. Он соединяет гистологический возраст, длины элементов и изменение их пропорций. Результат показывает, почему рост нельзя сводить к равномерному увеличению уменьшенной копии взрослого. Части тела менялись с разной скоростью, а вместе с ними могли меняться поза, движение и доступная пища.
Похожий принцип виден у раннего завроподоморфа мусзавра: реконструкции возрастного ряда указывают на изменение центра массы и переход от четвероногого детёныша к преимущественно двуногому взрослому. Здесь опора строится на геометрии скелета и механическом моделировании, поэтому это отдельная линия данных, которую гистология может датировать, но не заменяет.
Зрелость имеет несколько значений
Половая зрелость, замедление быстрого роста и окончательное формирование скелета не обязаны наступать одновременно. Животное могло начать размножаться, продолжая набирать массу. Срастание швов тоже не работает как универсальные часы: разные части скелета завершали развитие в разное время, а последовательность могла отличаться между родственными видами.
Наружная фундаментальная система, EFS, выглядит как несколько тесно расположенных линий у внешнего края кости. Обычно она указывает, что быстрый рост в толщину почти завершился. Отсутствие EFS не доказывает молодость: наружный край мог быть разрушен, нужный участок не попал в срез, а животное могло погибнуть до формирования этого признака.
Поэтому в научном описании лучше уточнять, о какой зрелости идёт речь. «Взрослый размер» обычно означает приближение к асимптоте модели. «Скелетная зрелость» опирается на микроструктуру и анатомические признаки. «Репродуктивная зрелость» требует других свидетельств и часто остаётся оценкой.
Что меняло скорость роста
Широкие и узкие зоны отражают не только возраст. Засуха, нехватка пищи, холодный сезон, болезнь или травма могли временно замедлить образование ткани. Благоприятные годы позволяли наверстать часть отставания. Следы заживления и локальная перестройка дополнительно меняли рисунок возле повреждения.
Положение особи в популяции, пол и репродуктивные затраты тоже могли влиять на рост, но их редко удаётся установить для конкретной кости. Географически разделённые популяции одного вида могли жить в разных климатических режимах. Без большой серии исследователь рискует принять личную биографию за норму всего таксона.
Эта изменчивость объясняет, почему палеонтологи публикуют номера экземпляров, измерения, место среза и альтернативные модели. Повторяемость зависит от исходных данных, а не от убедительности одной итоговой цифры.
Что известно прямо, а что рассчитано
Прямо наблюдаются тип ткани, сосудистые каналы, линии остановки, вторичные остеоны, наружный край и размеры конкретной кости. Геологический контекст показывает возраст породы, но не календарный возраст животного при смерти. Сопоставление нескольких особей добавляет последовательность возрастных стадий.
Относительный темп отложения кости и минимальный возраст являются выводами, близкими к наблюдению. Число утраченных внутренних линий, масса тела на каждом возрасте, форма кривой и пиковый набор килограммов зависят от реконструкции. Чем меньше выборка и хуже сохранён край кости, тем шире разумный диапазон.
Обложка представляет три возрастные стадии условного гадрозавра в одной сцене. Разница размеров правдоподобна, но это художественное объединение, а не фотография ископаемого стада и не точная серия одного вида. Научные возрастные ряды собирают из разных особей, найденных иногда в разных местах и слоях.
Итог
Гистология показывает, что многие динозавры быстро строили хорошо снабжаемую сосудами кость, переживали сезонные замедления и затем приближались к скелетной зрелости. Небольшие виды могли завершать основную фазу роста за несколько лет. Майазавра резко увеличивалась в первый год и замедлялась после восьми лет. Тираннозавриды проходили выраженный юношеский рывок, а завроподы дольше наращивали огромное тело.
Одна линия в кости не равна готовому ответу. Ранние слои стираются, размер не всегда совпадает с возрастом, а массу и пиковую скорость получают из моделей. Самые надёжные результаты дают большие серии, в которых срезы, анатомия и статистика подтверждают друг друга. Поэтому на вопрос «как быстро росли динозавры?» правильно отвечать диапазонами для конкретного вида, а не одним числом для всей группы.
Частые вопросы
Сколько лет требовалось тираннозавру, чтобы вырасти?
Классические гистологические модели помещают основное ускорение роста в подростковые годы и приближение к скелетной зрелости примерно к двадцати годам. Точная граница зависит от того, какие экземпляры включены, как восстановлены утраченные линии и как рассчитана масса.
Как быстро росли завроподы?
Их кости показывают быстрый и продолжительный рост, необходимый для перехода от небольшого детёныша к многотонному взрослому. Точное число килограммов в год сильно зависит от вида и модели, а ранние слои у крупных особей часто уничтожены перестройкой.
Каждая линия в кости равна одному году?
Не автоматически. Сезонную периодичность проверяют по последовательности зон и сравнительным данным. Дополнительные стрессовые метки могут усложнить подсчёт, а самые ранние линии нередко исчезают при расширении костномозговой полости.
Переставали ли динозавры расти после взросления?
У многих быстрый рост резко замедлялся возле скелетной зрелости, что видно по плотному наружному краю и EFS. Небольшое дальнейшее отложение ткани могло продолжаться. Репродуктивная зрелость часто наступала раньше полного завершения роста.