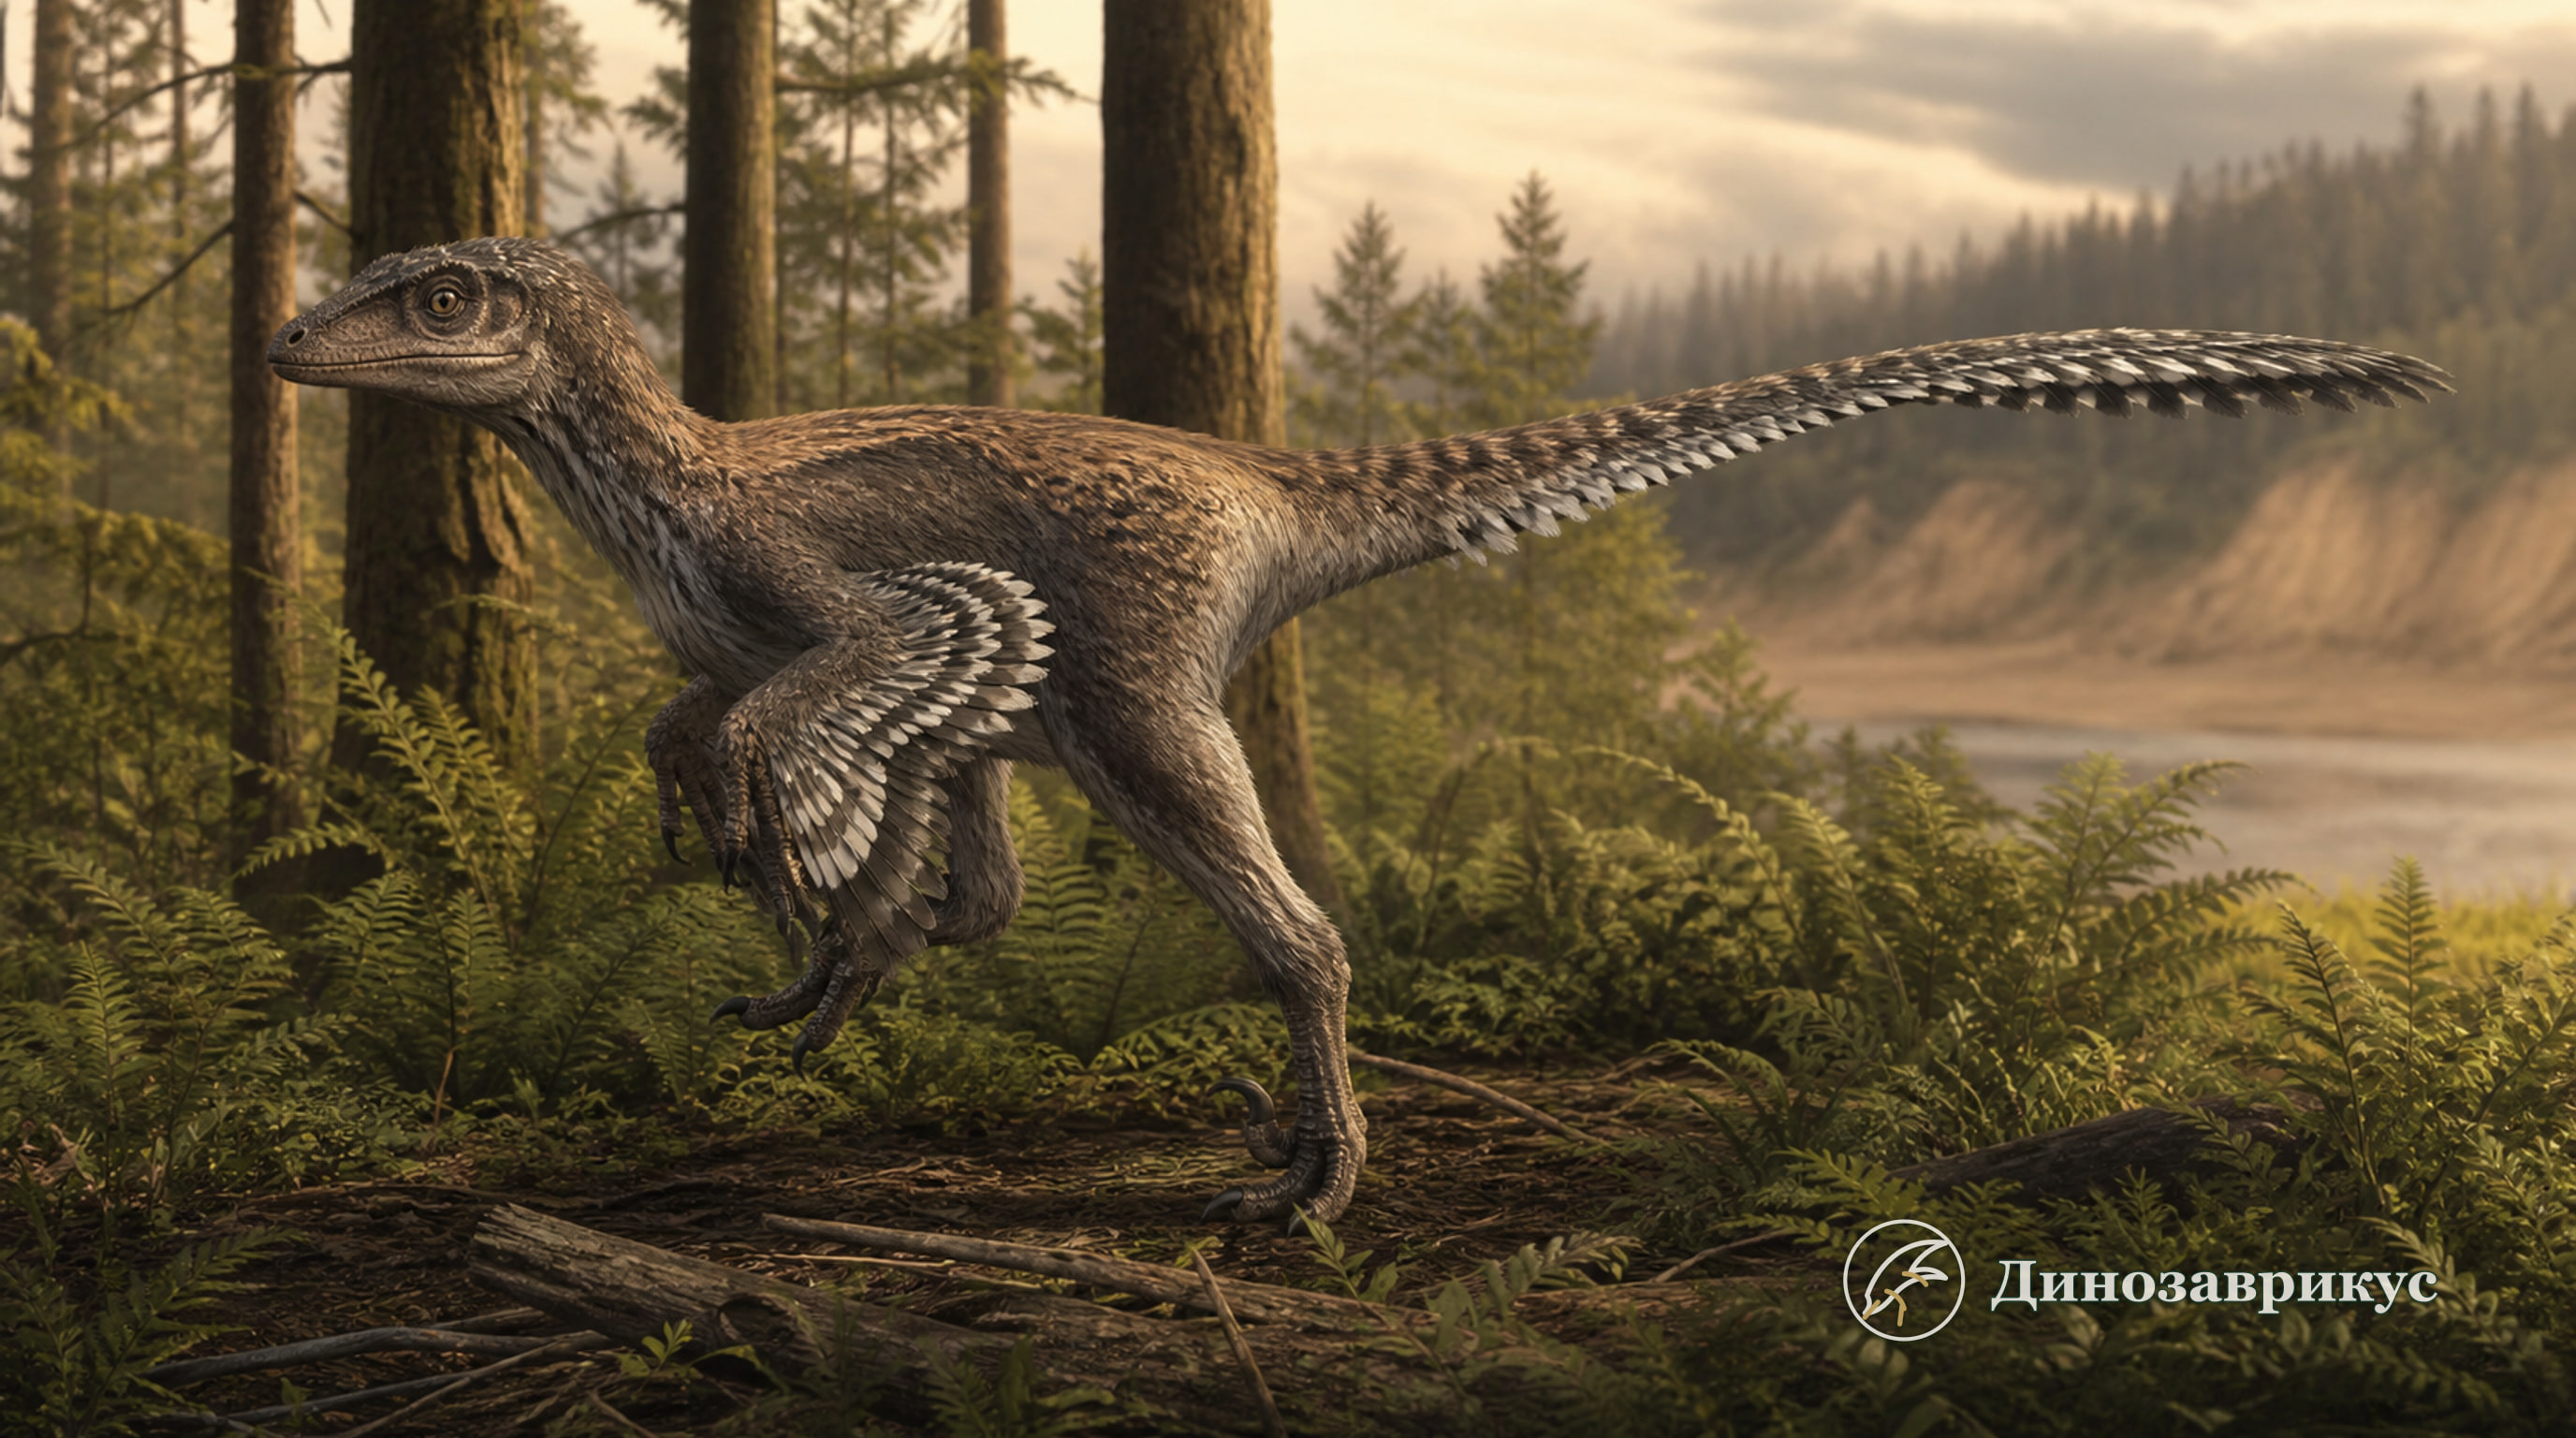
Ахерораптор (Acheroraptor temertyorum) – дромеозаврид, живший на территории современной Монтаны в самом конце мелового периода, примерно 67–66 млн лет назад. Его описали по двум связанным находкам из формации Хелл-Крик: почти полной правой верхнечелюстной кости с зубами и почти полной левой нижнечелюстной кости без зубов. Полного черепа, позвоночника, конечностей или знаменитого серповидного когтя именно этого рода пока не описано.
Поэтому ахерораптор одновременно важен и плохо известен. Его челюсть позволила связать характерные изолированные зубы Хелл-Крик с определённым родом, но большая часть внешности восстанавливается по другим дромеозавридам. Оценка длины около 3 м и массы около 40 кг, приведённая Королевским музеем Онтарио, является сравнительной реконструкцией, а не результатом измерения найденного скелета.
Краткий профиль
| Параметр | Сведения |
|---|---|
| Научное название | Acheroraptor temertyorum Evans, Larson & Currie, 2013 |
| Статус | Единственный названный вид рода Acheroraptor |
| Группа | Dinosauria, Theropoda, Dromaeosauridae; в анализе 2022 года – Saurornitholestinae |
| Время | Поздний маастрихт, ориентировочно 67–66 млн лет назад |
| Место | Формация Хелл-Крик, округ Гарфилд, Монтана, США |
| Голотип | ROM 63777, почти полная правая верхнечелюстная кость с зубами |
| Отнесённый экземпляр | ROM 63778, почти полная левая нижнечелюстная кость без зубов; принадлежность тому же животному вероятна, но не доказана |
| Размер | Музейная сравнительная оценка – около 3 м и 40 кг; посткраниальный скелет неизвестен |
| Питание | Хищное; зубы приспособлены к разрезанию тканей, конкретная добыча не установлена |
| Покровы | Прямых отпечатков нет; перьевой покров вероятен по положению среди дромеозавридов |
Происхождение названия
Русское название «ахерораптор» передаёт начало научного имени Acheroraptor. Авторы образовали его от Ахерона – реки страданий в древнегреческом подземном мире – и латинского raptor, «грабитель» или «похититель». Ахерон отсылает к названию формации Hell Creek, то есть «Адский ручей». В научном имени слово Acheron намеренно сократили ради благозвучия.
Видовой эпитет temertyorum посвящён Джеймсу и Луизе Темерти за поддержку Королевского музея Онтарио. Род и вид назвали в 2013 году палеонтологи Дэвид К. Эванс, Дерек У. Ларсон и Филип Дж. Карри.
Где нашли голотип и что известно о коллекторах
ROM 63777 нашли в формации Хелл-Крик приблизительно в 45 км к юго-западу от города Джордан в округе Гарфилд, штат Монтана. Кость лежала непосредственно в красноватом крупнозернистом песчанике. В том же слое находились мелкие остатки позвоночных и обломки раковин беспозвоночных.
Почти полную левую нижнюю челюсть ROM 63778 обнаружили примерно в четырёх метрах от верхней челюсти, в том же песчаниковом костеносном горизонте. Размеры двух костей соответствуют друг другу, поэтому авторы допустили, что они могли принадлежать одной особи. Они всё же не соединились анатомически, а расстояние и смешанный состав местонахождения не позволяют считать это доказанным. По этой причине ROM 63778 указан как предварительно отнесённый экземпляр, а не как часть голотипа.
Первичная публикация не называет человека, который первым заметил кость в поле. В благодарностях сообщается, что материал собрала и подготовила компания CK Preparations из Форт-Пека, а Т. Сивер помог Королевскому музею Онтарио приобрести голотип. Покупку поддержал фонд Louise Hawley Stone Trust. Приписывать открытие конкретному палеонтологу или коллекционеру без дополнительного музейного документа было бы неточно.
Что представляет собой голотип ROM 63777
Голотип – почти полная правая максилла, то есть основная зубонесущая кость верхней челюсти. У неё отсутствует задняя часть отростка, соединявшегося со скуловой костью. Сохранившаяся зубная часть имеет длину 92 мм и содержит девять альвеол. Поверхность кости передаёт мелкие анатомические детали, хотя образец немного раздавлен и пересечён крупной горизонтальной трещиной.
В третьей, пятой и седьмой позициях сохранились полные коронки. Отдельный зуб с корнем, найденный вместе с костью, вероятно, происходил из второй альвеолы. Четвёртая и шестая позиции показывают последовательные стадии прорезывания, восьмой зуб сохранился частично. Такое чередование демонстрирует постоянную замену зубов, но рентгенограмма не позволила полностью восстановить расположение сменных зачатков внутри кости.
Максилла ценна не количеством костей, а диагностическими деталями. Передняя часть кости была относительно длинной, что указывает на более вытянутую морду, чем у ряда североамериканских дромеозавридов. Низко в предглазничной впадине располагалось крупное верхнечелюстное отверстие. Позади него внутренняя костная стенка сильно выдавалась назад в предглазничное окно. Именно сочетание положения отверстий, разросшейся внутренней стенки и строения зубов позволило отличить род.
Нижняя челюсть ROM 63778
Отнесённый экземпляр представляет почти полную левую зубную кость. Зубы и небольшая задняя часть не сохранились. В имеющемся участке видны 15 альвеол; первоначально могла существовать ещё одна или две позиции. Передний конец сужается перед третьей альвеолой и образует небольшой подбородочный изгиб, значительно слабее выраженный, чем у велоцираптора.
К дромеозавридам кость отнесли по сросшимся межзубным пластинкам, форме ветви и положению меккелевой борозды на внутренней стороне. Эти признаки одновременно отличают её от челюстей Richardoestesia и троодонтид, также известных из Хелл-Крик. Отдельное включение ROM 63778 в филогенетический анализ подтвердило принадлежность к эудромеозаврам и не противоречило связи с ахерораптором, но определить род только по этой беззубой кости труднее.
Зубы связали разрозненные находки с одним животным
До описания ROM 63777 мелких хищных динозавров позднего маастрихта Северной Америки знали преимущественно по отдельным зубам. Их называли зубами Dromaeosaurus, Saurornitholestes или даже Velociraptor, хотя диагностические скелеты этих родов происходили из других мест и слоёв.
Зубы ахерораптора узкие поперёк челюсти, сильно изогнутые и лезвиеподобные. Передние зубчики режущей кромки мельче задних: в описанной выборке насчитывалось примерно 6,6–7,8 передних и 4,4–5 задних зубчиков на миллиметр. На обеих сторонах коронок проходят продольные гребни от основания к вершине. Обычно их два или три с внутренней стороны и три или четыре с наружной; к задней части зубного ряда количество уменьшается.
Сравнение размеров и формы показало, что коронки ROM 63777 ближе к изолированным зубам формаций Хелл-Крик и Лэнс, чем к зубам других исследованных североамериканских дромеозавридов. Авторы предположили, что значительная часть этих находок принадлежит ахерораптору. Это не означает, что любой небольшой зазубренный зуб из Хелл-Крик можно автоматически записать в данный род. Некоторые похожие коронки лишены продольных гребней, а причина различия – положение зуба в челюсти, индивидуальная изменчивость или иной таксон – окончательно не установлена.
Почему положение в классификации изменилось
В 2013 году два филогенетических набора данных дали неодинаковую чёткость. Более специализированный анализ поместил ахерораптора в Velociraptorinae рядом с азиатскими Adasaurus, Tsaagan и велоцираптором. Более широкий анализ теропод оставил большую часть эудромеозавров в неразрешённой группе. Авторы осторожно связали результат с возможным позднемеловым расселением из Азии в Северную Америку.
В 2022 году Марк Пауэрс и соавторы исследовали верхние челюсти ахерораптора, атроцираптора и дейнониха при помощи компьютерной томографии и пересмотрели набор признаков. Их анализ восстановил ахерораптора как производного представителя Saurornitholestinae, то есть североамериканской линии, а сходные пропорции длинной морды с азиатскими велоцирапторинами объяснил конвергенцией. Этот результат ослабляет прежний биогеографический вывод: форма верхней челюсти сама по себе не доказывает миграцию ближайших предков ахерораптора из Азии.
Первоначальное описание предложило положение в Velociraptorinae, а более позднее КТ-исследование поддержало Saurornitholestinae. Поэтому близкое родство с велоцираптором больше не считается бесспорным. Обе гипотезы основаны почти целиком на ограниченном черепном материале.
Размеры известны только приблизительно
В первичном описании ахерораптор назван дромеозавридом среднего размера, но длина тела по двум челюстям отдельно не вычислялась. Королевский музей Онтарио при представлении находки оценил животное примерно в 3 м и 40 кг, сопоставив челюсть с лучше известными родственниками.
Эти значения полезны для масштаба, однако диапазон ошибки велик. Неизвестны длина хвоста, пропорции туловища и конечностей, возраст особи и индивидуальная изменчивость. Утверждение, что конкретный экземпляр имел ровно трёхметровую длину или массу 40 кг, было бы точнее, чем позволяют находки.
Питание и механика укуса
Форма зубов прямо указывает на хищный рацион: изогнутые сжатые коронки и две зазубренные кромки работали как режущие элементы. При этом ни содержимое желудка, ни копролиты, ни кости добычи с уверенно опознанными следами зубов ахерораптора не описаны. Нельзя установить, охотился ли он преимущественно на млекопитающих, молодых динозавров, ящериц или использовал падаль.
В 2024 году Чан-Гю Юн применил балочную модель к нижней челюсти ROM 63778. Расчёт показал приспособленность к быстрым режущим укусам, характерным для предложенных моделей питания дромеозавридов. По рассчитанным механическим свойствам челюсть оказалась слабее, чем у Saurornitholestes langstoni, и ближе к некоторым азиатским велоцирапторинам. Автор предположил охоту на более мелкую добычу, чем у саурорнитолеста.
Это вывод модели, а не прямое наблюдение. Исследование опирается на одну неполную беззубую челюсть, предварительно отнесённую к роду, и не учитывает неизвестные мышцы конкретной особи. Оно уточняет вероятный способ нагружения, но не восстанавливает список добычи или поведение во время охоты.
Ахерораптор в экосистеме Хелл-Крик
Находка относится к позднему маастрихту и континентальной фауне последних примерно одного миллиона лет мела. В совместимых отложениях Хелл-Крик обитали крупные тираннозавры, трицератопсы, гадрозавры, мелкие тероподы, черепахи, крокодилообразные, рыбы и млекопитающие. Прямые пищевые или поведенческие связи ахерораптора с конкретными соседними животными не установлены.
Редкость его скелетных остатков частично может быть следствием условий сохранения. Небольшие наземные животные чаще расчленялись, переносились и уничтожались до захоронения, тогда как крупные кости легче заметить при раскопках. В работе 2013 года дромеозавриды составляли менее 3% учтённого комплекса динозавров формации, хотя зубы мелких теропод попадали в микропозвоночные местонахождения. Это доля ископаемой выборки, а не прямой подсчёт живой популяции.
Какие части внешности известны
Прямо известны вытянутая верхнечелюстная кость, строение отверстий и внутренних стенок морды, форма зубов и общие очертания отнесённой нижней челюсти. Относительно длинная морда является обоснованным выводом из сравнения максиллы с другими дромеозавридами.
Двуногая поза, длинный хвост, хватательные передние конечности и увеличенный коготь второго пальца стопы восстанавливаются по принадлежности к Dromaeosauridae, а не по костям ахерораптора. Перьевой покров вероятен из-за его положения внутри оперённой линии паравиальных теропод, но отпечатков пера или кожи этого рода нет.
Окраска, рисунок перьев, мягкие гребни, размер стаи и сцена кормления на обложке остаются художественным выбором. Изображение ахерораптора возле туши трицератопса, созданное для музейной новости 2013 года, иллюстрирует возможную ситуацию, но не является свидетельством падальничества или группового поведения.
Почему находка важна
В общем каталоге видов динозавров ахерораптор представляет редких мелких хищников самого конца мела. Он стал первым североамериканским дромеозавридом позднего маастрихта, получившим название по диагностической кости челюсти, а не только по изолированным зубам. Находка позволила пересмотреть старые определения зубов из Хелл-Крик и Лэнс и показала, насколько много информации может содержать одна хорошо сохранившаяся максилла.
Одновременно история его классификации показывает пределы такого материала. Внешнее сходство длинных челюстей сначала поддержало азиатское родство, а КТ и новый набор признаков привели к североамериканскому положению. Полный череп или связанный посткраниальный скелет способны снова заметно изменить представление о роде.
Случай ахерораптора показывает, что даже две челюстные кости могут быть диагностичнее множества разрозненных зубов, если сохраняют уникальное сочетание анатомических признаков.
Частые вопросы
Ахерораптор и велоцираптор – один род?
Нет. Это разные роды с разных континентов. Первоначальный анализ считал их сравнительно близкими велоцирапторинами, но исследование 2022 года отнесло ахерораптора к Saurornitholestinae и объяснило сходство морды конвергенцией.
Сохранился ли серповидный коготь ахерораптора?
Нет подтверждённого когтя в типовом материале. Он включает верхнюю и предварительно отнесённую нижнюю челюсти. Увеличенный коготь на стопе изображают по близким дромеозавридам.
Кто нашёл ахерораптора?
Первичное описание 2013 года не называет отдельного находчика. Материал собрала и подготовила CK Preparations; Т. Сивер помог музею приобрести голотип. Авторы научного названия исследовали экземпляры, но первооткрывателями в публикации не названы.
Был ли ахерораптор покрыт перьями?
Прямых отпечатков покровов нет. Перья вероятны по филогенетическому положению среди дромеозавридов и находкам оперения у родственных паравиальных теропод, но их длина, распределение и цвет неизвестны.


