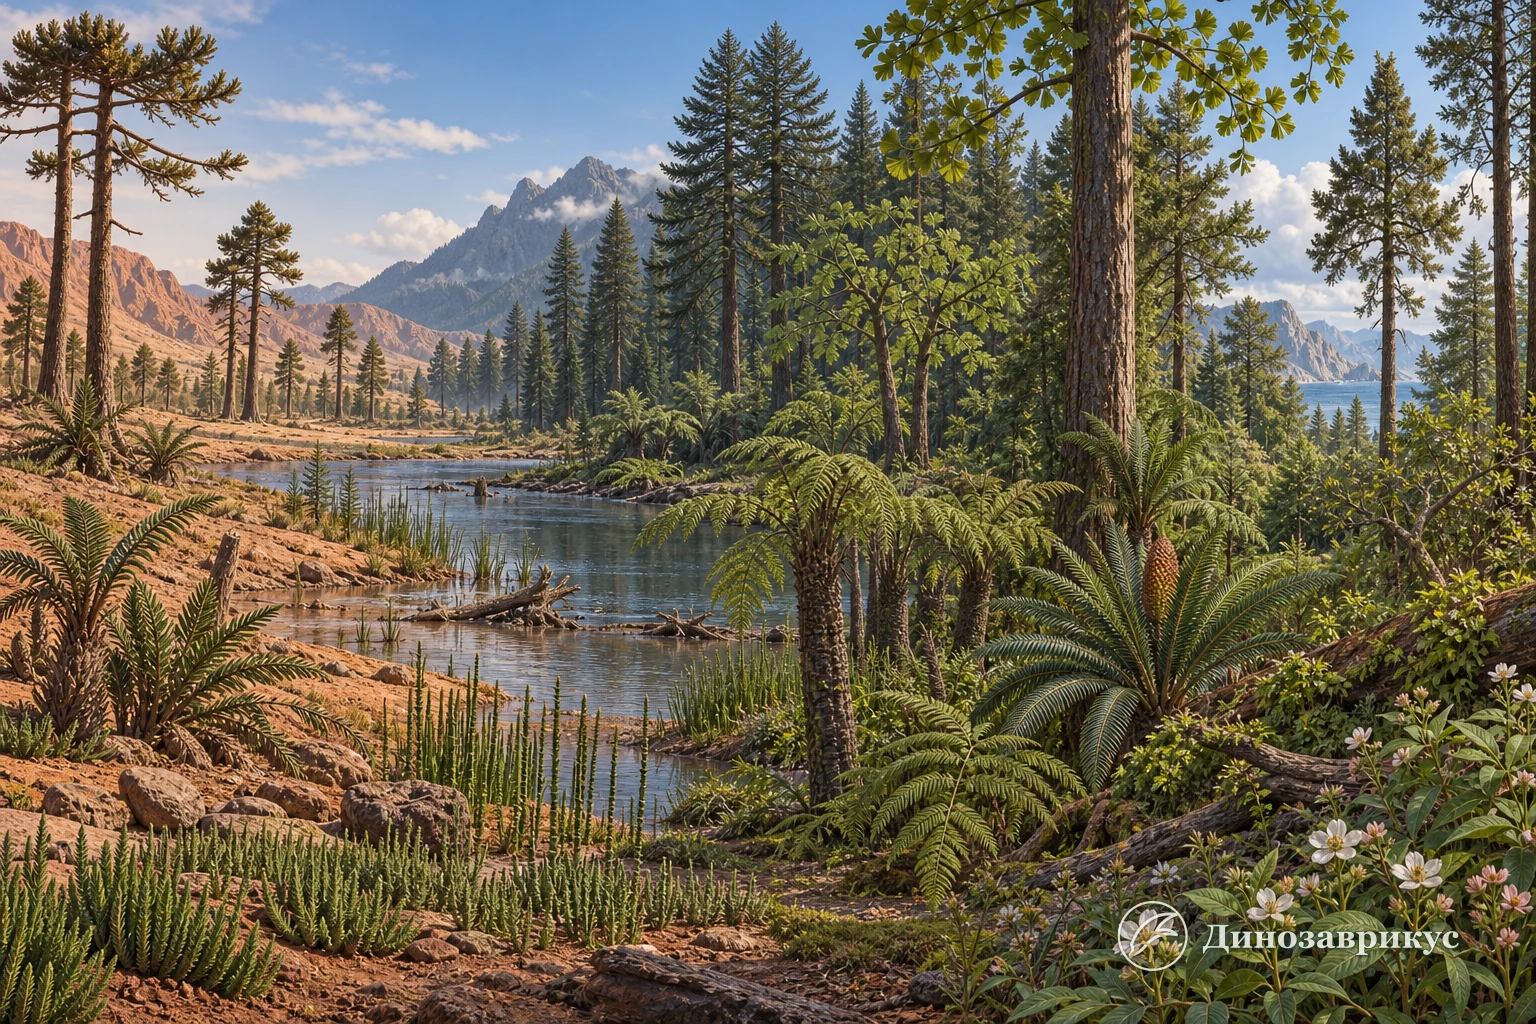
Мезозой продолжался около 186 миллионов лет, и единого «мезозойского леса» не существовало. Раннетриасовая пойма после крупнейшего массового вымирания, влажный юрский лес и позднемеловое редколесье отличались друг от друга не меньше, чем современные тайга и саванна. Менялись климат, положение материков, состав почв и сами группы растений. Одни линии пережили всю эру, другие расцвели и исчезли, а покрытосеменные появились поздно и не сразу вытеснили прежнюю растительность.
Поэтому привычная картина с одинаковыми пальмовидными деревьями вокруг любого динозавра вводит в заблуждение. В мезозое уже существовали хвойные, гинкговые, саговники, папоротники, хвощи и плауновидные, но их сочетание зависело от времени и места. Беннеттитовые внешне напоминали саговники, хотя представляли отдельную вымершую ветвь. Настоящие пальмы и современные травяные луга для большей части эры не подходят.
Как палеоботаники восстанавливают растительный мир
Растение редко сохраняется целиком. Лист может оторваться и попасть в озеро, ствол переносится рекой, пыльца прилетает из другого района, а корни остаются там, где растение росло. Из-за этого один слой содержит смешанную и неполную выборку. Исследователь сопоставляет несколько видов свидетельств и сначала выясняет, как они оказались в породе.
Листья дают форму пластинки, рисунок жилок и строение края. Тонкая кутикула иногда сохраняет клетки кожицы и устьица. Их плотность и расположение помогают обсуждать газообмен, водный режим и состав атмосферы, но вывод зависит от родства растения и условий роста. Отдельный лист без шишки, семени или цветка нередко получает самостоятельное формальное название, потому что связать его с целым растением пока нельзя.
Пыльца и споры особенно полезны для сравнения последовательных слоёв. Их прочные оболочки сохраняются массово, поэтому резкая смена микрофоссилий может показать перестройку растительности даже при отсутствии крупных отпечатков. Однако ветер переносит пыльцу далеко, и её доля в осадке не равна площади, занятой растением.
Древесина сохраняет микроскопическое строение проводящих тканей, смоляные каналы и зоны роста. Корни в положении роста указывают на древнюю почву. Обугленные фрагменты свидетельствуют о пожаре, но не сообщают его причину без анализа слоя. Самые ценные находки соединяют органы одного растения или сохраняют репродуктивные структуры: шишки, семена, плоды и цветки.
Триас: восстановление после пермского кризиса
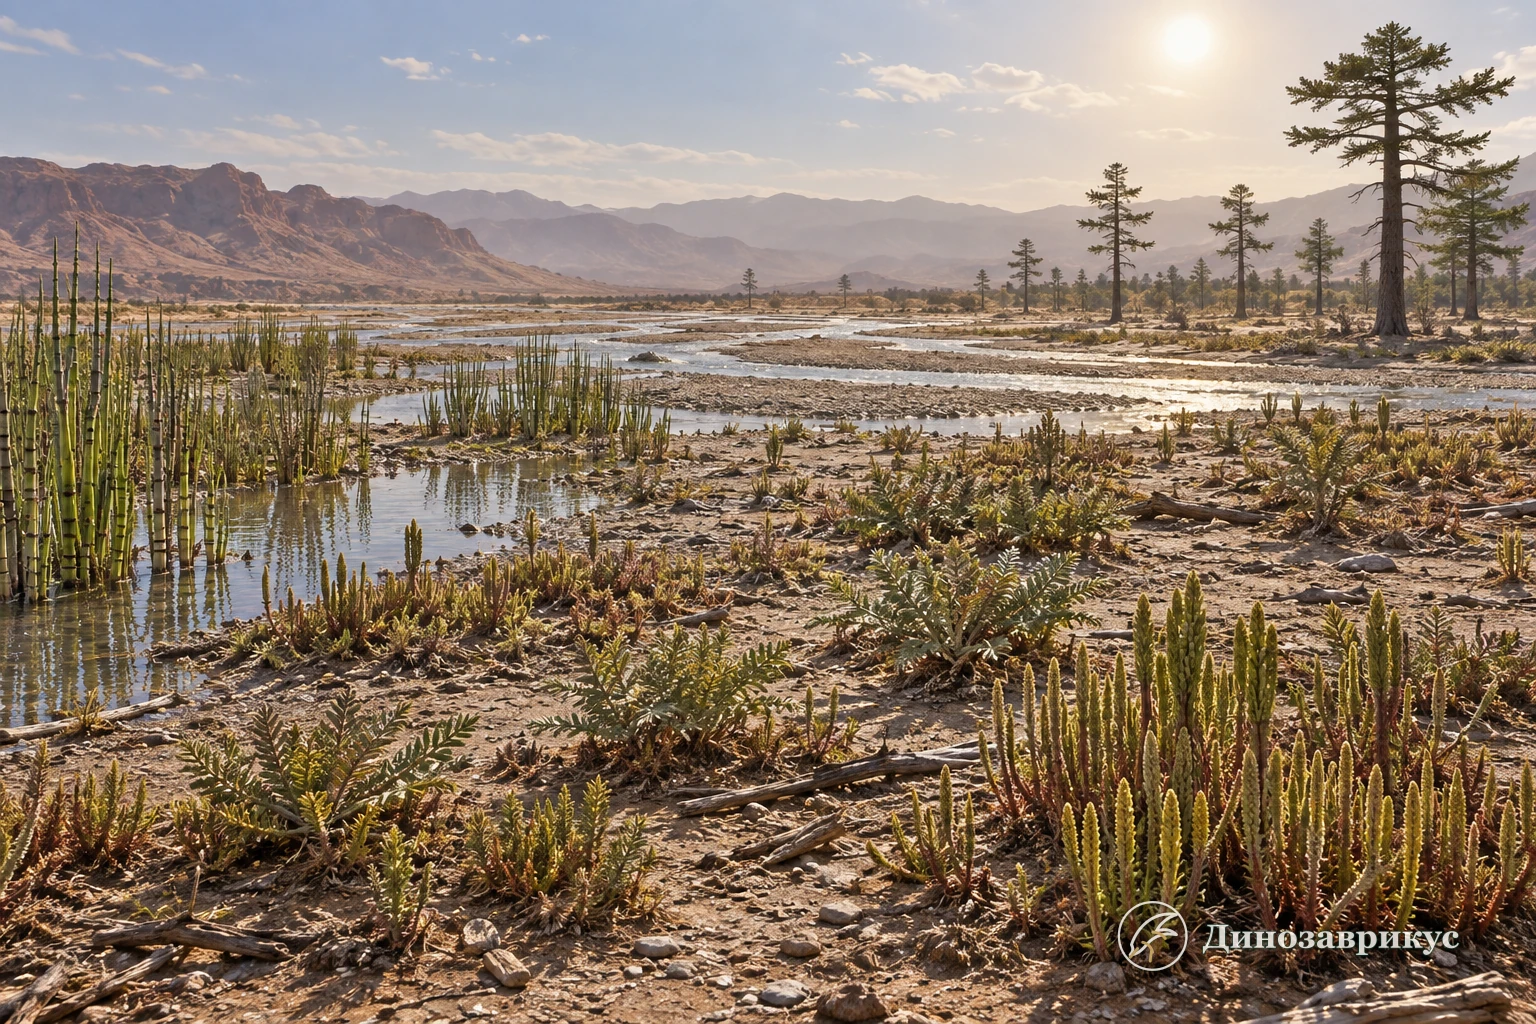
На границе перми и триаса морские и наземные экосистемы пережили тяжёлый кризис. Ископаемая летопись растений не показывает простого одновременного исчезновения всех крупных линий, однако лесной покров во многих областях разрушился, а восстановление заняло длительное время. Высокая температура, засушливость, пожары и нарушения круговорота воды создавали среду, в которой редкие леса чередовались с открытыми участками.
В раннем триасовом периоде низкие плауновидные могли быстро занимать нарушенный грунт. У водоёмов росли хвощи и папоротники, а голосеменные возвращались неравномерно. Скудость листьев и древесины в некоторых разрезах частично отражает настоящую потерю лесов, но частично зависит от того, где формировались осадки и насколько хорошо сохранялись наземные остатки.
Позднее растительные сообщества стали разнообразнее. В Гондване широко встречались семенные папоротники комплекса Dicroidium. Несмотря на название, они размножались семенами, а не спорами. В северных и южных широтах существовали разные хвойные, гинкговые и саговниковые линии. Облик сообщества определяли сезонность осадков и широта, поэтому один список родов не описывает весь триас.
В конце периода излияния Центрально-Атлантической магматической провинции сопровождались выбросами углекислого газа и резкими климатическими колебаниями. В некоторых разрезах древесная пыльца уступает место спорам папоротников и плаунов. Такой «папоротниковый всплеск» показывает быстрое заселение нарушенных территорий, но его сила и продолжительность различались по регионам.
Юра: леса голосеменных и споровых растений
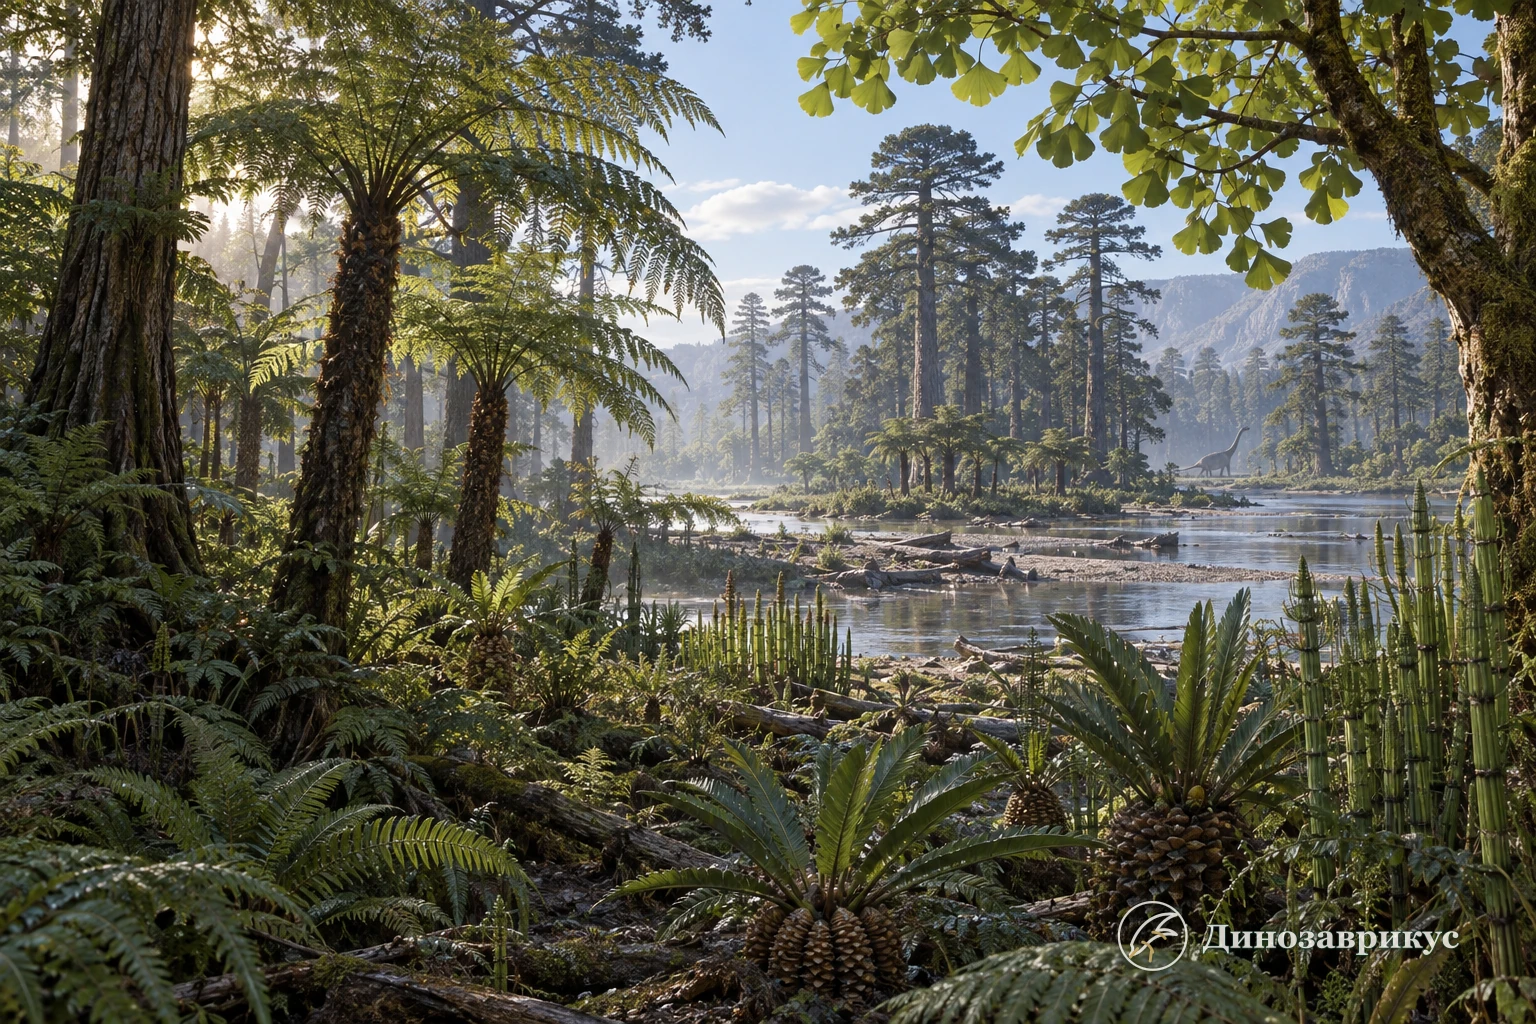
Во время юрского периода распад Пангеи перестраивал береговые линии и климат. Во многих областях верхний ярус леса образовывали хвойные. Среди них были родственники араукариевых, древние подокарповые линии, хейролепидиевые и другие группы, сочетания которых менялись от влажных побережий до сезонно сухих внутренних равнин.
Гинкговые были разнообразнее, чем сегодня, когда от всей ветви остался один современный вид. Саговники и внешне сходные с ними беннеттитовые занимали нижние ярусы и открытые участки. Их нельзя объединять под бытовым названием «саговые пальмы»: пальмами они не являются, а сходная крона скрывает разное строение репродуктивных органов.
Папоротники образовывали подлесок и быстро занимали влажный нарушенный грунт. Хвощи тяготели к берегам и поймам. Сохранялись отдельные семенные папоротники. Подробная реконструкция юрских лесов показывает эту ярусность, а обзор жизни под сенью араукарий раскрывает устройство одного из хвойных сообществ.
Фраза «эпоха саговников» удобна как ярлык, но преувеличивает их повсеместное господство. Во многих флорах доминировали хвойные, а часть листьев, прежде отнесённых к саговникам, могла принадлежать беннеттитовым. Количество отпечатков также зависит от близости к воде: береговая растительность имеет больше шансов попасть в осадок, чем деревья на хорошо дренированном возвышенном участке.
Были ли в юре цветы
Некоторые юрские окаменелости объявляли цветковыми растениями, но их признаки остаются спорными. Надёжная идентификация требует не общего сходства, а набора диагностических деталей, особенно репродуктивных органов. Молекулярные оценки иногда помещают происхождение линии глубже мелового периода, однако такая оценка не заменяет окаменелость и зависит от модели эволюции и калибровок.
Наиболее осторожный вывод состоит в том, что бесспорная и быстро расширяющаяся ископаемая летопись покрытосеменных начинается в раннем мелу. Возможный более ранний скрытый этап остаётся научной гипотезой. Отдельно разобрать границу доказанного и предполагаемого помогает материал о том, что росло до расцвета покрытосеменных.
Мел: распространение цветковых растений
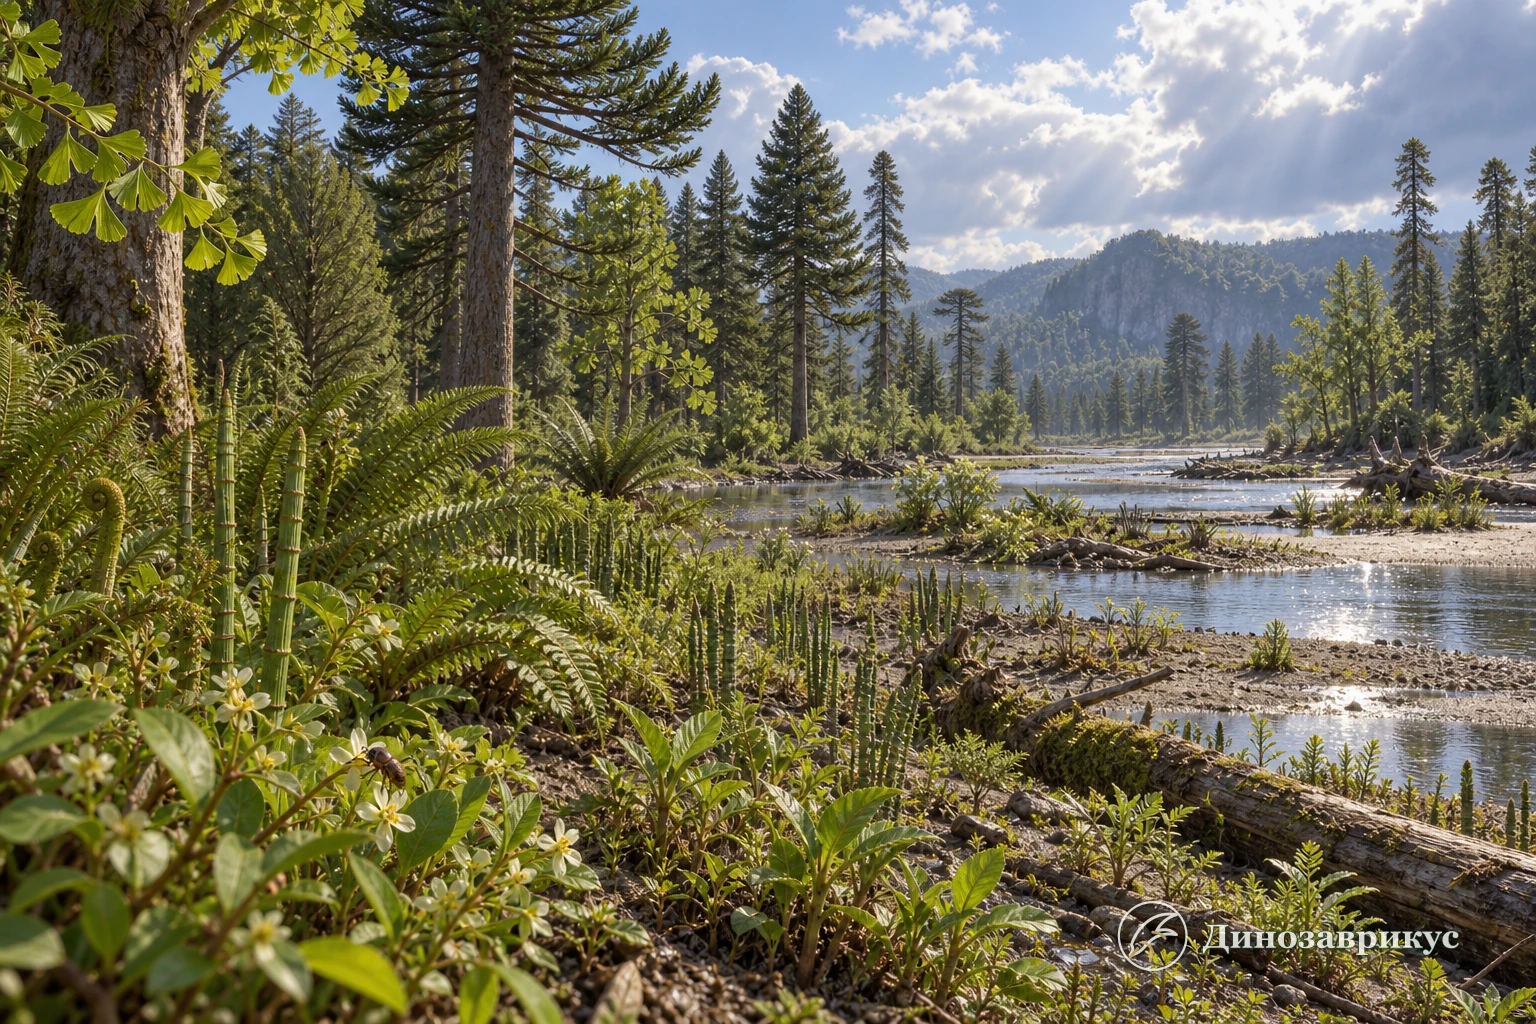
В начале мелового периода привычные голосеменные и папоротники по-прежнему занимали важное место. Затем в пыльцевой летописи, листьях и репродуктивных органах становится всё заметнее новая ветвь – покрытосеменные. Ранние представители часто были небольшими растениями влажных берегов, пойм и других регулярно нарушаемых местообитаний. Их нельзя представить уменьшенными копиями современных садовых цветов.
Примерно от середины раннего до начала позднего мела разнообразие цветковой пыльцы и листьев быстро росло. Позже появились многочисленные древесные формы и сложные лесные сообщества. Процесс не был синхронным: в одних регионах покрытосеменные рано заняли подлесок и речные берега, в других хвойные ещё долго преобладали в верхнем ярусе.
Высокая плотность жилок у многих цветковых листьев могла поддерживать интенсивный перенос воды и фотосинтез во влажной среде. Это одна из причин их экологического успеха, но не единственное объяснение. Быстрый жизненный цикл, особенности сосудов, разнообразие способов опыления и расселения семян действовали вместе и проявлялись по-разному у разных линий.
Насекомые, цветы и осторожность с коэволюцией
Появление цветков изменило отношения растений и животных, однако насекомые опыляли семенные растения ещё до меловой радиации покрытосеменных. Длиннохоботковые насекомые могли питаться выделениями репродуктивных органов голосеменных. Позднее жуки, мухи, перепончатокрылые и другие группы стали использовать цветки, но не каждая синхронная радиация доказывает прямую взаимную адаптацию.
Ископаемый цветок показывает строение органа, пыльца на теле насекомого – возможный перенос, а форма ротового аппарата – доступный способ питания. Только сочетание таких данных позволяет обсуждать конкретную связь. Красочная сцена с «первой пчелой у первого цветка» остаётся художественной реконструкцией, если прямого комплекса находок нет.
Были ли в мелу травы
Фитолиты, найденные в позднемеловых копролитах динозавров из Индии, показывают, что ранние злаки уже существовали и попадали в пищевые цепи. Фитолит – микроскопическое кремнезёмное образование в ткани растения. Его форма помогает распознавать некоторые крупные группы даже тогда, когда листья не сохранились.
Эта находка не превращает поздний мел в мир современных степей. Злаки могли быть редкими компонентами влажных или прибрежных местообитаний. Обширные травяные экосистемы стали характерны намного позже, в кайнозое. Поэтому густой газон под ногами любого мелового динозавра остаётся плохой универсальной декорацией.
Растения как пища и архитектура экосистемы
Растения создавали ярусы, удерживали почву, меняли течение воды и определяли доступную высоту кормления. Низкие папоротники и хвощи были доступны небольшим животным, тогда как кроны хвойных могли использовать длинношеие завроподы. Клюв, зубы и челюстная механика показывают, какую пищу животное могло обрабатывать, но сами по себе редко называют точный вид растения.
Прямые данные дают содержимое пищеварительного тракта, копролиты и растительные частицы между зубами. Даже они фиксируют одну или несколько трапез и могут быть изменены перевариванием. Микроизнос зубов отражает свойства пищи на сравнительно коротком отрезке времени. Сопоставление таких следов с пыльцой, листьями и древесиной из того же геологического контекста надёжнее, чем вывод по форме зуба в одиночку.
Крупные растительноядные вытаптывали почву, ломали ветви, переносили семена и возвращали питательные вещества с помётом. Масштаб этих эффектов оценивают моделями и сравнением с современными экосистемами, поэтому конкретные цифры остаются неопределёнными. Обзор того, как динозавры и растения влияли друг на друга, отделяет прямые следы питания от более широких экологических гипотез.
Полярные леса жили без полярной ночи в привычном смысле климата
В мезозое высокие широты были значительно теплее современных, и леса росли за Полярным кругом. Тёплый климат не отменял сезонного света: растения месяцами жили при очень коротком дне или темноте, а летом получали почти непрерывное освещение. Листопадность некоторых полярных форм могла быть приспособлением к сезонности, хотя один признак древесины редко позволяет установить причину наверняка.
Полярный лес не был тропическим лесом, случайно перенесённым на север. Его продуктивность, состав и высота зависели от температуры, влаги, почв и продолжительности светового сезона. Именно поэтому географическое положение находки столь же важно, как её возраст.
Конец мела: удар, пожары и папоротниковое восстановление
На границе мела и палеогена удар астероида вызвал резкое сокращение освещённости, охлаждение, пожары и разрушение пищевых цепей. В некоторых разрезах сразу над пограничным слоем резко возрастает доля спор папоротников. Они быстро заселяли открытый грунт после гибели части лесов, поэтому «папоротниковый всплеск» служит одним из признаков экологического восстановления.
Картина различалась между регионами. Не все растения исчезли, а выживание зависело от семян, подземных органов, покоящихся стадий и местных условий. После краткого доминирования пионерных форм лесные сообщества собирались заново уже в кайнозое. Птицы пережили кризис, но остальные динозавры исчезли; эту связь растений, животных и геологических событий можно проследить дальше через центральную энциклопедию динозавров.
Как читать реконструкцию мезозойского пейзажа
Надёжная иллюстрация привязана к периоду, формации и широте. Она использует растения, известные из соответствующих слоёв, и показывает вероятную структуру сообщества. При этом цвет коры, точная густота леса, форма целой кроны и соседство конкретных видов часто восстановлены косвенно.
Если в подписи указано лишь «мезозой», сцена почти неизбежно смешивает разные эпохи. Проверяйте три вопроса: какие органы растений действительно найдены, были ли они обнаружены в одном слое и какая часть изображения является художественным заполнением пробелов. Так ископаемая флора перестаёт быть зелёным фоном и становится самостоятельной историей эволюции.
Частые вопросы
Какие растения были самыми распространёнными в мезозое?
Единого лидера для всей эры не было. Во многих триасовых и юрских лесах важную роль играли хвойные, рядом существовали гинкговые, саговники, беннеттитовые, папоротники и хвощи. В мелу быстро увеличивалось разнообразие покрытосеменных, но темп и масштаб различались по регионам.
Росла ли трава во времена динозавров?
Да, ранние злаки существовали как минимум к позднему мелу: их фитолиты найдены в копролитах динозавров. Однако доказательств повсеместных мезозойских газонов и степей нет. Большие травяные экосистемы распространились позже.
Были ли саговники основной пищей динозавров?
Некоторые динозавры могли есть саговники, но универсального рациона для всех растительноядных не существовало. Доступная пища зависела от места и времени, а прямые свидетельства дают лишь отдельные содержимые кишечника, копролиты и растительные частицы.
Почему на реконструкциях мезозоя так много папоротников?
Папоротники были заметной частью многих сообществ, особенно влажного подлеска и нарушенных участков. Кроме того, их листья и споры хорошо попадают в осадки возле воды. Большое число находок не означает, что они повсюду покрывали всю поверхность суши.