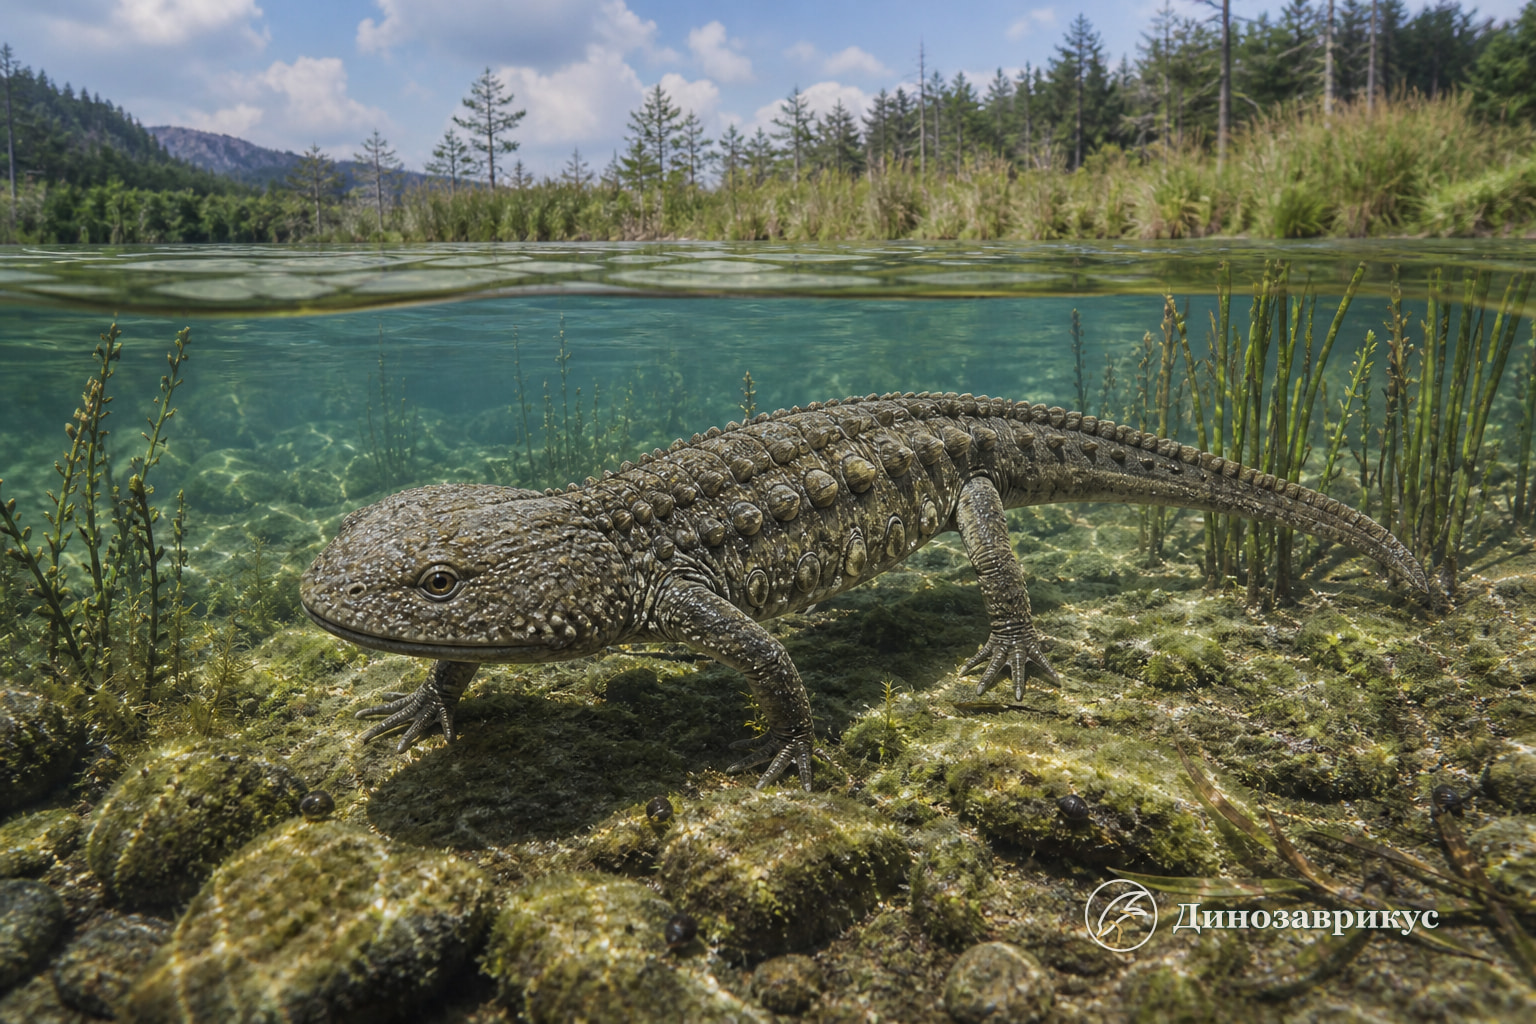
Хелотритон (Chelotriton) – вымерший европейский тритон с необычно тяжёлым покровным скелетом. Его череп был широким и бугорчатым, над плечевым поясом располагались крупные кожные окостенения, а передние рёбра несли вытянутые отростки. Из-за этих признаков животное иногда описывают как «бронированное», хотя сплошного панциря, подобного черепашьему, у него не было.
Лучшие скелеты происходят из озёрных отложений Германии. Они позволяют увидеть не только отдельные позвонки или челюсти, но и взаимное положение черепа, туловища, конечностей и остеодерм. При этом вопрос о том, все ли европейские находки относятся к одному виду Chelotriton paradoxus, остаётся открытым.
Краткий профиль
| Параметр | Данные |
|---|---|
| Научное название | Chelotriton, типовой вид C. paradoxus |
| Автор рода | Огюст Помель, 1853 |
| Группа | Caudata, Salamandridae |
| Возраст лучших находок | поздний олигоцен и миоцен |
| Распространение | Европа |
| Особые признаки | скульптированный череп, остеодермы, отростки рёбер |
История названия и находок
Помель установил род в середине XIX века по французскому материалу. Позднее похожие ископаемые получали другие названия, а объём Chelotriton пересматривали по мере появления более полных скелетов. Неполнота старых типов и различия между местонахождениями до сих пор осложняют границы вида.
Особенно важен Энспель в земле Рейнланд-Пфальц. Это позднеолигоценовое мааровое озеро, где тонкий осадок сохранил несколько почти сочленённых особей. Возраст комплекса соответствует уровню MP 28. Другая замечательная серия происходит из миоценового Рандекского маара. У этих животных хорошо видны окостенения и детали черепной скульптуры.
Сравнение черепов из Энспеля и Рандека выявило различия в пропорциях. Исследования морфопространства показали, что привычное объединение обеих выборок в C. paradoxus не обязательно верно. Пока нет достаточно убедительного пересмотра типового материала, безопаснее говорить о представителях рода и отдельно указывать происхождение образцов.
Череп и зубы
Череп хелотритона имел широкий параболический контур и короткую морду. Наружная поверхность покровных костей несла крупные бугорки и гребешки. Такая гипероссфикация развивалась по мере роста и особенно заметна у взрослых особей. На заднебоковой части черепа квадратоскуловая область образовывала от трёх до пяти выступов.
Челюсти были снабжены мелкими зубами, подходящими для удержания небольшой добычи. Сила укуса напрямую не измеряется, а массивная крыша черепа не доказывает охоту на крупных животных. Форма головы сочетала пищевую функцию с общим усилением покровных костей.
Рёбра и кожные окостенения
Самые заметные особенности посткраниального скелета связаны с передней частью туловища. Третье ребро было удлинено, а ряд рёбер нёс эпиплевральные отростки. Рядом лежали крупные остеодермы, заметно превосходившие мелкие покровные окостенения многих других саламандр.
У современных крокодиловых и ребристых тритонов рёбра участвуют в защитных системах, поэтому аналогичная функция правдоподобна и для хелотритона. Однако ископаемый скелет не показывает движение мягких тканей во время нападения хищника. Утверждение, что рёбра обязательно прокалывали кожу, остаётся функциональной гипотезой, а не прямым наблюдением.
Размер, рост и образ жизни
Длина туловища взрослых особей без хвоста составляла примерно 10–14 сантиметров. Полная длина была больше, но кончик хвоста сохранён не у каждого скелета. Степень окостенения запястья и предплюсны менялась с возрастом: у крупных животных некоторые элементы оформлены лучше. Черепная скульптура также усиливалась в ходе роста.
Сочленённые скелеты на дне мааровых озёр и строение тела согласуются с преимущественно водной жизнью. Это не доказывает, что животные никогда не выходили на сушу. Экологию разных популяций нельзя считать одинаковой лишь по родовому названию, особенно если энспельская и рандекская формы окажутся разными видами.
Рацион непосредственно не сохранился. Вероятными объектами охоты были личинки насекомых, черви, ракообразные и небольшие позвоночные. Соседство с ископаемыми лягушками, такими как эопелобат, не говорит о регулярной охоте именно на них. Другой крупный водный хвостатый, габрозавр, жил раньше и не встречался с хелотритоном.
Родство и значение
Хелотритона относят к семейству настоящих саламандр Salamandridae, часто к кругу Pleurodelini. Сочетание гипероссированного черепа и особенностей рёбер сближает его с ребристыми тритонами, но точное положение зависит от набора видов и признаков в анализе. Необычная морфология делает род важным примером того, насколько разнообразными были кайнозойские саламандриды Европы.
В каталоге древних амфибий его стоит отличать от гигантских саламандр и от темноспондилов. Даже крупный североамериканский батрахосауроидес принадлежал другой ветви хвостатых и известен по гораздо менее полному материалу.
Что показывает реконструкция
На изображении воспроизведены широкая голова, грубая поверхность покровных костей и крупные окостенения в передней части туловища. Их форма основана на скелетах. Цвет кожи, мягкие складки, положение животного и поведение у дна художественны. Хелотритон не был покрыт роговой чешуёй, поэтому слово «броня» здесь описывает костные структуры, а не внешний покров рептилии.
Частые вопросы
Хелотритон был настоящим тритоном?
Да. Его относят к хвостатым амфибиям семейства Salamandridae, хотя точное место внутри семейства и границы вида продолжают обсуждаться.
Почему его называют бронированным?
У животного были массивно скульптированные кости черепа, крупные остеодермы и специализированные рёбра. Вместе они усиливали тело, но не образовывали сплошного панциря.
Где найдены наиболее полные скелеты?
Особенно хорошо сохранившиеся особи происходят из позднеолигоценового озера Энспель и миоценового Рандекского маара в Германии.
Был ли хелотритон полностью водным?
Озёрная тафономия и строение скелета поддерживают преимущественно водный образ жизни. Полную утрату наземной активности по этим данным доказать нельзя.