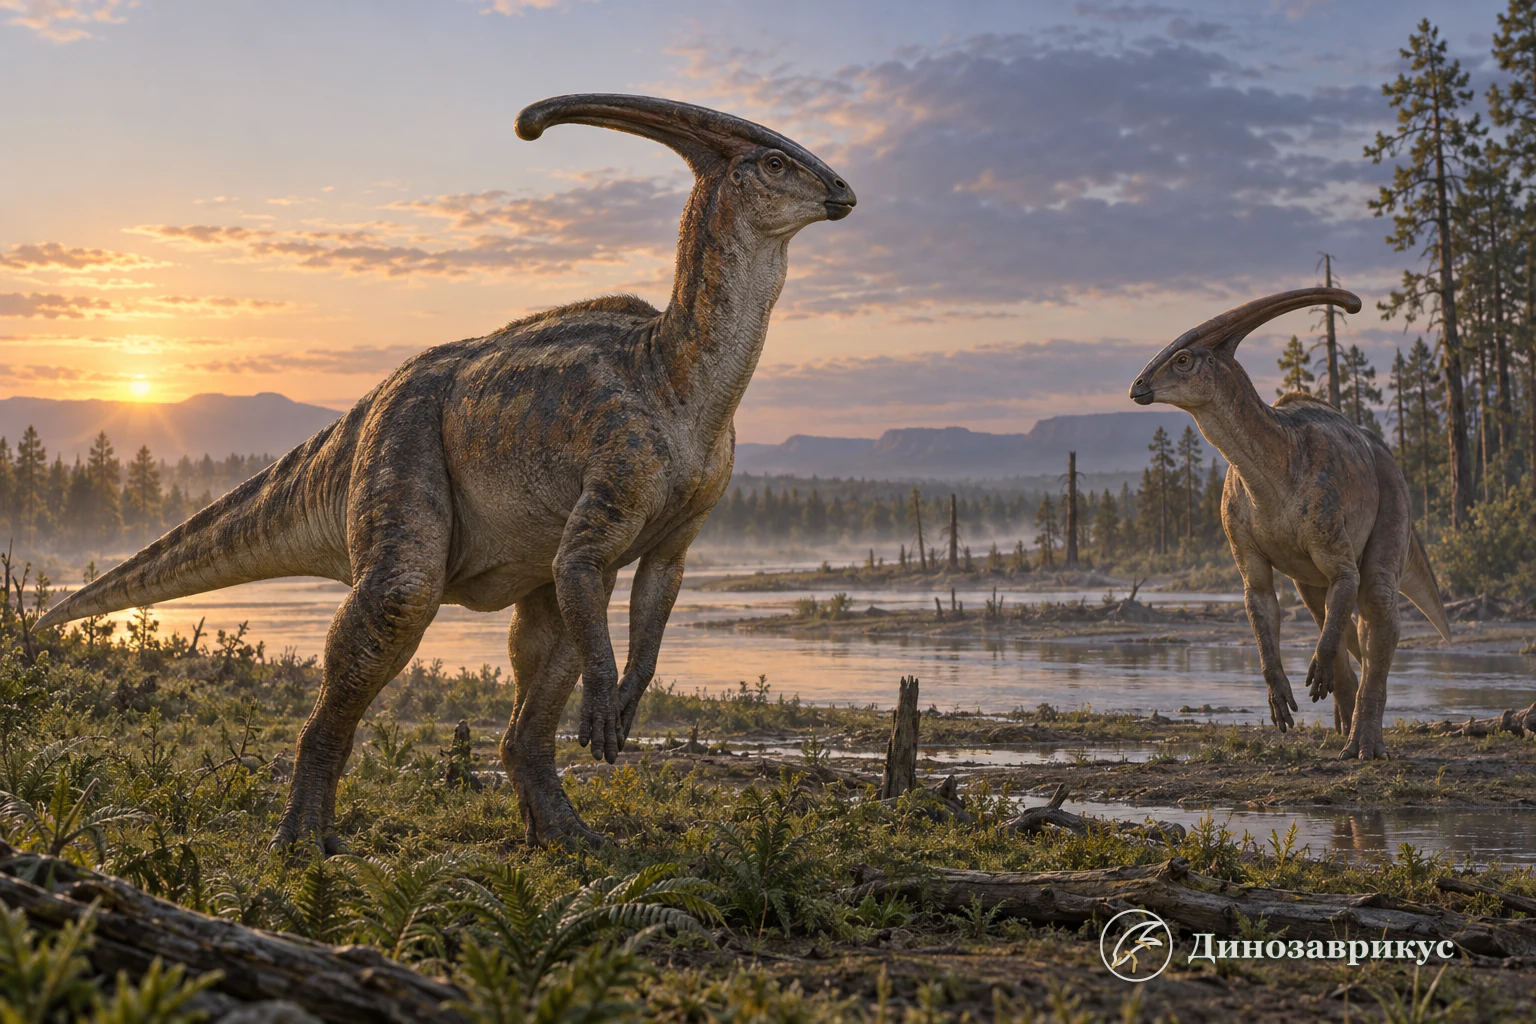
Ни один человек не слышал нептичьего динозавра, а звук не оставляет окаменелости. Поэтому для тираннозавра, велоцираптора или паразауролофа нельзя восстановить одну бесспорную запись. Киношный рёв создают из голосов современных животных и звуковых эффектов. Он может быть выразительным, но не становится научным фактом.
У науки всё же есть несколько независимых путей. Редкие кости гортани показывают часть голосового тракта. Полые гребни позволяют рассчитать резонансы. Внутреннее ухо указывает, какие частоты животное могло воспринимать. Птицы и крокодилы задают сравнительные границы, потому что это две живые ветви архозавров. Каждая линия данных отвечает только на часть вопроса.
Из чего вообще складывается голос
Чтобы возник голос, нужен источник колебаний, поток воздуха и тракт, который изменяет спектр. У большинства наземных позвоночных источником служит гортань в верхней части дыхательного пути. У современных птиц основной звук рождается ниже, в сиринксе возле разделения трахеи на бронхи. Клюв, язык, глотка, пищевод, носовые полости и мягкие мешки затем фильтруют этот звук.
От нептичьих динозавров обычно остаются кости черепа, подъязычного аппарата и иногда трахеальные кольца. Большинство хрящей, мембран и мышц исчезает. Даже хорошо сохранившийся череп не сообщает, какая ткань колебалась, как животное управляло выдохом и насколько широко открывало рот. Поэтому форма кости ограничивает варианты, но редко выбирает единственный тембр.
Размер тела тоже не решает задачу. Крупное животное часто способно создавать более низкие сигналы, поскольку у него длиннее дыхательный путь и больше резонирующие полости. Но частота зависит не только от длины тела: маленькая колеблющаяся мембрана может дать высокий тон, а длинная трахея и воздушные мешки затем изменят его спектр. Нельзя взять массу динозавра и напрямую получить ноту.
Почему птицы и крокодилы важны
Птицы являются живыми динозаврами, а крокодилы представляют другую современную ветвь архозавров. Если сходный признак встречается у обеих групп, его наличие у их общего предка становится правдоподобнее. Если механизмы различаются, для вымершей формы остаётся несколько вариантов.
Так и происходит со звуком. Крокодилы используют гортань, птицы – сиринкс, но обе группы способны к шипению, открыторотовым крикам и низким сигналам с закрытым ртом. Сравнение поддерживает саму возможность разнообразной акустической коммуникации у динозавров. Оно не превращает гуканье аллигатора или голос казуара в запись конкретного вида.
Подробный разбор родства находится в материале о том, почему птицы считаются потомками динозавров. Для звуковой реконструкции это родство даёт набор проверяемых аналогов, а не готовую копию поведения.
Гортань пинакозавра: редкая прямая находка
В экземпляре анкилозавра Pinacosaurus grangeri IGM 100/3186 сохранились элементы подъязычно-гортанного аппарата. Исследователи описали перстневидный хрящ, парные черпаловидные элементы и связанные с ними кости. Это старейшая столь информативная ископаемая гортань и первая описанная у нептичьего динозавра.
По общему составу она похожа на гортань других рептилий. При этом крупный перстневидный элемент, длинные черпаловидные элементы и подвижное сочленение напоминают особенности птиц, у которых гортань меняет форму голосового тракта. Авторы предположили, что пинакозавр мог гибко модифицировать звук и пользоваться вокализацией птичьего типа.
Особенно важна сохранность взаимного положения деталей. Отдельная маленькая кость могла бы быть ошибочно принята за часть другого аппарата. У пинакозавра элементы лежали в области горла и образовывали анатомически согласованный комплекс. Сравнение с современными птицами, крокодилами и ящерицами позволило проверить названия частей и возможные движения сочленения.
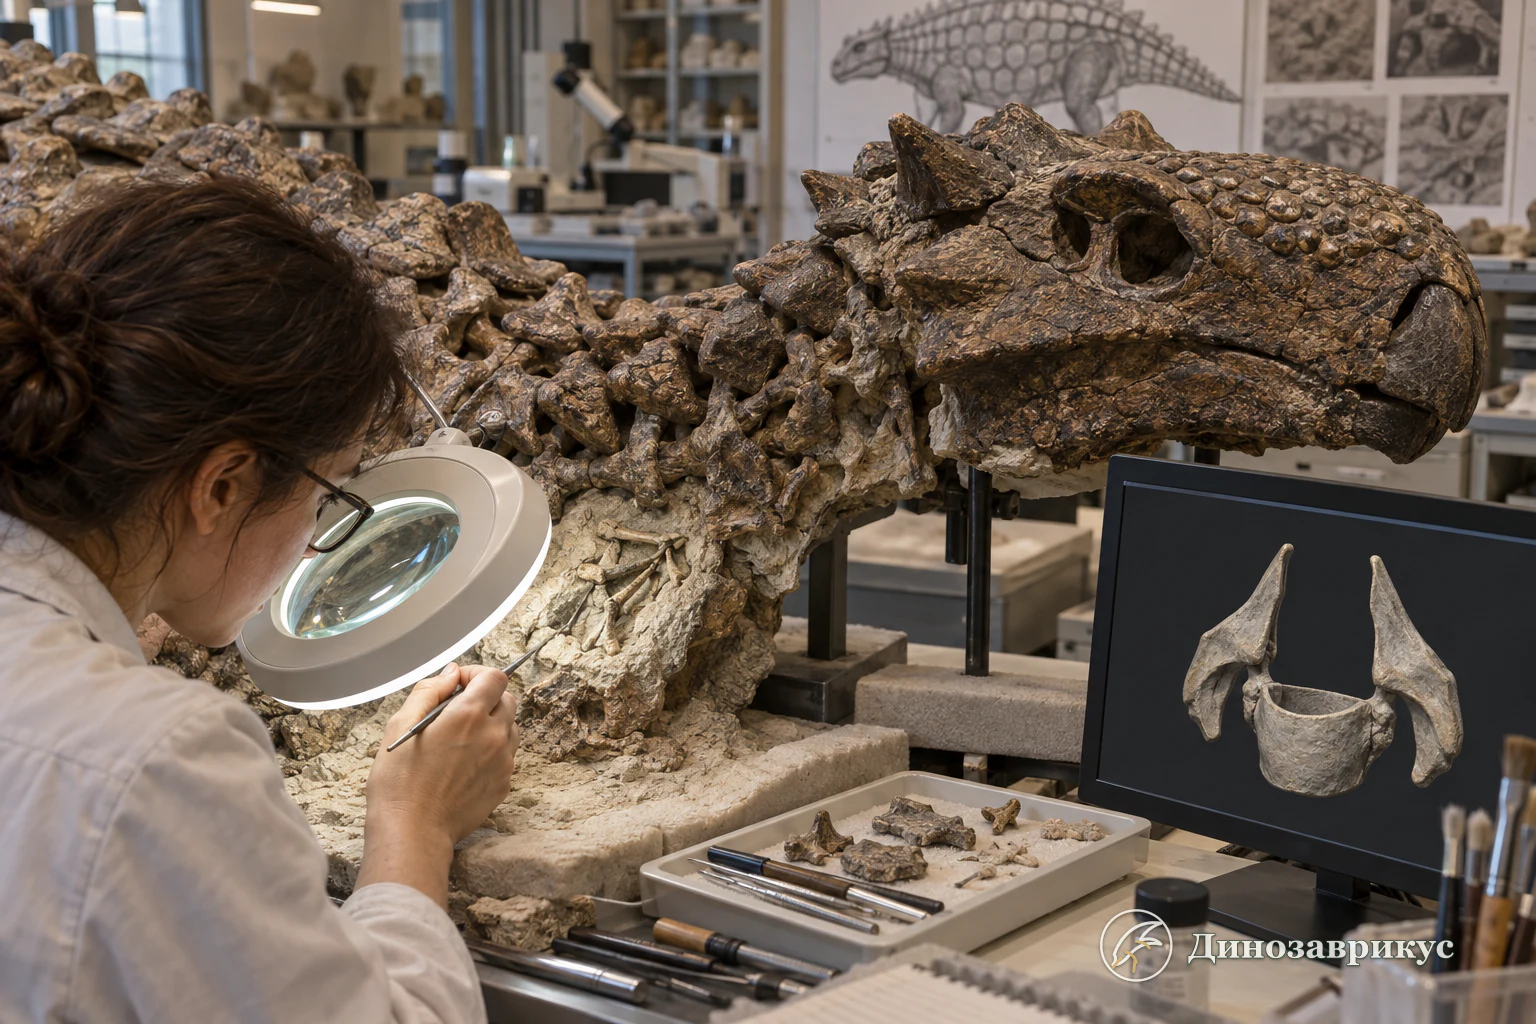
Из находки не следует, что пинакозавр пел как современная птица. Не сохранились мембраны, мышцы и полный мягкий тракт, а сиринкс у него не найден. Изображение показывает общий принцип лабораторного анализа, а не документальную фотографию экземпляра IGM 100/3186.
Был ли у нептичьих динозавров сиринкс
Самый древний описанный мезозойский сиринкс принадлежит Vegavis iaai, птице, жившей в Антарктике примерно 69–66 млн лет назад. Минерализованные кольца и асимметрия бронхов показывают, что у этой ранней представительницы линии современных птиц уже существовал развитый источник звука. Находка доказывает способность сиринкса сохраняться в подходящих условиях.
У нептичьих динозавров сравнимый орган пока не обнаружен. Это отсутствие нельзя превратить в окончательное доказательство: ранний сиринкс мог быть плохо минерализован и редко попадать в ископаемую летопись. Но переносить устройство вегависа на тираннозавра тоже нельзя. Текущие данные допускают, что сложный птичий сиринкс сформировался поздно в эволюции птиц.
Статья о первых птицах показывает, что признаки современного полёта и тела возникали мозаично. Голосовой аппарат, вероятно, менялся таким же образом: разные части системы появлялись не одновременно.
Закрытый рот не означает тишину
Некоторые птицы издают гул, воркование и уханье с закрытым клювом, надувая область глотки или пищевода. Такие сигналы обычно подчёркивают низкие частоты. Крокодилы тоже способны создавать низкий звук без широко раскрытой пасти. Сравнительный анализ показывает, что закрыторотовая вокализация возникала у птиц независимо много раз, чаще в крупных линиях.
Для части нептичьих динозавров такая способность правдоподобна, но остаётся выводом по живым родственникам и размерам тела. Нельзя утверждать, что все крупные динозавры гудели или что это был их главный способ общения. Разные группы могли сочетать закрыторотовые сигналы, шипение, более высокие крики и невокальные шумы.
Низкая частота имеет полезные физические свойства: она слабее затухает на расстоянии и огибает небольшие препятствия лучше высокого писка. В лесу, на пойме или внутри большой группы такой сигнал мог быть удобен для дальней связи. Но польза не доказывает наличие поведения. Для конкретного таксона сначала нужны подходящие анатомические структуры и слуховая чувствительность.
Обложка показывает один из допустимых сценариев: паразауролоф с закрытым клювом и слегка расширенным горлом. Положение тела и мягкие ткани художественно восстановлены. Находки не фиксируют сам момент звукоизвлечения.
Паразауролоф и полый гребень
Длинный гребень паразауролофа образован костями черепа, внутри которых проходят удлинённые носовые каналы. Воздух шёл от ноздрей через гребень и возвращался к дыхательному пути. Такая система могла работать как резонатор, изменяя и усиливая определённые частоты исходного звука.
Акустические расчёты полостей ламбеозаврин указывают прежде всего на низкочастотные резонансы взрослых животных. Это не означает, что гребень сам создавал звук по принципу духового инструмента. Источник колебаний должен был находиться в гортани или другом участке дыхательного пути, а гребень фильтровал получившийся сигнал.
Гребень также был заметен снаружи, а его форма различалась между видами и менялась с возрастом. Поэтому акустическая и зрительная функции не исключают друг друга. Естественный отбор мог одновременно сохранять узнаваемый силуэт и свойства воздушных каналов. Предположение о единственной функции хуже объясняет эту сложную конструкцию.
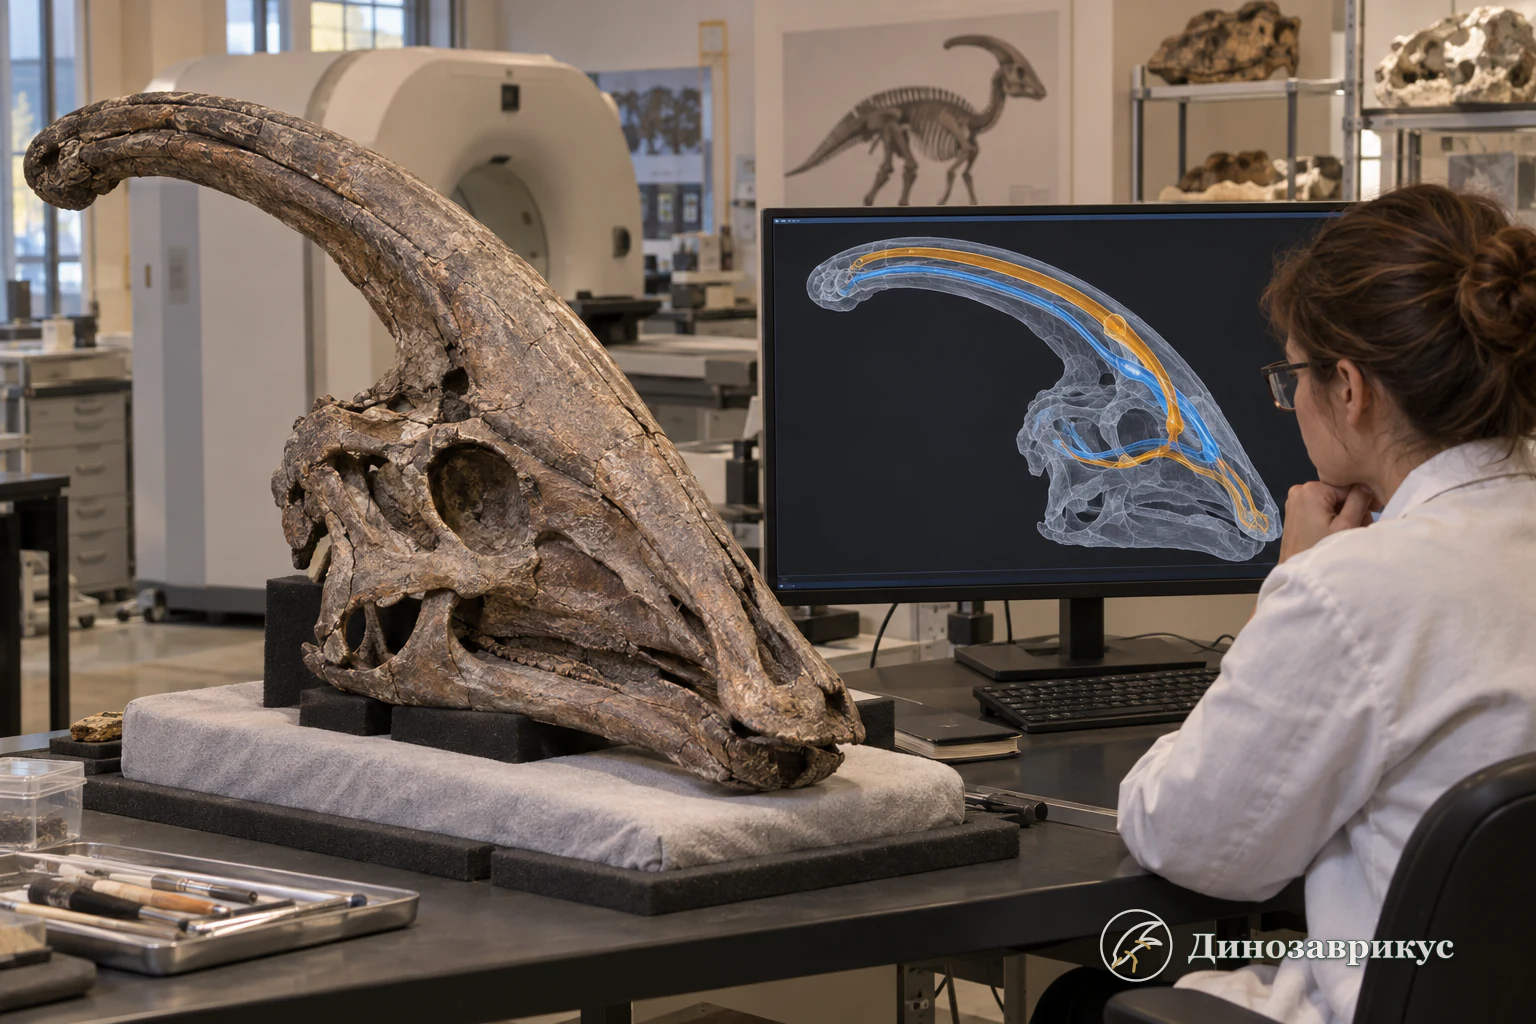
На иллюстрации цифровая модель подчёркивает путь воздуха, но не воспроизводит конкретный музейный скан. Геометрия настоящих каналов известна по черепам и томографии, тогда как слизистая, клапаны и другие мягкие ткани требуют допущений.
Молодые и взрослые могли звучать по-разному
Гребень ламбеозаврин менялся в течение роста. У очень молодого паразауролофа по прозвищу Джо он был коротким и только начинал развиваться, хотя животное уже достигло примерно четверти взрослой длины. Более короткий воздушный путь должен иметь другие резонансные свойства, обычно смещённые к более высоким частотам.
Различия между молодыми и взрослыми могли помогать распознавать возраст, но это функциональная гипотеза. Окаменелость прямо показывает форму ювенильного черепа, а акустический вывод следует из размеров полости. Реакцию стада на такой сигнал никто не наблюдал.
Похожая логика относится и к другим полым гребням. У ламбеозавра внешний силуэт и внутренние камеры отличались от паразауролофа, поэтому их резонансы не обязаны были совпадать.
Внутреннее ухо показывает приём, а не голос
КТ черепа позволяет восстановить костный лабиринт внутреннего уха. Удлинённый улитковый канал у живых архозавров связан с особенностями слухового диапазона. У ламбеозаврин его строение согласуется с чувствительностью к низким частотам, которые ожидаются от резонанса гребней. У тираннозаврид тоже описаны удлинённая улитка и обширные воздушные полости среднего уха, указывающие на значение низкочастотных звуков.
Совпадение предполагаемого сигнала и слуховой чувствительности усиливает гипотезу акустического общения. Но ухо не раскрывает источник звука. Животное могло слышать шаги, шум среды, добычу или голоса сородичей. Даже оценённая оптимальная частота не сообщает мелодию, ритм и громкость.
Более широкий контекст сенсорных реконструкций разобран в статье про мозг динозавров. Эндокаст и лабиринт сохраняют форму пространства внутри кости, а не сами нервные ткани.
Как учёные строят акустическую модель
Сначала череп сканируют и отделяют породу от кости на серии срезов. Затем восстанавливают внутреннюю поверхность носового канала, исправляя трещины и недостающие участки. Цифровую полость превращают в акустическую трубу или модель движения воздуха. Расчёт показывает частоты, на которых эта форма должна особенно хорошо резонировать.
Результат зависит от длины и диаметра канала, температуры воздуха, положения отверстий и границ мягких тканей. Разные варианты этих параметров дают разные спектры. Поэтому корректная работа публикует геометрию и допущения, а итог обозначает как диапазон возможных резонансов.
Затем модель можно проверить на физической трубе или просчитать численно. Если разные методы дают близкие основные резонансы, вывод о свойствах полости становится надёжнее. Аудиофайл для музея получают, подавая выбранный искусственный сигнал через рассчитанный фильтр. Этот файл демонстрирует результат модели, но исходный сигнал всё равно задан человеком.
Даже физически верный резонанс ещё не является полной вокализацией. Для записи понадобились бы форма сигнала от источника, движения гортани, давление выдоха, положение рта и поведение животного. Именно этих данных чаще всего нет.
Почему тираннозавр не обязан был рычать
Крупных хищных динозавров в кино озвучивают смесью голосов млекопитающих, птиц, рептилий и обработанного шума. Для тираннозавра ископаемое внутреннее ухо поддерживает чувствительность к низким частотам, но голосовой источник и полный тракт неизвестны. Низкий гул возможен; узнаваемый львиный рёв не подтверждён.
С велоцираптором неопределённость ещё заметнее. Его эндокраниальная анатомия изучена, однако она не доказывает экранные щелчки, шипение или крики. Малый размер и близость к птицам расширяют набор сравнений, но не выбирают один звук.
Лучший научный ответ для этих животных – несколько акустически и анатомически допустимых вариантов. Чем точнее реконструкция обещает единственный узнаваемый голос, тем больше в ней художественного решения.
Общались ли динозавры голосом
Редкая гортань, возможные резонаторы и развитый слух делают голосовую коммуникацию весьма вероятной по крайней мере у части групп. Сигналы могли поддерживать контакт, предупреждать об угрозе, сопровождать демонстрацию, помогать узнавать сородича или возрастную стадию. У живых архозавров звук используется во многих таких ситуациях.
Однако конкретную функцию нужно подтверждать отдельно. Костное скопление не записывает перекличку, а полый гребень не доказывает брачный зов. Материал о стадной жизни динозавров показывает, почему даже совместные следы и массовые находки требуют проверки альтернативных объяснений.
Зрительные сигналы могли быть не менее важны. Гребни, воротники, рога, позы и окраска действовали на близком расстоянии без звука. Один орган также мог совмещать функции: полый гребень одновременно был заметным украшением и акустическим фильтром.
Звуки без голосового аппарата
Динозавры создавали шум не только голосом. Шаги, движение растительности, соприкосновение тела с грунтом и удары челюстей имели реальные физические источники. Некоторые пернатые виды могли производить механические звуки перьями, как это делают отдельные современные птицы, но прямое доказательство такого поведения у конкретного нептичьего динозавра отсутствует.
Громкость шагов нельзя восстановить из массы одной формулой. На неё влияли скорость, походка, мягкость грунта и строение стопы. Идеи о хлопках хвоста, барабанных ударах или щёлканье когтями нужно проверять по прочности, диапазону движения и износу костей. Без таких следов они остаются сценариями.
Что можно считать надёжной реконструкцией
Надёжная звуковая реконструкция называет конкретный экземпляр и отделяет четыре уровня. Кость гортани или геометрия носового канала – наблюдение. Возможность изменять звук и рассчитанный резонанс – вывод из анатомии. Назначение сигнала – поведенческая гипотеза. Финальная аудиозапись – художественная демонстрация выбранной модели.
Полезная запись показывает несколько вариантов и объясняет, какие параметры менялись. Она не маскирует неизвестные мягкие ткани под точный результат. Особенно осторожно следует относиться к частоте, громкости и тембру: эти свойства зависят от частей системы, которые почти никогда не сохраняются.
Итог
Динозавры почти наверняка не были немыми, но их точные голоса неизвестны. Гортань пинакозавра даёт редкое прямое свидетельство сложного голосового тракта. Сиринкс вегависа показывает, что развитый птичий источник звука существовал к концу мела, однако у нептичьих динозавров он пока не найден. Полый гребень паразауролофа мог фильтровать низкие частоты, а внутреннее ухо ряда динозавров согласуется с их восприятием.
Эти данные поддерживают низкие гулы, закрыторотовые сигналы и разнообразные крики как возможные варианты для разных групп. Они не подтверждают один универсальный рёв. Самая честная реконструкция звучит как проверяемая гипотеза с диапазоном, а не как найденная запись мезозойского мира.
Частые вопросы
Правда ли, что тираннозавр рычал как в кино?
Нет данных, которые подтверждали бы конкретный киношный рёв. Внутреннее ухо тираннозаврид указывает на значение низких частот, но источник голоса и мягкие ткани неизвестны. Гул возможен, а знакомый рёв остаётся художественным эффектом.
Как мог звучать паразауролоф?
Его длинные носовые каналы могли усиливать низкие частоты, поэтому правдоподобны гудящие или трубные оттенки. Модель вычисляет резонанс гребня, но не восстанавливает исходный сигнал, мягкие ткани, громкость и ритм.
Могли ли динозавры петь как птицы?
У пинакозавра найдена гортань с некоторыми птичьеподобными особенностями, но птичий сиринкс у нептичьих динозавров не обнаружен. Простые или сложные вокализации возможны, однако пение в современном смысле для конкретного вида не доказано.
Можно ли когда-нибудь точно восстановить голос динозавра?
Новая находка минерализованных частей голосового аппарата могла бы сильно сузить варианты. Полная точность всё равно маловероятна без мембран, мышц, формы мягкого тракта и наблюдения поведения. Наука сможет улучшать диапазоны моделей, но не получить запись.