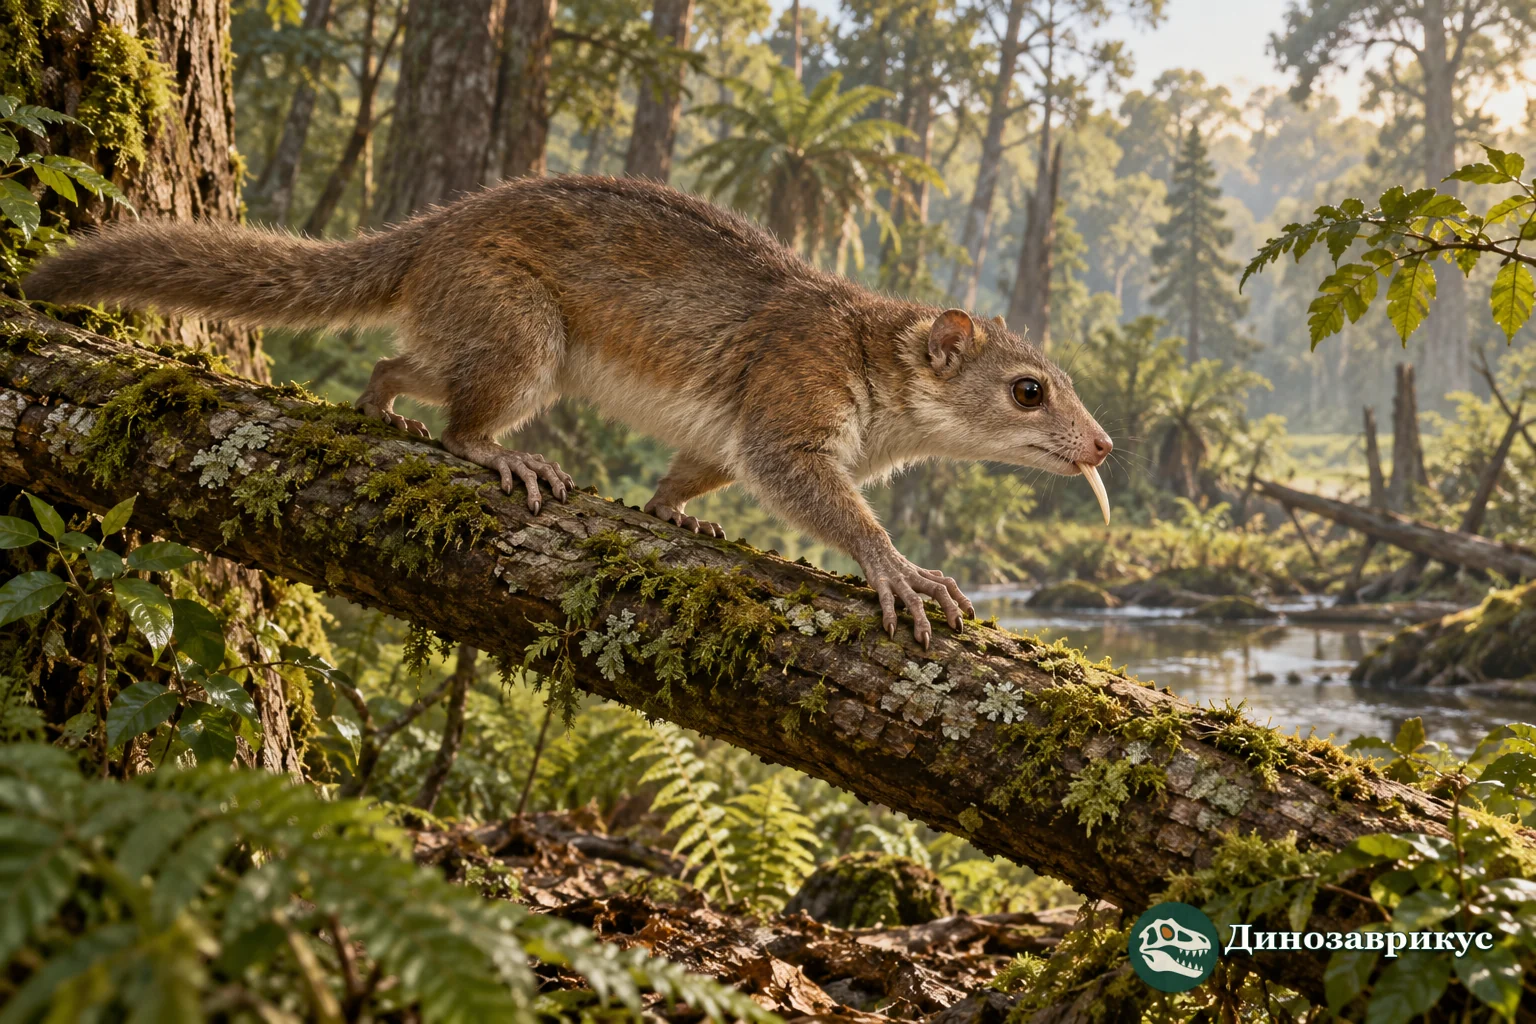
Лабидолемур (Labidolemur) – небольшой североамериканский зверёк позднего палеоцена и раннего эоцена, относимый к семейству Apatemyidae. Его узнаваемый зубной аппарат включал крупные резцы и острые премоляры, а у некоторых находок сохранились черепа и скелетные элементы. Благодаря этому род известен лучше, чем многие мелкие млекопитающие того времени, хотя его эволюционное положение до сих пор обсуждают.
Ключевые находки происходят из западных внутренних бассейнов США – Колорадо, Монтаны и Вайоминга. Среди них есть ранний типовой материал из палеоценовых местонахождений и почти полный сочленённый скелет из раннеэоценовой формации Уилвуд. Это позволяет сопоставлять зубы с анатомией черепа и конечностей, не выдавая сходство с современными животными за прямую родословную. Другие ископаемые млекопитающие представлены в каталоге древних млекопитающих, а подробный обзор родственного апатемиида Апатемиса показывает, как менялись трактовки семейства.
Краткий профиль
| Параметр | Сведения |
|---|---|
| Научное название | Labidolemur Matthew & Granger, 1921 |
| Типовой вид | Labidolemur soricoides Matthew & Granger, 1921 |
| Группа | Eutheria; семейство Apatemyidae, в некоторых классификациях отряд Apatotheria |
| Возраст | Поздний палеоцен – ранний эоцен Северной Америки |
| География | Колорадо, Монтана и Вайоминг, США |
| Материал | Зубы и челюсти; у L. kayi известны черепа и почти полный скелет |
| Питание | Предположение о добывании древесных насекомых основано на морфологии |
| Масса и длина | Для рода нет надёжного сводного диапазона измерений |
Что показывают ископаемые свидетельства Лабидолемура
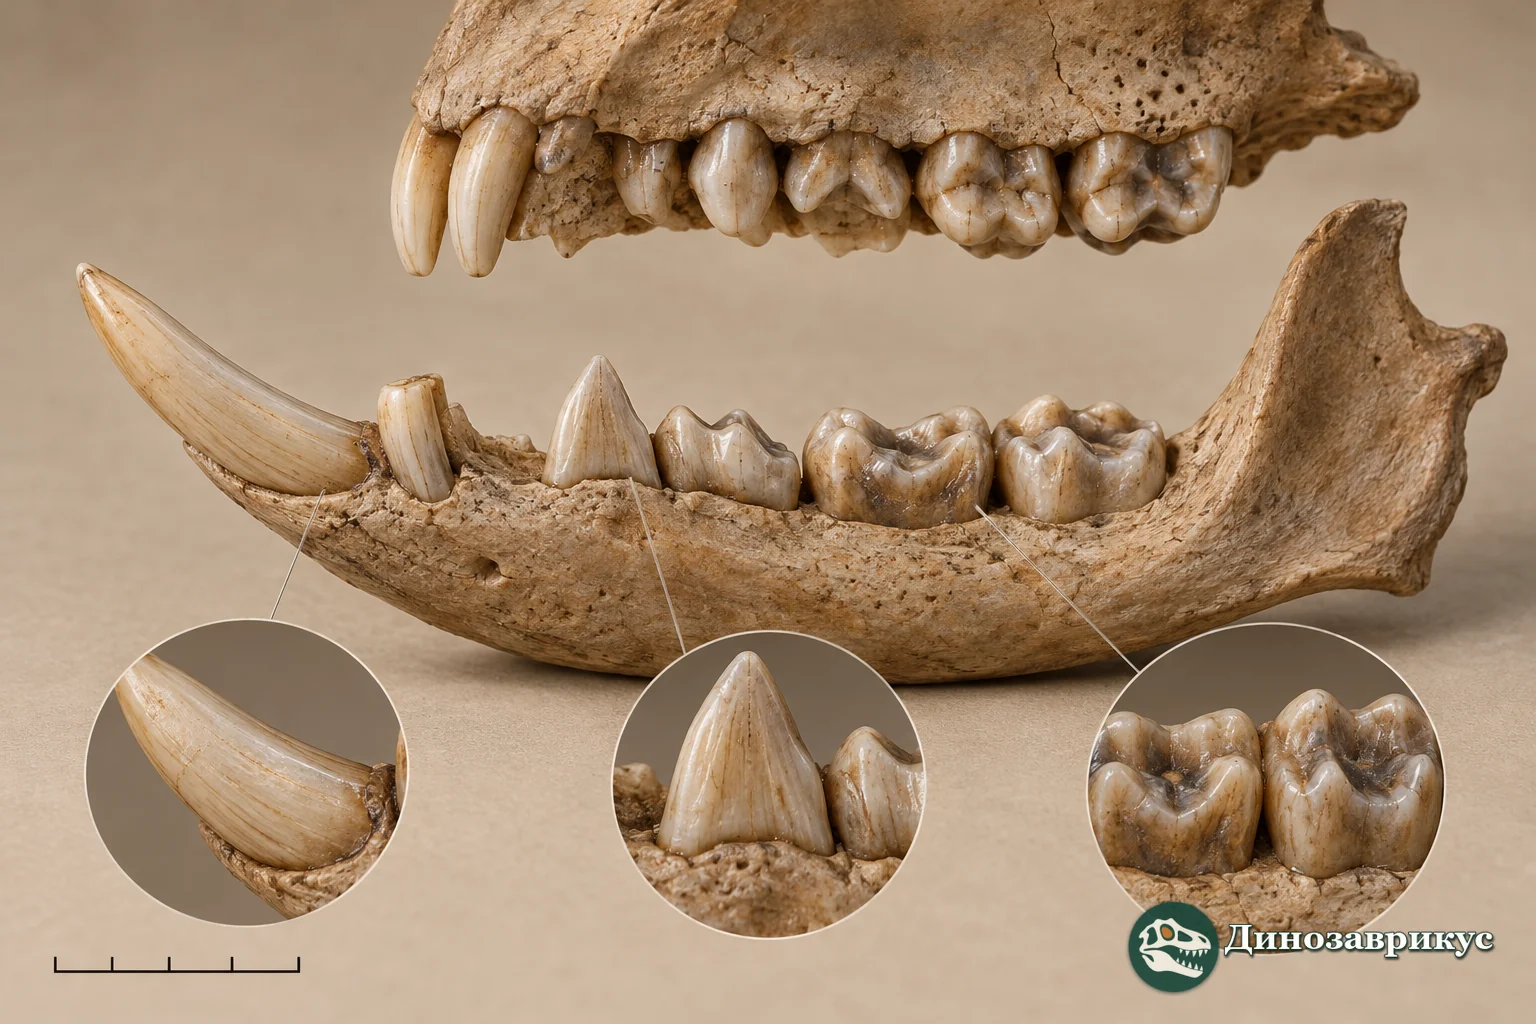
Голотип типового вида состоит из фрагментов нижних челюстей с резцом и коренным зубом. У апатемиид известны увеличенный выступающий вперёд нижний резец, крупный верхний резец и клиновидный второй премоляр. Эти детали сравнивают между образцами, но изолированный зуб не сообщает полного облика животного.
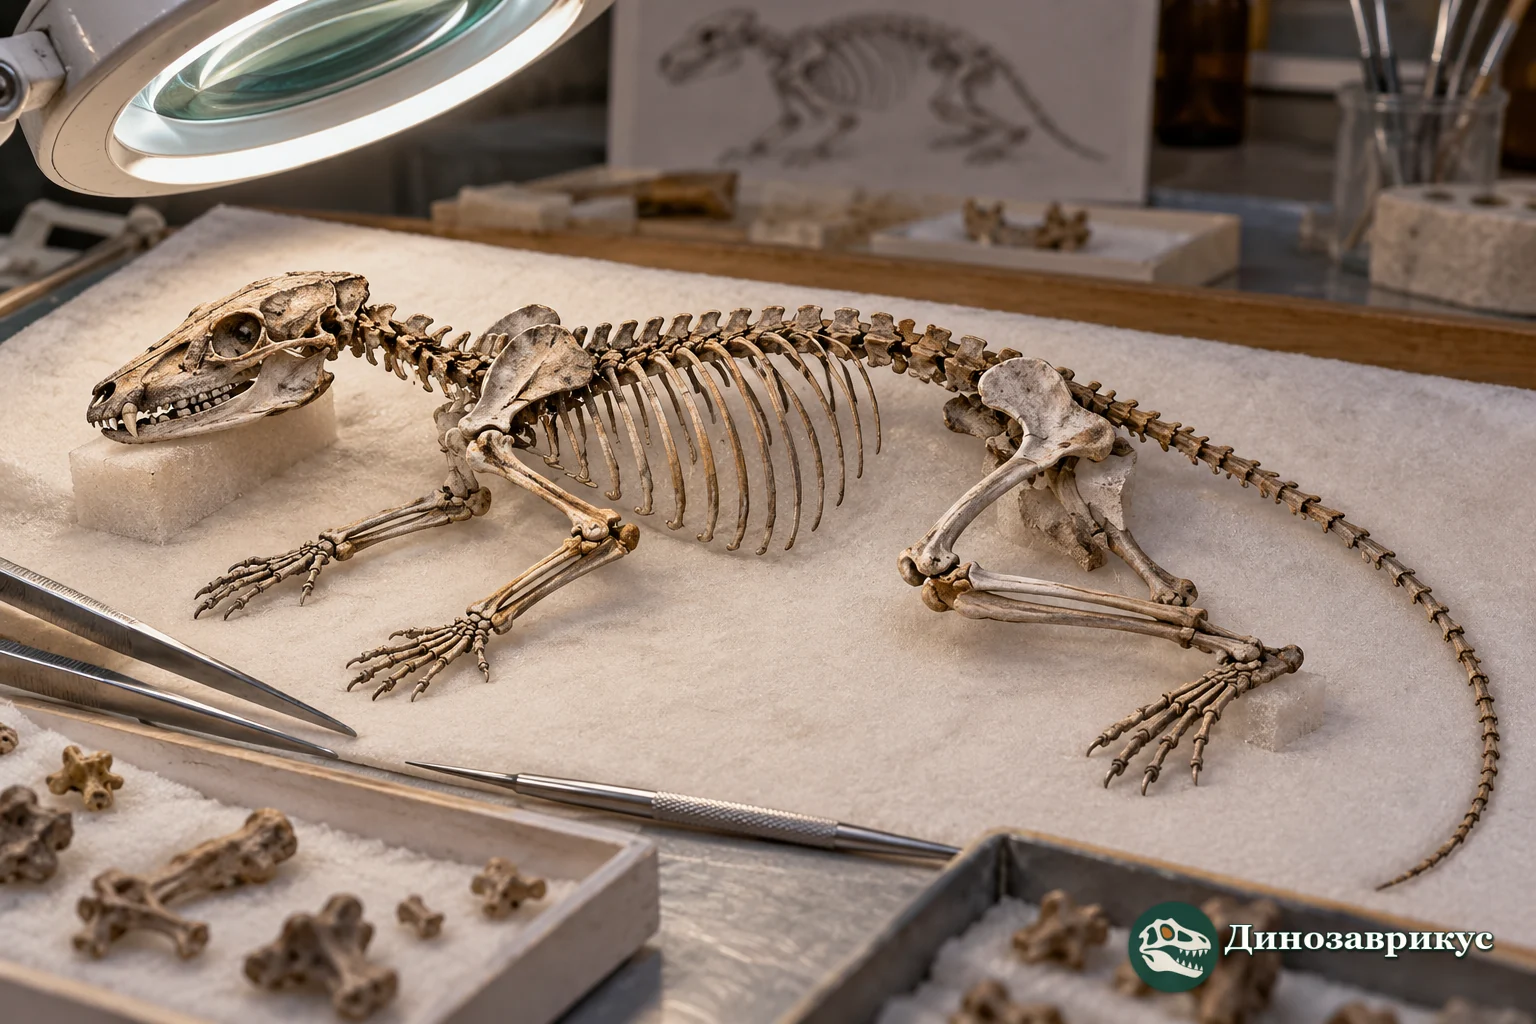
Образец USNM 530221 из раннеэоценовой формации Уилвуд описан как почти полный сочленённый скелет с черепом и нижними челюстями. Он позволяет изучать больше, чем разрозненные зубы, но не заменяет серию взрослых особей и не даёт сам по себе надёжной оценки массы всей популяции.
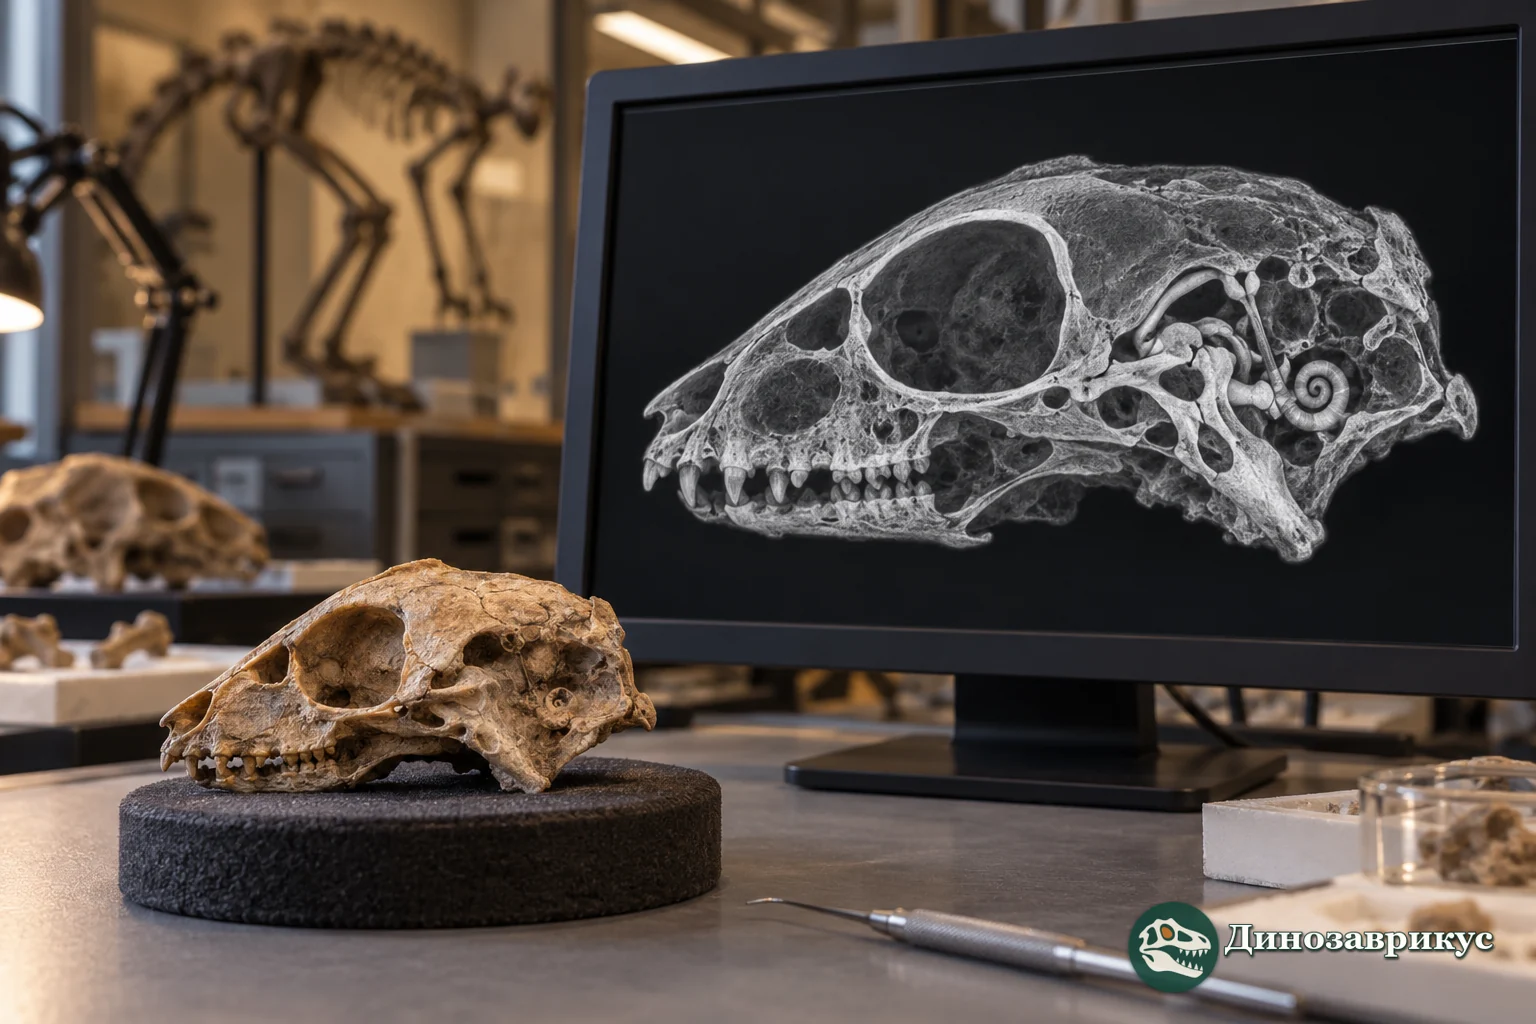
В исследовании 2010 года высокоразрешающая рентгеновская томография помогла описать области основания черепа, крышу барабанной полости и ход внутренней сонной артерии и лицевого нерва. Это данные о строении черепа, а не прямое свидетельство поведения или родства с современными приматами.
Кладистический анализ 2010 года поместил апатемиид у основания Euarchontoglires и слабо поддержал сестринское положение к Glires. Это результат выбранной матрицы признаков и набора сравниваемых плацентарных, а не установленная последовательность предков.
Название и первые находки
Уильям Мэттью и Уолтер Грейнджер ввели название Labidolemur в 1921 году для млекопитающего из позднепалеоценовых отложений Колорадо. Типовым видом стал L. soricoides. Его голотип AMNH 17400 состоит из неполных левой и правой нижних челюстей, на которых сохранились первый резец и первый коренной зуб. Образец найден в районе Mason Pocket в формации Анимас.
Джордж Симпсон в 1929 году описал второй вид, L. kayi, по нижней челюсти CM 11703 из угольной шахты Игл близ Бэр-Крик в Монтане. Позднее классификация менялась: Маккенна переносил этот вид в род Апатемис, а последующие авторы вернули его в Лабидолемур. Такие перестановки показывают, что границы рода строились прежде всего на сравнении зубов и челюстей, а не на одной неизменной системе признаков.
Типовой вид и другие названия
В литературе описаны несколько видов, относимых к роду. L. soricoides основан на челюстном материале из Колорадо; L. kayi – на челюсти из Монтаны; L. major описан Робертом Уэстом по зубам из формации Форт-Юнион Вайоминга; L. serus введён Филипом Джинджеричем по материалу раннего эоцена Вайоминга. Их определения и объём рода менялись в разных систематических работах, поэтому перечень названий не следует принимать за одинаково устойчивую современную ревизию всех видов.
В 1973 году Уэст сравнил передние зубы L. soricoides и среднего палеоценового рода Jepsenella. Он отметил сходное число премоляров и одинаковую схему их корней, что поставило под вопрос, достаточно ли различий для разделения двух родов. В более поздних классификациях Лабидолемур продолжает использоваться, однако этот пример показывает, насколько тонкие детали зубного ряда могут влиять на систематику мелких ископаемых млекопитающих.
Череп и почти полный скелет
Основу старых описаний составляли зубы и фрагменты нижних челюстей. Ситуация изменилась после находок L. kayi в бассейне Кларкс-Форк в Вайоминге. Образец USNM 530221 из раннего васачского интервала формации Уилвуд сохранил почти полный сочленённый скелет с черепом и нижними челюстями. В работе Силкокс и соавторов 2010 года описаны также ещё два хорошо сохранившихся черепа.
Высокоразрешающая компьютерная томография позволила рассмотреть участки, закрытые костью: строение крыши барабанной полости и каналы внутренней сонной артерии и лицевого нерва. Эти сведения расширили сравнительную анатомию апатемиид, но сами по себе не определили единственную гипотезу их родства. Филогенетический анализ того же исследования поместил семейство у основания группы Euarchontoglires; возможная близость к грызунам получила слабую поддержку и остаётся выводом модели.
Зубы и возможное питание
У апатемиид известны крупный нижний резец, выступающий вперёд, и большой верхний резец характерной формы. На нижней челюсти второй премоляр мог образовывать клиновидное режущее лезвие; строение коренных зубов также отличается от привычного для многих ранних плацентарных рисунка. Эти признаки помогают распознавать группу и сравнивать виды.
Сочетание крупных передних зубов и удлинённых второго и третьего пальцев кисти послужило основанием для гипотезы, что апатемииды добывали личинок и других насекомых из древесины. В качестве функциональной аналогии исследователи приводили современных трубкозубых опоссумов и ай-айе. Это сравнение объясняет возможную механику добывания корма, но не устанавливает конкретный рацион Лабидолемура: содержимое желудка, копролиты или характерные следы кормления для рода не описаны.
Положение удлинённых пальцев и общий скелетный материал поддерживают предположение о лазании или другой древесной активности у апатемиид. Для отдельных видов и особей степень такой специализации может различаться. Нельзя на основании одной аналогии приписывать животному повадки ай-айе, ночную активность или строго специализированную диету.
Возраст и геологический контекст
Наиболее ранняя история рода связана с поздним палеоценом. Типовой вид происходил из формации Анимас в Колорадо, а тип L. kayi – из местонахождения Игл-Майн в Монтане. Позднепалеоценовые возрастные уровни обычно сопоставляют с тiffанийскими и кларкфордианскими интервалами североамериканской шкалы наземных млекопитающих.
Материал из формации Уилвуд в бассейне Кларкс-Форк относится уже к раннему эоцену. Для местонахождения SC-26 опубликован интервал около 54,92–54,70 млн лет. Это датировка слоя, откуда происходит скелет, а не точный момент жизни животного. В совокупности отдельные виды рода прослеживаются через границу палеоцена и эоцена, но локальные находки относятся к разным популяциям и слоям.
Систематика и сходство с другими млекопитающими
Апатемиид долго помещали рядом с приматами или в условную группу «насекомоядных». Последняя категория исторически объединяла множество неродственных плацентарных и сейчас не считается естественным отрядом. Скотт и Джепсен выделили для семейства отряд Apatotheria; авторы исследования 2010 года поддержали его обособленность от современных отрядов, одновременно указав на неустойчивость глубоких филогенетических связей.
Анализ 2010 года поместил апатемиид у основания Euarchontoglires – крупной группы, куда входят, среди прочих, приматы и грызуны. Сестринская связь с Glires получила слабую поддержку. Это не означает, что Лабидолемур был приматом или предком грызунов: исследование оценивает сочетания анатомических признаков в выбранной модели, а не демонстрирует прямую линию происхождения.
Что известно о внешности
У Лабидолемура есть необычно богатый для небольшого раннекайнозойского млекопитающего набор: челюсти, зубы, несколько черепов и почти сочленённый скелет одного экземпляра. Поэтому тело можно реконструировать увереннее, чем у рода, известного только по одному коренному зубу. Но мягкие ткани, окраска, шерсть и конкретное поведение не сохраняются на этих находках.
На обложке показано небольшое древесное млекопитающее с увеличенным передним зубом. Форма головы и положение пальцев опираются на ископаемую анатомию апатемиид, тогда как шерсть, цвет и поза остаются художественными решениями. Современный ай-айе полезен лишь как функциональная аналогия отдельных признаков, а не как копия внешнего вида Лабидолемура.
Частые вопросы
Когда жил Лабидолемур?
Известные виды происходят из позднепалеоценовых и раннеэоценовых отложений Северной Америки. Отдельные местонахождения относятся к разным временным интервалам и не описывают одну непрерывную популяцию.
Что сохранилось от типового вида?
Голотип Labidolemur soricoides AMNH 17400 – неполные левая и правая нижние челюсти с первым резцом и первым коренным зубом из местонахождения Mason Pocket в Колорадо.
Найден ли полный скелет рода?
Почти полный сочленённый скелет L. kayi с черепом и нижними челюстями описан под номером USNM 530221 из раннеэоценовой формации Уилвуд. Это важный единичный экземпляр, но не полная выборка для оценки всей изменчивости рода.
Был ли Лабидолемур приматом или предком грызунов?
Нет таких доказательств. Анализ 2010 года обсуждал возможное положение апатемиид у основания Euarchontoglires и слабую поддержку близости к Glires. Это гипотеза родства, а не отнесение Лабидолемура к приматам или доказательство его роли как предка грызунов.